Ce cours réunit 6 parties : 1. Homéostasie, compartiments et bilans hydriques ; 2. Potentiels membranaires, propagation et synapses ; 3. Physiologie des trois types musculaires ; 4. Neurophysiologie sensorielle : transduction, codage et perception ; 5. Système nerveux autonome : circuits, récepteurs et réflexes viscéraux ; 6. Axes endocriniens et physiologie reproductive.
Partie 1 · Homéostasie, compartiments et bilans hydriques
Prérequis et objectifs
Prérequis : concentrations, osmose et membranes.
À la fin de ce cours : écrire un bilan ; estimer les compartiments ; distinguer variable réglée, capteur et réponse.
Homéostasie : maintenir une variable par des échanges
L’homéostasie est le maintien dynamique de certaines variables dans une plage compatible avec le fonctionnement. Une valeur stable ne signifie pas absence de flux. La glycémie peut rester presque constante alors que glucose absorbé, produit et consommé circulent rapidement. L’état stationnaire se définit par un bilan net nul ; l’équilibre thermodynamique ne comporte pas les mêmes échanges énergétiques entretenus.
Une boucle comprend une variable, un capteur, une intégration et des effecteurs. Dans un rétrocontrôle négatif, la réponse tend à réduire la perturbation initiale. Le gain décrit l’efficacité de correction dans un modèle donné ; délais et limites des effecteurs peuvent laisser une erreur résiduelle. Une commande anticipatrice prépare la réponse avant que la variable n’ait beaucoup changé, comme certains ajustements à l’effort.
Le rétrocontrôle positif amplifie une évolution jusqu’à un événement de terminaison ou une contrainte. Il n’est pas nécessairement pathologique : la montée rapide d’un potentiel d’action ou certaines étapes de l’accouchement en sont des exemples. Il ne maintient toutefois pas seul une valeur stable autour d’une consigne.
Compartiments hydriques
Dans un modèle pédagogique d’adulte de 70 kg avec 60 % d’eau, l’eau totale vaut 42 L. Environ deux tiers sont intracellulaires, soit 28 L, et un tiers extracellulaire, soit 14 L. Le plasma représente environ un quart du compartiment extracellulaire, soit 3,5 L, le reste étant principalement interstitiel. Ces fractions sont des hypothèses de calcul, variables avec âge, composition corporelle et état physiologique.
Le sang n’est pas identique au plasma : il contient aussi des cellules dont l’eau appartient au compartiment intracellulaire. Avec un hématocrite de 0,45 et un volume sanguin de 5 L, le volume plasmatique vaut approximativement 5 × 0,55 = 2,75 L. Mélanger un modèle de répartition corporelle avec des mesures individuelles sans préciser les hypothèses produit des incohérences artificielles.
Le sodium domine parmi les cations extracellulaires, le potassium parmi les intracellulaires. Les pompes et perméabilités entretiennent cette distribution. Les compartiments restent globalement électroneutres : une faible séparation de charges au voisinage des membranes suffit au potentiel électrique sans charger massivement tout le volume cytosolique.
Mesurer un volume par dilution
Si une quantité connue d’indicateur se répartit uniquement dans un compartiment, son volume peut être estimé par quantité présente divisée par concentration à l’équilibre. Il faut corriger les pertes et soustraire le signal de fond. L’indicateur doit se mélanger suffisamment sans être rapidement métabolisé ou déplacé hors du compartiment visé.
Un indicateur distribué dans toute l’eau corporelle estime l’eau totale ; un marqueur limité à l’extracellulaire estime ce compartiment ; un marqueur retenu dans le plasma estime le volume plasmatique. Le volume intracellulaire est souvent obtenu par différence, ce qui cumule les incertitudes des deux mesures. Une différence de deux grands nombres n’est pas automatiquement précise.
Osmolarité et redistribution
L’eau traverse les membranes selon son potentiel chimique. Des solutés effectivement non pénétrants créent une différence de tonicité durable. Une perte d’eau pure augmente la tonicité extracellulaire, attire de l’eau hors des cellules et réduit les deux compartiments. Une perte de liquide isotone diminue d’abord surtout l’extracellulaire sans grand déplacement osmotique immédiat.
Un apport d’eau pure, après distribution et en l’absence d’élimination, augmente les deux compartiments selon leur équilibre osmotique. Un apport de solution saline isotone se distribue principalement dans l’extracellulaire ; il ne reste pas intégralement dans le plasma. Ces modèles supposent des membranes et reins fonctionnels et une fenêtre temporelle définie.
| Perturbation idéale | Tonicité extracellulaire | Mouvement cellulaire attendu |
|---|---|---|
| Perte d’eau pure | Augmente | Eau sort des cellules |
| Gain d’eau pure | Diminue | Eau entre dans les cellules |
| Perte isotone | Peu modifiée initialement | Peu de déplacement osmotique immédiat |
| Gain isotone | Peu modifiée initialement | Expansion surtout extracellulaire |
Échanges capillaires et lymphatiques
Les forces hydrostatiques favorisent des déplacements selon les différences de pression ; les protéines peu perméantes contribuent aux forces oncotiques. La perméabilité de la paroi et le glycocalyx endothélial influencent l’échange. Le modèle classique filtration artérielle/réabsorption veineuse permanente est trop simple pour de nombreux tissus : à l’état stable, le drainage lymphatique joue un rôle essentiel dans le retour du liquide filtré.
Un œdème peut résulter d’une pression capillaire élevée, d’une perméabilité accrue, d’une pression oncotique plasmatique diminuée ou d’un drainage lymphatique insuffisant. Ces mécanismes peuvent se combiner. Le volume interstitiel ne renseigne donc pas à lui seul sur la volémie efficace ou sur un unique défaut.
Bilans et régulation rénale
Pour une substance, variation de stock = entrées − sorties + production − consommation. Pour l’eau corporelle, on prend en compte boissons, aliments et eau métabolique, puis urines, pertes digestives, cutanées et respiratoires. Une balance positive pendant une période augmente le stock ; une concentration peut pourtant rester stable si le soluté augmente en parallèle.
L’osmolalité stimule notamment soif et vasopressine, tandis que volume circulant efficace et pression activent d’autres capteurs et régulations. Le système rénine-angiotensine-aldostérone favorise des adaptations sodées et vasculaires ; la vasopressine modifie surtout la perméabilité à l’eau du collecteur. Sodium total et natrémie ne sont pas synonymes : la seconde dépend fortement du rapport entre eau et osmoles échangeables.
- Osmoréception
- Soif et vasopressine
- Apport et rétention d’eau
- Baisse de la tonicité
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : les signaux volémiques peuvent modifier cette réponse ; il suppose accès à l’eau et fonction rénale adéquate.
Passer du plasma au sang total
Exercice. Un traceur restant dans le plasma indique 3,0 L. L'hématocrite mesuré vaut 0,40. Estimer le volume sanguin en assimilant l'hématocrite prélevé à celui de tout le compartiment.
Correction. Le plasma représente 1 − 0,40 = 0,60 du sang : V_sang = 3,0/0,60 = 5,0 L. Le volume des éléments figurés est alors 2,0 L dans ce modèle. Multiplier 3,0 par 1,40 serait faux, car 40 % désigne une fraction du sang total, pas une fraction du plasma. La précision dépend du mélange du traceur, de sa fuite éventuelle et de la représentativité de l'hématocrite ; cette dernière hypothèse est une simplification. Toute dilution nécessite aussi de retrancher la quantité éliminée avant la mesure.
Exercices progressifs
Exercice 1. Calculer l’eau totale du modèle 70 kg à 60 %.
Exercice 2. Un stock constant implique-t-il un flux nul ?
Exercice 3. Un indicateur restant dans 3 L de plasma mesure-t-il directement tout le sang ?
Exercice 4. Quel déplacement suit une augmentation de tonicité extracellulaire ?
Exercice 5. Avec 2,4 L d’entrées et 3,1 L de sorties en une journée, calculer le bilan hydrique.
Corrections argumentées
Correction 1. 42 L. Il s’agit d’un modèle, pas d’une valeur obligatoire pour toute personne de 70 kg.
Correction 2. Non. Des entrées et sorties égales peuvent être élevées. Un état stationnaire est un bilan net nul.
Correction 3. Non. Le sang comprend aussi les cellules. Il faut notamment l’hématocrite pour relier volumes plasmatique et sanguin.
Correction 4. L’eau sort des cellules jusqu’à un nouvel équilibre, ce qui diminue leur volume si les solutés responsables sont effectivement non pénétrants.
Correction 5. 2,4 − 3,1 = −0,7 L. Le stock diminue de 700 mL si toutes les entrées et sorties pertinentes sont incluses.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 2 · Potentiels membranaires, propagation et synapses
Prérequis et objectifs
Prérequis : transport ionique, membrane et logarithmes.
À la fin de ce cours : relier conductance et potentiel ; décrire un potentiel d’action ; expliquer sommation et transmission synaptique.
Potentiel de repos
Le potentiel de membrane est la différence entre intérieur et extérieur. Il dépend des gradients ioniques et des perméabilités. Pour un ion isolé, le potentiel de Nernst est la valeur où force chimique et force électrique se compensent. À environ 37 °C, pour un cation monovalent, E ≈ 61,5 mV × log10(Cext/Cint). Pour un anion, le signe de la valence inverse l’effet.
Avec K⁺ externe 4 mmol/L et interne 140 mmol/L, le rapport vaut 0,0286 et EK est voisin de −95 mV. Le potentiel réel d’une cellule n’est pas obligatoirement égal à EK car plusieurs ions contribuent. Une augmentation de perméabilité à un ion tend à rapprocher le potentiel de son potentiel d’équilibre, sous réserve des autres conductances.
La pompe sodium-potassium maintient les gradients sur le long terme et possède un effet électrogène direct. Elle ne produit pas chaque phase rapide du potentiel d’action en changeant instantanément de vitesse. Les flux transitoires à travers les canaux modifient une très petite fraction des stocks ioniques globaux.
Déclenchement du potentiel d’action
Une dépolarisation suffisante active des canaux sodiques voltage-dépendants dans de nombreux neurones. L’entrée de sodium accentue la dépolarisation et ouvre d’autres canaux : ce rétrocontrôle positif produit la montée rapide. Le seuil correspond à une condition où les courants entrants l’emportent suffisamment ; il varie avec l’état des canaux et la cellule.
Les canaux sodiques s’inactivent tandis que des conductances potassiques augmentent. Le potassium sort selon sa force motrice, favorisant repolarisation puis parfois post-hyperpolarisation. Les canaux sodiques doivent revenir d’un état inactivé vers un état disponible. La période réfractaire absolue empêche un nouveau potentiel identique ; pendant la relative, un stimulus plus fort peut être nécessaire.
Le caractère tout-ou-rien concerne l’événement régénératif dans les conditions données, pas l’intensité globale de toute réponse nerveuse. Une stimulation plus forte peut augmenter fréquence des potentiels et nombre de fibres recrutées. L’amplitude ne constitue donc pas le seul code disponible.
Propagation et myéline
Les courants locaux dépolarisent la région voisine, où un nouveau potentiel est produit. Le signal se propage sans atténuation majeure parce qu’il est régénéré ; ce n’est pas le même groupe d’ions sodium parcourant toute la longueur de l’axone. La membrane située juste derrière est réfractaire, contribuant au sens habituel de propagation depuis la zone d’initiation.
La myéline augmente la résistance transmembranaire et diminue la capacité effective des segments internodaux. Le courant se propage plus loin et plus vite jusqu’aux nœuds, où les canaux permettent la régénération. La conduction saltatoire n’est pas un saut dans le vide : le courant circule dans l’axone et les milieux adjacents entre les nœuds.
Un diamètre plus grand diminue la résistance longitudinale et favorise une conduction plus rapide, toutes choses égales par ailleurs. La vitesse dépend aussi de la myélinisation et de la température. Un ralentissement peut donc avoir plusieurs causes.
Synapse chimique
L’arrivée du potentiel dans la terminaison ouvre des canaux calciques. L’entrée de calcium déclenche la fusion de vésicules et la libération de neurotransmetteur. Celui-ci diffuse puis se fixe sur des récepteurs postsynaptiques. Les récepteurs ionotropes modifient directement une conductance ; les métabotropes utilisent des relais intracellulaires.
Un potentiel postsynaptique excitateur rapproche généralement la cellule du seuil ; un inhibiteur réduit la probabilité de décharge. L’inhibition ne nécessite pas toujours une hyperpolarisation visible : une augmentation de conductance peut court-circuiter une entrée excitatrice, phénomène de shunt. Il faut donc examiner potentiel d’inversion et conductance, pas seulement le signe de la variation de voltage.
Le neurotransmetteur est éliminé par recapture, dégradation ou diffusion selon le système. Une synapse ne peut pas rester efficacement informative si le signal persiste indéfiniment sans remise à zéro. La quantité libérée et la sensibilité postsynaptique peuvent évoluer avec l’activité, contribuant à la plasticité.
Sommation et intégration
La sommation temporelle combine des réponses rapprochées dans le temps ; la spatiale combine des entrées provenant de sites différents. Leur influence dépend de la distance électrotonique et des propriétés membranaires. Deux excitations identiques n’ont pas forcément le même effet si l’une arrive sur une dendrite éloignée et l’autre près de la zone d’initiation.
| Signal | Amplitude | Propagation | Sommation |
|---|---|---|---|
| Potentiel gradué | Variable | Décrémentielle selon le câble | Oui |
| Potentiel d’action | Régénérative dans une cellule donnée | Sans décrément fonctionnel habituel | Pas par simple addition d’amplitudes |
| Potentiel postsynaptique | Dépend des conductances | Local puis électrotonique | Temporelle et spatiale |
Jonction neuromusculaire
Le motoneurone libère de l’acétylcholine sur des récepteurs nicotiniques de la fibre squelettique. Le potentiel de plaque déclenche habituellement un potentiel musculaire grâce à une marge de sécurité. L’acétylcholinestérase limite la durée du signal. La transmission à la plaque est chimique ; la propagation le long du sarcolemme est électrique.
- Potentiel nerveux
- Entrée de Ca²⁺ présynaptique
- Libération d’acétylcholine
- Potentiel de plaque
- Potentiel musculaire
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il omet recapture de précurseurs et renouvellement vésiculaire ; il ne décrit pas encore la contraction.
Une inhibition sans hyperpolarisation importante
Modèle passif. Un courant excitateur de 0,1 nA traverse une membrane de résistance d'entrée 100 MΩ. Une conductance inhibitrice ouverte ramène cette résistance à 50 MΩ, avec potentiel d'inversion proche du repos. Comparer les dépolarisations stationnaires.
Correction. Avec ΔV = RI, on obtient 10 mV puis 5 mV. La membrane répond moins au même courant excitateur bien que l'ouverture inhibitrice puisse déplacer peu le potentiel de repos. L'inhibition agit ici en augmentant la conductance totale et en réduisant le gain électrique. Ce calcul ne simule pas un potentiel d'action : il suppose une membrane passive, un courant constant et assez de temps pour atteindre l'état stationnaire. Il explique pourquoi « inhibiteur » ne signifie pas obligatoirement « forte hyperpolarisation visible ».
Lecture visuelle : Potentiel d’action neuronal : chronologie qualitative
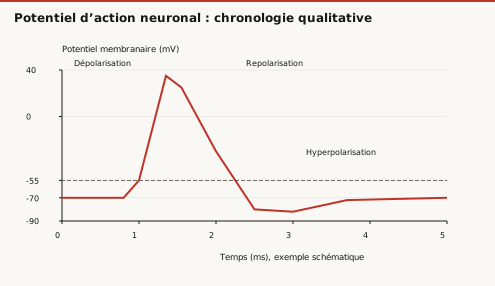
Question de lecture. La repolarisation rapide correspond-elle au seul effet de la pompe Na+/K+ ?
Correction. Non : la cinétique des conductances, notamment l’inactivation sodique et l’augmentation du courant potassique dans le modèle classique, est déterminante. La pompe maintient les gradients sur d’autres échelles de temps.
Exercices progressifs
Exercice 1. Si CK externe augmente sans autre changement, EK devient-il plus ou moins négatif ?
Exercice 2. La pompe produit-elle directement la phase ascendante milliseconde par milliseconde ?
Exercice 3. Pourquoi un canal sodique inactivé ne peut-il pas être assimilé à un canal simplement fermé disponible ?
Exercice 4. Une inhibition est-elle toujours une hyperpolarisation ?
Exercice 5. Différencier potentiel de plaque et potentiel d’action musculaire.
Corrections argumentées
Correction 1. Moins négatif, car Cext/Cint augmente et son logarithme augmente. Le potentiel réel dépendra aussi des autres conductances.
Correction 2. Non. La montée rapide dépend surtout de l’ouverture des canaux sodiques dans le modèle neuronal décrit. La pompe entretient les gradients à plus long terme.
Correction 3. Il doit récupérer de l’inactivation avant de pouvoir être activé à nouveau. Cette propriété contribue à la réfractarité.
Correction 4. Non. Une conductance inhibitrice peut surtout diminuer l’efficacité d’une excitation par shunt, même avec faible changement de potentiel.
Correction 5. Le potentiel de plaque est local et gradué, produit par les récepteurs nicotiniques ; le potentiel d’action est régénératif et se propage dans la membrane musculaire.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 3 · Physiologie des trois types musculaires
Prérequis et objectifs
Prérequis : sarcomère, ATP et potentiel d’action.
À la fin de ce cours : décrire le cycle des ponts ; comparer le rôle du calcium ; relier longueur, vitesse et force.
Le glissement des filaments
La contraction squelettique repose sur des interactions cycliques entre myosine et actine. Les filaments ne raccourcissent pas à chaque secousse : leur chevauchement augmente, rapprochant les lignes Z. La bande A garde globalement sa longueur, tandis que la bande I et la zone H diminuent selon l’état initial.
Dans le cycle des ponts, la fixation d’ATP favorise le détachement de la myosine. Son hydrolyse prépare une conformation à énergie élevée ; la liaison à l’actine et la libération des produits sont couplées à la production de force. L’ATP est donc requis aussi pour relâcher une liaison, pas seulement pour créer un mouvement. Son absence favorise une rigidité des ponts.
Calcium et couplage squelettique
Le potentiel musculaire se propage sur le sarcolemme et dans les tubules T. Le capteur de voltage de type Cav1.1, historiquement récepteur aux dihydropyridines, est couplé au récepteur à la ryanodine du réticulum sarcoplasmique. La libération de calcium augmente sa concentration cytosolique.
Le calcium se fixe à la troponine C, modifiant la position de la tropomyosine et permettant l’accès de la myosine à l’actine. La recapture par les pompes SERCA abaisse ensuite le calcium et favorise la relaxation. Les filaments et les membranes ont donc des rôles complémentaires : propagation, libération du signal, interaction mécanique puis remise à zéro.
Force, recrutement et sommation
Une unité motrice comprend un motoneurone et les fibres musculaires qu’il innerve. Le recrutement de davantage d’unités augmente la force. Les petites unités permettent une commande fine ; de grandes unités conviennent à des forces plus importantes. Le recrutement suit généralement une logique de seuils, sans que toutes les unités soient activées simultanément dès la moindre contraction.
Une secousse peut être suivie d’une autre avant relaxation complète, ce qui augmente la force par sommation temporelle. À fréquence élevée, le muscle peut développer un tétanos physiologique de contraction soutenue. Ce mot décrit ici une réponse mécanique et ne désigne pas l’infection tétanique. Le calcium restant élevé entre stimulations contribue à la sommation.
La relation longueur-tension active dépend du chevauchement actine-myosine. Une longueur trop courte ou trop grande réduit le nombre ou l’efficacité des ponts. La tension passive augmente à l’étirement grâce à des structures comme la titine et le tissu conjonctif. La tension totale est la somme de contributions active et passive.
Vitesse et types de contraction
En contraction concentrique, le muscle se raccourcit sous charge ; en excentrique, il produit une force tout en s’allongeant ; en isométrique, sa longueur globale reste approximativement constante. Isométrique ne signifie pas absence d’activité ni absence de consommation d’ATP. Les éléments internes peuvent changer de longueur alors que les extrémités restent fixes.
La vitesse de raccourcissement diminue lorsque la charge augmente, dans le cadre de la relation force-vitesse classique. Le travail mécanique externe est force × déplacement ; en isométrie idéale, ce travail externe est nul même si une dépense énergétique interne existe. La puissance correspond au travail par unité de temps ou au produit force × vitesse.
Métabolisme et fatigue
Les fibres disposent d’ATP, de phosphocréatine, de glycolyse et de phosphorylation oxydative. Ces voies se chevauchent ; elles ne s’allument pas une par une selon un calendrier rigide. Le type de fibre, l’intensité, la durée et l’apport en oxygène influencent leurs contributions.
La fatigue est une baisse de capacité à produire la force attendue. Elle peut avoir des composantes centrales et périphériques : commande, excitabilité, gestion du calcium et état des métabolites. La réduire à « accumulation d’acide lactique » est inexact. Le lactate peut être réutilisé comme substrat et n’explique pas seul toutes les formes de fatigue.
Muscle cardiaque
Le cardiomyocyte utilise aussi troponine et sarcomères, mais le calcium entrant par les canaux membranaires déclenche une libération supplémentaire par le réticulum. Ce couplage calcium-induit diffère du couplage mécanique dominant dans le muscle squelettique. La recapture et l’extrusion terminent le signal.
Le potentiel d’action cardiaque de travail comporte un plateau et une longue période réfractaire. Cela empêche normalement une sommation tétanique comparable au muscle squelettique, ce qui serait incompatible avec le remplissage entre battements. La force s’ajuste par longueur initiale, calcium et influences autonomes plutôt que par recrutement volontaire de nouvelles unités motrices.
Muscle lisse
Le muscle lisse ne possède pas de sarcomères organisés en stries ni le même système de troponine. Le calcium se lie à la calmoduline, qui active la kinase des chaînes légères de myosine, MLCK. La phosphorylation de la myosine favorise son interaction avec l’actine. La phosphatase MLCP contribue au relâchement, tandis que d’autres voies règlent la sensibilité au calcium.
Certaines contractions lisses sont lentes et économes, avec maintien prolongé de force. L’activité dépend de signaux électriques, d’étirement, d’hormones et de médiateurs locaux. Tous les muscles lisses ne sont pas commandés exactement de la même manière ni également couplés par des jonctions communicantes.
| Muscle | Régulation contractile centrale | Particularité |
|---|---|---|
| Squelettique | Calcium-troponine | Unités motrices et sommation |
| Cardiaque | Calcium-troponine | Longue réfractarité, calcium déclencheur |
| Lisse | Calcium-calmoduline-MLCK | Phosphorylation de la myosine |
- Potentiel musculaire
- Activation réticulum
- Calcium-troponine
- Ponts actine-myosine
- Recapture et relaxation
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : l’ATP intervient à plusieurs étapes, y compris détachement et pompage du calcium.
Le signe du travail pendant un freinage
Exercice. Un muscle exerce une force de 100 N opposée à un déplacement externe de 0,05 m. Calculer le travail de cette force sur le segment, puis interpréter la dépense énergétique.
Correction. W = Fd cos(180°) = −5 J. Le muscle absorbe de l'énergie mécanique dans ce modèle de freinage. Le travail externe négatif ne signifie ni production d'ATP garantie ni coût métabolique négatif. Des ponts actine-myosine et des pompes restent engagés. En isométrie, le déplacement externe est nul et le travail externe nul, mais la dépense énergétique peut persister. Il faut toujours préciser quel système reçoit le travail et ne pas assimiler travail externe, travail de chaque élément interne et consommation métabolique.
Lecture visuelle : Sarcomère : le glissement conserve la longueur des filaments
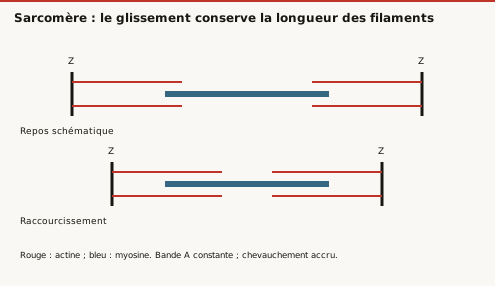
Question de lecture. Pourquoi réduire proportionnellement tout le dessin serait-il faux ?
Correction. Cela raccourcirait les filaments eux-mêmes. Le mécanisme étudié est leur glissement relatif ; une variation de longueur du sarcomère ne suffit pas à calculer sa force.
Exercices progressifs
Exercice 1. Pourquoi l’ATP est-il nécessaire au détachement de la myosine ?
Exercice 2. Une contraction isométrique consomme-t-elle de l’énergie ?
Exercice 3. Calculer le travail externe pour 50 N sur 0,20 m.
Exercice 4. Pourquoi le cœur ne développe-t-il pas normalement un tétanos ?
Exercice 5. Quelle protéine lie le calcium pour activer MLCK ?
Corrections argumentées
Correction 1. Sa fixation modifie l’affinité de la tête pour l’actine. Sans ATP disponible, les ponts peuvent rester fortement attachés.
Correction 2. Oui. Les cycles moléculaires et les pompes consomment de l’ATP même si le déplacement externe est nul.
Correction 3. W = 50 × 0,20 = 10 J, en supposant force constante parallèle au déplacement.
Correction 4. Sa longue période réfractaire couvre une grande partie de la contraction et empêche la sommation rapide nécessaire. Le relâchement reste indispensable au remplissage.
Correction 5. La calmoduline. Le muscle lisse ne repose pas sur la troponine comme le muscle strié.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 4 · Neurophysiologie sensorielle : transduction, codage et perception
Prérequis et objectifs
Prérequis : potentiel de membrane, synapse et anatomie des grandes voies nerveuses.
Objectifs : distinguer stimulus, transduction et perception ; expliquer les principaux codages ; relier rétine, cochlée et vestibule à leurs stimuli.
Du phénomène physique à l’information nerveuse
Un stimulus est une variation physique ou chimique susceptible d’activer un système sensoriel. La transduction transforme cette variation en changement électrique dans une cellule réceptrice. La perception est une construction du système nerveux à partir des signaux et du contexte. Ces trois niveaux ne se confondent pas : une activité réceptrice peut participer à un réflexe sans perception consciente, et une même stimulation peut être interprétée différemment selon les circonstances.
Un récepteur possède un stimulus adéquat auquel il est particulièrement sensible. Une pression peut néanmoins produire une sensation lumineuse en activant anormalement une voie visuelle. La qualité perçue dépend donc de la voie activée et de son traitement central, pas seulement de la nature de l’énergie appliquée. Cette organisation n’implique pas que le système soit incapable d’intégrer plusieurs modalités.
Le potentiel récepteur est généralement gradué : son amplitude varie avec les propriétés du stimulus. Il peut déclencher des potentiels d’action dans la même cellule ou modifier la libération de neurotransmetteur vers une fibre afférente. Les photorécepteurs et les cellules ciliées utilisent principalement des réponses graduées, tandis que les fibres qui transmettent leur information à distance produisent des potentiels d’action.
Coder intensité, durée et position
L’amplitude d’un potentiel d’action propagé ne grandit pas proportionnellement à l’intensité du stimulus. L’information peut être portée par la fréquence de décharge, le recrutement d’un plus grand nombre de fibres et la distribution temporelle de leur activité. La saturation d’une fibre n’interdit pas à une population de continuer à distinguer des intensités grâce à des sensibilités différentes.
Le champ récepteur est la région dont la stimulation modifie l’activité d’un neurone donné. Des champs petits et densément représentés permettent souvent une discrimination spatiale plus fine. La convergence de nombreuses entrées peut accroître la sensibilité tout en réduisant la précision de localisation. Ce compromis dépend du circuit et ne constitue pas une règle absolue applicable à toutes les modalités.
L’inhibition latérale peut renforcer le contraste entre régions voisines. Elle ne crée pas une copie photographique du stimulus ; elle met en valeur certaines différences. La représentation corticale d’un territoire reflète sa richesse en informations et les propriétés du réseau plutôt que sa seule surface physique. Une main occupe ainsi une représentation disproportionnée par rapport à sa masse.
Adaptation et changement
Un récepteur à adaptation rapide répond surtout aux changements et aux transitions. Un récepteur à adaptation lente maintient davantage sa réponse pendant une stimulation prolongée. Cette opposition est relative : les cinétiques varient et plusieurs mécanismes périphériques et centraux participent à l’adaptation. L’arrêt d’une réponse ne signifie pas nécessairement que le stimulus physique a disparu.
L’adaptation permet de réserver une part de la dynamique de codage aux variations pertinentes. Elle explique pourquoi un contact constant devient moins saillant tout en restant détectable par d’autres populations. Une réponse phasique peut renseigner sur une vibration ou un mouvement ; une réponse tonique peut renseigner sur une pression maintenue. Il faut toujours préciser le temps d’observation.
Somesthésie et voies ascendantes
La somesthésie comprend notamment toucher, proprioception, température et nociception. Les mécanorécepteurs cutanés diffèrent par leur profondeur, leur champ et leur adaptation. Les corpuscules de Pacini sont particulièrement adaptés à des vibrations rapides ; les complexes de Merkel contribuent à l’analyse de pressions soutenues et de détails spatiaux. Aucun récepteur n’explique isolément toute la sensation d’un objet.
Pour une grande partie du tact discriminatif et de la proprioception consciente du corps, les fibres primaires montent dans les cordons postérieurs et font relais dans le bulbe ; les fibres du relais croisent ensuite et poursuivent vers le thalamus puis le cortex. Pour de nombreuses informations nociceptives et thermiques corporelles, le premier relais est spinal et le croisement intervient près du niveau d’entrée avant une ascension antérolatérale. Les voies de la face suivent une organisation trigéminale distincte.
Ces différences de croisement expliquent pourquoi « toute sensibilité croise immédiatement à l’entrée » est faux. Une localisation exige de préciser modalité, niveau et côté. Les systèmes possèdent aussi des projections parallèles vers des centres impliqués dans l’éveil, les réactions autonomes et les dimensions affectives.
Nociception et douleur
La nociception correspond au traitement nerveux de stimuli potentiellement ou réellement dommageables. La douleur est une expérience sensorielle et émotionnelle. Elles sont liées sans être identiques : une réponse nociceptive peut exister sans expérience consciente, et une douleur ne se réduit pas à l’intensité instantanée d’un signal périphérique.
Les terminaisons nociceptives peuvent répondre à des contraintes mécaniques, thermiques ou chimiques. Une sensibilisation périphérique abaisse certains seuils ou augmente des réponses locales. Des modifications centrales peuvent aussi amplifier le traitement. Des contrôles descendants peuvent inhiber ou faciliter la transmission selon le contexte. Présenter les voies descendantes comme exclusivement inhibitrices serait incomplet.
L’hyperalgésie désigne une douleur accrue à un stimulus normalement douloureux ; l’allodynie une douleur provoquée par un stimulus qui ne l’est normalement pas. Ces termes décrivent des phénomènes, pas une cause unique. Ce cours expose des mécanismes de base et ne fournit pas de procédure d’interprétation individuelle.
Vision : une transduction qui hyperpolarise
La lumière traverse les milieux optiques puis atteint les photorécepteurs rétiniens. Les bâtonnets contribuent surtout à la vision en faible éclairement ; les cônes permettent notamment la discrimination chromatique et une haute résolution dans les conditions appropriées. La fovéa possède une organisation favorisant l’acuité, tandis que la convergence des voies des bâtonnets favorise la sensibilité au prix d’une moindre résolution spatiale.
Dans l’obscurité, des canaux dépendant du GMP cyclique restent ouverts et contribuent à un courant entrant. La lumière active les pigments, puis une cascade qui réduit le GMP cyclique et ferme ces canaux. Le photorécepteur s’hyperpolarise et libère moins de glutamate. L’idée selon laquelle tout stimulus sensoriel dépolarise nécessairement son récepteur est donc fausse.
Les cellules bipolaires ON et OFF ne répondent pas identiquement à cette diminution de glutamate, car leurs mécanismes récepteurs diffèrent. Les cellules horizontales et amacrines contribuent aux interactions locales. Les cellules ganglionnaires produisent les potentiels d’action de sortie. Les champs centre-périphérie permettent de coder des contrastes plutôt qu’une simple luminosité absolue en chaque point.
Au chiasma, les fibres provenant des hémirétines nasales croisent, tandis que les temporales restent du même côté. Chaque hémisphère reçoit ainsi principalement l’information de l’hémichamp visuel opposé. Hémirétine et hémichamp ne sont pas synonymes, car l’optique inverse les relations spatiales. Le réflexe pupillaire et certaines réponses à la lumière empruntent aussi des circuits qui ne nécessitent pas la perception visuelle corticale complète.
Audition : mécanique cochléaire et codage
Le tympan et les osselets transmettent les vibrations vers l’oreille interne. Le mouvement des liquides cochléaires déforme la membrane basilaire et les structures de l’organe de Corti. La cochlée possède une organisation tonotopique : la base, plus raide, répond préférentiellement aux fréquences élevées ; l’apex, plus souple, aux fréquences plus basses.
La déflexion des stéréocils ouvre ou ferme des canaux mécanosensibles. L’endolymphe est riche en potassium et possède un potentiel particulier ; lorsque les canaux s’ouvrent, le gradient électrochimique permet une entrée de potassium qui dépolarise la cellule ciliée. Le calcium participe ensuite à la libération de neurotransmetteur. Le potassium n’a donc pas partout le même sens de déplacement que dans l’exemple habituel d’un neurone baignant dans le liquide extracellulaire ordinaire.
Les cellules ciliées internes assurent l’essentiel de la transmission sensorielle vers les afférences auditives. Les externes participent à l’amplification et à l’affinement mécanique par leurs propriétés d’électromotilité. Le codage de fréquence combine organisation spatiale et, dans certains domaines, synchronisation temporelle. Les projections centrales sont largement bilatérales après les premiers relais ; l’audition ne suit pas une simple copie du croisement visuel.
Vestibule : mouvement et gravité
Les canaux semi-circulaires détectent les effets des accélérations angulaires. Leur cupule est déformée par les mouvements relatifs du liquide ; une rotation maintenue n’entretient pas indéfiniment la même réponse initiale. Les organes otolithiques, utricule et saccule, utilisent une membrane alourdie par des otoconies et renseignent sur les accélérations linéaires et l’orientation par rapport à la gravité.
Une inclinaison et une accélération de translation peuvent produire des effets partiellement semblables sur les otolithes. Leur interprétation nécessite l’intégration d’autres informations. Les paires de canaux des deux côtés fonctionnent de façon complémentaire, avec une activité de base permettant des augmentations et des diminutions de décharge.
Le réflexe vestibulo-oculaire stabilise le regard lorsque la tête bouge en commandant un mouvement compensateur des yeux. Il dépend de circuits rapides et peut être ajusté par l’expérience. Son existence montre qu’une information sensorielle peut être utile à l’action avant toute description consciente du mouvement.
Comparer les transductions
| Modalité | Événement initial | Réponse réceptrice typique | Information centrale |
|---|---|---|---|
| Toucher | Déformation mécanique | Modification de conductance | Contact, mouvement, texture |
| Vision | Activation d’un pigment | Hyperpolarisation à la lumière | Contrastes, espace, couleur |
| Audition | Déflexion des stéréocils | Potentiel gradué directionnel | Fréquence, intensité, temporalité |
| Vestibule | Déformation d’une structure sensorielle | Variation autour d’une activité de base | Mouvement de tête et gravité |
Cette comparaison ne supprime pas les différences entre sous-types. Elle oblige à séparer l’énergie reçue, le mécanisme local et la grandeur reconstruite par les réseaux.
Schéma de raisonnement
- Stimulus
- Transduction graduée
- Codage afférent
- Intégration centrale
- Perception ou réponse
Schéma de principe : lire les conditions et les limites dans le texte.
La représentation isole un trajet fonctionnel. Les voies réelles sont parallèles et comportent des rétrocontrôles ; certaines réponses se produisent sans perception consciente. Une activité sensorielle peut modifier le comportement, qui modifie à son tour l'information reçue.
Pourquoi une baisse de glutamate peut signaler la lumière
Dans l'obscurité, le photorécepteur est relativement dépolarisé et libère du glutamate. La lumière ferme une partie des canaux dépendants du GMPc, hyperpolarise la cellule et réduit cette libération. La conséquence sur une cellule bipolaire dépend ensuite de ses récepteurs.
Question. Peut-on conclure que toutes les cellules bipolaires sont inhibées par la lumière parce que le photorécepteur libère moins de neurotransmetteur ?
Correction. Non. Les voies ON et OFF transforment différemment la variation de glutamate : les bipolaires ON inversent le signe du signal, tandis que les OFF le conservent dans le modèle principal. Un neurotransmetteur ne détermine donc pas seul le signe de la réponse. Ce circuit rappelle qu'une diminution de sécrétion peut transmettre activement une information.
Exercices progressifs
Exercice 1. Un stimulus plus fort produit-il nécessairement un potentiel d’action plus grand ?
Exercice 2. Que gagne et que perd un circuit très convergent ?
Exercice 3. Pourquoi la lumière diminue-t-elle la libération de glutamate d’un photorécepteur ?
Exercice 4. Quelle région cochléaire répond préférentiellement aux fréquences élevées ?
Exercice 5. Nociception et douleur sont-elles deux termes interchangeables ?
Corrections argumentées
Correction 1. Non. Le codage utilise notamment fréquence, temporalité et recrutement. L’amplitude du potentiel d’action propagé n’est pas un indicateur proportionnel de l’intensité.
Correction 2. Il peut gagner en sensibilité en additionnant des entrées, mais perdre en précision de localisation. Il faut préciser le circuit et le contexte.
Correction 3. La cascade lumineuse réduit le GMP cyclique, ferme des canaux et hyperpolarise la cellule ; la libération de neurotransmetteur diminue.
Correction 4. La base de la cochlée. L’apex répond préférentiellement aux fréquences plus basses ; cette organisation est la tonotopie.
Correction 5. Non. La nociception est un traitement nerveux de signaux nocifs ; la douleur est une expérience qui dépend aussi de l’intégration et du contexte.
Références et portée
Rédaction originale et exemples construits. Ressources universitaires et institutionnelles consultées le 1 octobre 2026 pour recoupement ciblé ; elles ne certifient pas le programme local.
Partie 5 · Système nerveux autonome : circuits, récepteurs et réflexes viscéraux
Objectifs et définition fonctionnelle
Le système nerveux autonome règle notamment les muscles lisses, le muscle cardiaque et les glandes. Le système moteur somatique commande les fibres musculaires squelettiques. Cette distinction ne se réduit pas à volontaire contre involontaire : un réflexe somatique peut se produire sans décision consciente, tandis que l'état émotionnel et des actions volontaires peuvent influencer des réponses autonomes. Le critère le plus robuste reste l'organisation des voies et la nature de l'effecteur.
Le cours vise à tracer un circuit complet, placer son relais ganglionnaire, identifier le médiateur de chaque synapse et prévoir une réponse à partir du récepteur. La commande autonome est intégrée avec les afférences viscérales, les réseaux du tronc cérébral, la moelle, l'hypothalamus et d'autres régions. Elle n'est pas un ensemble de câbles indépendants du système central. Les principes de potentiel d'action et de transmission sont développés en 10-01, partie 2.
Deux neurones efférents et des afférences distinctes
La voie efférente autonome typique comporte un neurone préganglionnaire dont le corps cellulaire est central, puis un neurone postganglionnaire situé dans un ganglion périphérique. L'axone du second atteint l'effecteur. Le mot ganglion désigne ici un relais avec synapses ; un ganglion sensitif spinal contient des corps cellulaires de neurones afférents et n'est pas organisé comme ce relais autonome. Partager le même nom général ne signifie pas partager le même fonctionnement.
- Neurone préganglionnaire au corps cellulaire central
- Relais dans un ganglion périphérique
- Axone du neurone postganglionnaire
- Effecteur atteint
Schéma de principe : lire les conditions et les limites dans le texte.
Une afférence viscérale informe le système central sur un état mécanique ou chimique. Elle peut cheminer avec des nerfs qui contiennent aussi des fibres autonomes efférentes, mais sa direction et son rôle sont différents. Un réflexe comprend donc récepteur, voie afférente, intégration, voie efférente et effecteur. Omettre la branche afférente transforme une boucle de régulation en simple commande ouverte.
La myélinisation est généralement faible sur les fibres préganglionnaires et absente sur beaucoup de fibres postganglionnaires. La vitesse de conduction et la distance doivent être considérées avec le type de synapse et la dynamique de l'effecteur. Une contraction lente de muscle lisse ne signifie pas nécessairement que le signal nerveux lui-même n'arrive qu'après plusieurs secondes.
Organisation sympathique thoracolombaire
Les neurones préganglionnaires sympathiques se trouvent principalement dans la moelle thoracique et lombaire haute, classiquement T1 à L2 dans le schéma fondamental. Leurs fibres quittent la moelle par les racines ventrales puis atteignent la chaîne sympathique par les rameaux communicants blancs. Elles peuvent faire relais au même niveau, monter ou descendre dans la chaîne, ou la traverser pour atteindre un relais prévertébral.
Les ganglions paravertébraux sont disposés le long du rachis ; les prévertébraux se trouvent en avant, en relation avec de grands axes abdominaux. La présence de ganglions cervicaux et sacrés n'implique donc pas des origines préganglionnaires sympathiques à chaque niveau correspondant. Le trajet dans la chaîne permet de distribuer des commandes issues d'une origine centrale plus limitée.
Les rameaux gris ramènent notamment des fibres postganglionnaires vers les nerfs spinaux pour la paroi corporelle. Un nerf splanchnique doit être défini précisément : le terme ne garantit pas qu'il transporte toujours les mêmes catégories de fibres. Les splanchniques pelviens sont parasympathiques, alors que beaucoup de splanchniques thoraco-abdominaux portent des fibres sympathiques préganglionnaires. Apprendre « splanchnique = sympathique » sans exception serait trompeur.
Organisation parasympathique craniosacrée
La présentation anatomique classique situe les origines parasympathiques dans des noyaux du tronc cérébral associés aux nerfs III, VII, IX et X, ainsi que dans les segments sacrés S2 à S4. Les ganglions sont généralement proches de l'organe ou dans sa paroi ; les fibres préganglionnaires sont alors relativement longues et les postganglionnaires courtes. Il s'agit d'une comparaison de disposition, pas d'une règle métrique pour chaque axone.
- Corps cellulaire préganglionnaire central
- Sympathique dans la moelle thoracique et lombaire haute
- Parasympathique dans le tronc cérébral et S2 à S4
Deux branches distinctes.
Le III rejoint notamment le ganglion ciliaire pour les effecteurs oculaires. Les voies du VII et du IX participent à l'innervation sécrétoire de glandes céphaliques. Le vague dessert de nombreux viscères thoraciques et abdominaux. Les voies sacrées contribuent aux fonctions pelviennes et aux territoires digestifs distaux. La limite digestive détaillée doit être apprise avec la carte des plexus et la convention du cours, sans confondre innervation extrinsèque et réseaux entériques locaux.
Un même organe peut recevoir les deux divisions, mais tous les tissus n'ont pas une double innervation antagoniste équivalente. De nombreux vaisseaux dépendent surtout d'une modulation sympathique de leur tonus. La diminution d'une activité sympathique peut alors produire un effet sans qu'une fibre parasympathique opposée doive être activée.
Médiateurs : le récepteur détermine la réponse
Dans les ganglions autonomes, les fibres préganglionnaires libèrent de l'acétylcholine qui agit notamment sur des récepteurs nicotiniques neuronaux. Ceux-ci sont des canaux activés par ligand. Les effecteurs parasympathiques reçoivent surtout de l'acétylcholine sur des récepteurs muscariniques, couplés aux protéines G. Le même médiateur peut donc agir par des mécanismes postsynaptiques différents.
La plupart des terminaisons sympathiques postganglionnaires utilisent la noradrénaline, avec des récepteurs adrénergiques dont les sous-types ont des effets distincts. Les récepteurs alpha1 participent souvent à la contraction de muscles lisses vasculaires, les bêta1 à la modulation cardiaque, les bêta2 à la relaxation de certains muscles lisses. Ces associations sont des repères : une réponse intégrée dépend de la distribution des récepteurs, de la concentration du signal et de l'état du tissu.
Les glandes sudoripares eccrines constituent une exception importante : leur commande sympathique est cholinergique, principalement muscarinique à l'effecteur. La chimie ne suffit donc pas à nommer une division. Il faut remonter au trajet et à l'origine du neurone. L'acétylcholine n'est pas un marqueur exclusif du parasympathique.
Médullosurrénale et fin du signal
Les cellules chromaffines de la médullosurrénale reçoivent une commande sympathique préganglionnaire cholinergique et libèrent des catécholamines dans le sang. Le signal atteint alors des cibles à distance par la circulation. Cette disposition ressemble fonctionnellement à un relais sympathique modifié, mais ne comporte pas un long axone postganglionnaire allant de chaque cellule chromaffine vers son organe cible.
La durée d'une réponse dépend de l'élimination du médiateur et des mécanismes intracellulaires. L'acétylcholine est hydrolysée rapidement dans de nombreux espaces de transmission ; la noradrénaline libérée localement fait notamment l'objet d'une recapture. Un signal endocrine circulant a d'autres conditions de distribution et de clairance. Prolonger la présence d'un médiateur peut modifier l'intensité et la durée sans multiplier les potentiels d'action émis.
Les terminaisons autonomes possèdent souvent des varicosités réparties le long des axones. Le contact avec le muscle lisse n'a donc pas toujours la géométrie d'une plaque motrice squelettique unique. Cette diffusion locale et le couplage entre cellules effectrices contribuent à une réponse de tissu plutôt qu'à une correspondance stricte un bouton-une fibre.
Tonus, opposition et coopération
Le tonus autonome correspond à une activité de base modulable. Au niveau cardiaque, la modulation vagale et sympathique agit notamment sur les cellules rythmogènes et la conduction ; le système autonome ne fabrique pas à chaque battement une impulsion nécessairement absente sans lui. L'automatisme cardiaque persiste dans des conditions appropriées sans innervation intacte, tandis que sa fréquence et son adaptation changent.
Les divisions peuvent produire des effets opposés sur un même paramètre, complémentaires sur une fonction ou très inégalement distribués. Pour la pupille, des muscles différents modifient le diamètre. Pour certaines sécrétions, les deux commandes peuvent stimuler des composantes différentes. « Sympathique accélère tout, parasympathique freine tout » est donc une règle fausse : la variable et l'effecteur doivent être nommés.
Le résultat observé intègre aussi des mécanismes locaux. Dans un muscle actif, des métabolites peuvent favoriser une vasodilatation malgré une activation sympathique générale. La régulation systémique et la demande tissulaire se combinent. Un effet local ne permet pas de conclure que l'ensemble de la division autonome correspondante est devenu inactif.
Baroréflexe : construire une boucle causale
Les barorécepteurs artériels répondent à l'étirement de parois situées notamment dans les sinus carotidiens et la crosse aortique. Une hausse de pression qui accroît cet étirement augmente leur activité afférente dans le cadre usuel. L'intégration centrale modifie alors les sorties vagales et sympathiques, ce qui tend à réduire fréquence cardiaque, contractilité et tonus vasculaire selon les effecteurs concernés.
- Hausse de pression artérielle
- Étirement accru des parois artérielles
- Activité afférente des barorécepteurs augmentée
- Intégration centrale
- Sorties vagales et sympathiques modifiées
- Tendance à réduire fréquence, contractilité et tonus
Schéma de principe : lire les conditions et les limites dans le texte.
Une baisse de pression provoque le raisonnement inverse : moins d'afférences barosensibles, modification des sorties centrales, augmentation de certaines activités sympathiques et retrait vagal. Ce réflexe contribue à l'ajustement rapide ; il ne constitue pas à lui seul le contrôle chronique du volume sanguin et de la pression. Les reins et les systèmes hormonaux interviennent à d'autres échelles temporelles.
La rétroaction est dite négative parce que la réponse tend à s'opposer à la perturbation de la variable contrôlée. Elle n'exige pas que toutes les flèches du circuit soient inhibitrices. Une excitation afférente peut aboutir à une réponse correctrice par l'organisation du réseau. La polarité d'une synapse et le signe global d'une boucle sont deux notions distinctes.
Réseaux entériques et fonctions pelviennes
Le système entérique contient des réseaux neuronaux dans la paroi digestive. Les plexus myentérique et sous-muqueux participent à l'organisation de la motricité, des sécrétions et de relations locales. Ils reçoivent des influences extrinsèques, mais peuvent produire certains réflexes locaux. L'autonomie relative de ces circuits ne signifie pas indépendance totale de l'état central, hormonal ou immunitaire.
La miction illustre une coordination entre composantes autonomes et somatiques. Le détrusor est un muscle lisse ; le sphincter urétral externe est strié. Stocker et évacuer requiert une coordination temporelle des effecteurs, pas seulement la contraction isolée d'une paroi. Les afférences de remplissage et les centres supraspinaux participent à cette organisation. Une carte qui ne comporte que deux flèches antagonistes sur la vessie manque donc une partie du mécanisme.
L'analyse générale suit quatre questions : quel capteur renseigne, où se fait l'intégration, quelles fibres commandent, quelle propriété de l'effecteur change ? Cette méthode permet de comparer des fonctions très différentes sans transformer leurs particularités en liste de slogans.
Exercices discriminants
Exercice 1. Une fibre libère de l'acétylcholine sur une glande sudoripare eccrine. Est-elle nécessairement parasympathique ?
Exercice 2. Où placer le corps cellulaire du neurone postganglionnaire ? Comparer au ganglion spinal sensitif.
Exercice 3. Pourquoi des fibres sympathiques peuvent-elles atteindre la tête malgré une origine thoracolombaire ?
Exercice 4. Comparer la médullosurrénale à une terminaison sympathique ordinaire.
Exercice 5. Lors d'une hausse de pression artérielle, prévoir la première modification du signal barorécepteur puis la tendance de la réponse cardiaque.
Exercice 6. Une vasodilatation prouve-t-elle toujours l'activation d'un nerf parasympathique vasculaire ?
Exercice 7. Pourquoi un cœur isolé peut-il battre alors que sa régulation autonome a disparu ?
Exercice 8. La vessie peut-elle être décrite uniquement comme un effecteur de muscle lisse sans commande somatique associée ?
Corrections développées
Correction 1. Non. Il s'agit de l'exception sympathique cholinergique classique. La division se définit par l'origine et le circuit, et le médiateur précise la synapse. La déduction « acétylcholine donc parasympathique » échouerait aussi au niveau des ganglions sympathiques.
Correction 2. Dans un ganglion autonome périphérique où il reçoit des synapses préganglionnaires. Le ganglion spinal sensitif contient des corps cellulaires afférents et n'est pas un relais de deux neurones efférents comparable. Confondre ces objets inverse le sens de circulation de l'information.
Correction 3. Elles montent dans la chaîne paravertébrale avant de faire relais, notamment dans les ganglions cervicaux. La hauteur de distribution n'est pas identique à la hauteur du corps cellulaire préganglionnaire. La chaîne crée cette dissociation spatiale.
Correction 4. La commande préganglionnaire agit sur des cellules chromaffines qui sécrètent dans le sang. Une terminaison ordinaire libère localement près d'un effecteur. Les contraintes de distribution, d'élimination et de délai ne sont donc pas identiques.
Correction 5. L'étirement accru augmente usuellement l'activité afférente. L'intégration favorise une réponse tendant à diminuer la pression, notamment par une modulation cardiaque appropriée. Le capteur ne mesure pas directement un nombre affiché en mmHg : il transduit une déformation de la paroi.
Correction 6. Non. Elle peut résulter d'un retrait sympathique ou de facteurs locaux. La variable observée ne permet pas à elle seule d'identifier la voie causale. Une expérience discriminante devrait isoler ou mesurer les contributions.
Correction 7. Les cellules rythmogènes possèdent un automatisme intrinsèque. Les voies autonomes modulent ce rythme et les performances ; elles ne sont pas indispensables à la genèse de chaque cycle dans une préparation viable appropriée.
Correction 8. Non. Le détrusor et les sphincters ont des natures et commandes différentes. La coordination inclut un effecteur strié somatique, des voies autonomes et une intégration centrale. La fonction complète ne se réduit pas à l'un de ces composants.
Références et portée
Consultation le 2 octobre 2026. Les tableaux généraux doivent être interprétés avec les exceptions décrites, notamment sudation sympathique cholinergique et absence de double innervation universelle. Les modèles présentés ne remplacent ni le détail des noyaux dans un cours local ni une analyse clinique individuelle.
Partie 6 · Axes endocriniens et physiologie reproductive
Prérequis et objectifs
Prérequis : récepteurs, hormones et reproduction.
À la fin de ce cours : lire un axe endocrinien ; distinguer hormone libre et totale ; expliquer rétrocontrôles et cycle ovarien.
Sécrétion, transport et réponse
Une hormone agit sur des cellules possédant les récepteurs et relais appropriés. Sa concentration dépend de sécrétion, distribution, liaison et élimination. Un taux élevé ne prouve pas une production élevée si la clairance diminue. Une concentration totale peut varier avec les protéines porteuses alors que la fraction libre évolue autrement.
Les hormones peptidiques sont généralement stockées dans des vésicules et agissent sur des récepteurs membranaires. Les stéroïdes sont synthétisés à partir de cholestérol et agissent souvent via des récepteurs intracellulaires. Les hormones thyroïdiennes possèdent des propriétés de transport et de stockage particulières. Ces catégories prédisent des tendances de cinétique, sans exclure des effets rapides ou indirects.
La sécrétion est parfois pulsatile ou circadienne. Une mesure isolée peut tomber sur un pic ou un creux. La réponse dépend aussi de la durée d’exposition et de l’adaptation des récepteurs. Le contexte temporel fait donc partie de l’interprétation physiologique.
Axes hypothalamo-hypophysaires
L’hypothalamus contrôle l’adénohypophyse par des facteurs libérés dans un système porte. L’hypophyse sécrète des hormones trophiques qui stimulent des glandes périphériques. Les hormones périphériques exercent souvent un rétrocontrôle négatif sur les étages amont. La neurohypophyse, quant à elle, libère vasopressine et ocytocine synthétisées par des neurones hypothalamiques.
Dans un axe simple, une hormone périphérique basse avec hormone trophique élevée évoque un défaut glandulaire périphérique. Une hormone périphérique basse avec hormone trophique basse ou inadaptée évoque une origine centrale possible. Le raisonnement exige de considérer traitements, délais, protéines porteuses et autres contextes ; deux chiffres ne constituent pas toujours un diagnostic définitif.
Thyroïde
La TSH stimule la fonction folliculaire thyroïdienne. L’iodure est capté, incorporé à la thyroglobuline puis utilisé dans la synthèse de T4 et T3. Les hormones stockées dans le colloïde sont libérées après reprise et protéolyse de la thyroglobuline. Une partie importante de T3 provient de conversion périphérique de T4.
Les hormones thyroïdiennes modulent métabolisme, croissance et développement. Elles circulent largement liées à des protéines. La TSH répond au rétrocontrôle des hormones disponibles, mais les délais et les états centraux peuvent compliquer la relation. Une augmentation de protéine porteuse peut augmenter l’hormone totale sans reproduire l’effet d’un excès de fraction libre.
Surrénales
Le cortisol est contrôlé par l’axe CRH-ACTH avec rythme et réponses au stress. Il influence disponibilité des substrats, fonction vasculaire et réponses immunitaires. Son action ne se résume pas à une hormone « mauvaise » : elle participe à l’adaptation, tandis qu’un excès prolongé modifie de nombreux tissus.
L’aldostérone dépend surtout du système rénine-angiotensine et de la kaliémie, l’ACTH n’étant pas son contrôle principal durable. Elle favorise des transports rénaux de sodium et potassium. La médullosurrénale produit des catécholamines sous commande sympathique ; son origine et sa régulation diffèrent du cortex.
Pancréas endocrine et calcium
L’insuline, produite par les cellules bêta, augmente après une élévation de glucose et d’autres signaux nutritifs. Le métabolisme du glucose ferme des canaux potassiques sensibles à l’ATP, favorise dépolarisation, entrée de calcium et exocytose. Le glucagon des cellules alpha soutient notamment la production hépatique de glucose dans des contextes appropriés. L’insuline n’est pas la seule hormone contrôlant chaque flux énergétique.
La PTH répond principalement à la baisse du calcium ionisé via un récepteur sensible au calcium. Elle agit sur rein et tissu osseux et favorise indirectement l’absorption intestinale par activation de la vitamine D. Le calcium total dépend aussi de l’albumine ; la fraction ionisée est la variable physiologique directement pertinente pour plusieurs capteurs et fonctions.
Axe gonadotrope et cycle ovarien
La GnRH pulsatile stimule LH et FSH. Dans le testicule, LH agit sur Leydig et FSH sur Sertoli, avec coopération des androgènes et inhibine. Une stimulation continue prolongée ne reproduit pas nécessairement la stimulation pulsatile physiologique, car les récepteurs et relais peuvent se désensibiliser.
Dans l’ovaire, FSH soutient la croissance folliculaire et l’activité de la granulosa ; LH agit notamment sur la thèque et le follicule mature. Pendant la phase folliculaire, l’estradiol augmente. Une exposition suffisamment élevée et prolongée dans le contexte préovulatoire produit un rétrocontrôle positif favorisant le pic de LH. Ce changement de signe est spécifique d’un état, pas une propriété constante de tous les œstrogènes à toute concentration.
Après ovulation, le corps jaune produit notamment progestérone et estradiol. La progestérone transforme l’endomètre prolifératif en endomètre sécrétoire. En l’absence de maintien approprié, la régression lutéale entraîne une chute hormonale et les menstruations. En début de grossesse, l’hCG contribue au maintien du corps jaune avant la transition des sources hormonales.
| Phase | Structure ovarienne dominante | Tendance hormonale | Endomètre |
|---|---|---|---|
| Folliculaire | Follicules en croissance | Estradiol croissant | Prolifération |
| Périovulatoire | Follicule mature | Pic de LH | Transition |
| Lutéale | Corps jaune | Progestérone importante | Sécrétion |
Les durées varient ; un cycle n’est pas obligatoirement de 28 jours et l’ovulation n’est pas toujours au quatorzième jour. Le modèle permet de comprendre les relations, pas de dater chaque personne par une règle fixe.
- Hypothalamus
- Hypophyse
- Glande périphérique
- Hormone active
- Rétrocontrôle amont
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : certains systèmes, dont l’aldostérone et la PTH, ne suivent pas ce modèle comme voie principale ; il faut identifier le capteur réel.
Lire une hormone trophique par rapport à son signal de retour
Cas comparatif. A présente une hormone périphérique basse et une hormone trophique élevée. B présente une hormone périphérique basse et une hormone trophique dans l'intervalle habituel.
Correction. A est compatible avec un défaut périphérique et une levée du rétrocontrôle. Chez B, une valeur trophique située dans l'intervalle habituel peut être inappropriée : on attendrait une augmentation en réponse au manque périphérique. Un défaut central est donc possible, sans être prouvé par ce seul couple. Temporalité, traitements, maladies intercurrentes et qualité du dosage doivent être examinés. Le raisonnement porte sur la cohérence de l'axe, pas seulement sur deux cases « normal/anormal ». Une valeur de laboratoire est une observation à interpréter dans une boucle de régulation.
Lecture visuelle : Rétrocontrôle négatif : distinguer trajet et inhibition
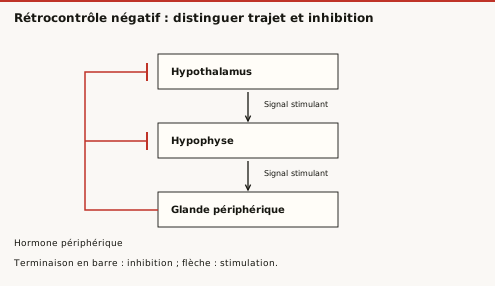
Question de lecture. Une baisse d’hormone périphérique peut-elle augmenter un signal en amont ?
Correction. Oui si elle réduit l’inhibition dans cet axe et si les autres fonctions sont conservées. Cette prédiction est conditionnelle ; une atteinte centrale peut modifier l’ensemble de la réponse.
Exercices progressifs
Exercice 1. Hormone périphérique basse et trophique élevée : quel niveau de défaut évoquer dans un axe simple ?
Exercice 2. La neurohypophyse synthétise-t-elle elle-même la vasopressine ?
Exercice 3. Quel contrôle domine durablement l’aldostérone ?
Exercice 4. Les œstrogènes exercent-ils toujours un rétrocontrôle négatif ?
Exercice 5. Pourquoi une hormone totale élevée n’implique-t-elle pas toujours une fraction libre élevée ?
Corrections argumentées
Correction 1. Un défaut de la glande périphérique est compatible avec ce profil, car la levée du rétrocontrôle augmente l’étage trophique. Le contexte doit être vérifié.
Correction 2. Non. Elle la stocke et la libère à partir de terminaisons de neurones hypothalamiques qui l’ont synthétisée.
Correction 3. Le système rénine-angiotensine et la kaliémie, plutôt que l’ACTH comme commande principale à long terme.
Correction 4. Non. Dans le contexte préovulatoire, une exposition élevée et prolongée favorise un rétrocontrôle positif et le pic de LH.
Correction 5. Une augmentation des protéines porteuses peut augmenter la quantité liée. La relation entre totale et libre dépend de l’équilibre de liaison et de la régulation.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Ce cours, en cartes de révision
Lire un cours ne suffit pas à le retenir. Dépose ce cours, ou le poly de ta fac, dans Ossik : il en sort des cartes sourcées à la page, qu’il te ressort au bon moment.