Ce cours réunit 6 parties : 1. Cycle cardiaque, hémodynamique et régulation circulatoire ; 2. Ventilation, échanges et transport des gaz ; 3. Filtration, transports rénaux et concentration urinaire ; 4. Équilibre acido-basique et régulations intégrées ; 5. Physiologie digestive, absorption et état nourri ; 6. Calcium et phosphate : compartiments, os, rein et régulations hormonales.
Partie 1 · Cycle cardiaque, hémodynamique et régulation circulatoire
Prérequis et objectifs
Prérequis : anatomie cardiaque, pression et débit.
À la fin de ce cours : relier cycle mécanique et électrique ; calculer débit et résistances ; expliquer les ajustements rapides.
Débit et conservation
Le débit cardiaque Q est le produit de la fréquence f par le volume d’éjection systolique VES. À 70 battements/min et 70 mL/battement, Q vaut 4,9 L/min. Le VES est la différence entre volumes télédiastolique et télésystolique. La fraction d’éjection est VES/VTD, sans unité, souvent exprimée en pourcentage ; elle n’est pas le débit.
À l’état stationnaire, les débits des deux ventricules sont égaux en moyenne, malgré leurs pressions différentes. Un déséquilibre persistant accumulerait du sang dans l’une des circulations. Le retour veineux et le débit cardiaque sont donc deux aspects du même circuit fermé, pas deux quantités librement indépendantes à long terme.
Cycle valvulaire
Pendant le remplissage, les valves atrioventriculaires sont ouvertes et les valves artérielles fermées. La contraction ventriculaire élève la pression, ferme les valves atrioventriculaires puis commence une phase isovolumétrique. Lorsque la pression ventriculaire dépasse celle de l’artère, la valve artérielle s’ouvre et l’éjection débute.
La relaxation ferme la valve artérielle lorsque le gradient s’inverse. Une relaxation isovolumétrique précède l’ouverture atrioventriculaire. Les quatre phases d’une boucle pression-volume sont donc remplissage, contraction isovolumétrique, éjection, relaxation isovolumétrique. Le volume ne change pas pendant les phases où toutes les valves sont fermées, dans le modèle sans fuite.
Les bruits cardiaques usuels sont liés aux événements de fermeture et aux vibrations associées. Les muscles papillaires préviennent le prolapsus valvulaire ; ils ne déterminent pas seuls l’ouverture. La chronologie dépend des différences de pression.
Électricité et mécanique
L’ECG enregistre des différences de potentiel liées à l’activité électrique globale. L’onde P correspond principalement à la dépolarisation atriale ; le QRS à la dépolarisation ventriculaire ; l’onde T à la repolarisation ventriculaire. Une activité électrique précède et organise la mécanique mais ne mesure pas directement la force d’éjection.
Le nœud sinusal possède un automatisme ; le nœud atrioventriculaire ralentit la conduction et permet une coordination atrioventriculaire. Les cellules nodales n’ont pas exactement le même potentiel d’action que les cardiomyocytes ventriculaires. Un modèle unique de canal sodique rapide ne décrit pas toutes les cellules cardiaques.
Précharge, postcharge et contractilité
La précharge reflète l’étirement initial des fibres avant contraction, approché par des variables comme volume ou pression télédiastolique selon le contexte. La postcharge représente les contraintes contre lesquelles le ventricule éjecte ; elle dépend de pression artérielle, géométrie et propriétés vasculaires. La contractilité décrit une propriété intrinsèque de production de force à conditions de charge comparables.
Le mécanisme de Frank-Starling permet qu’un remplissage plus grand augmente l’éjection dans une plage physiologique. Il contribue à équilibrer les deux pompes. Il ne signifie pas qu’un remplissage illimité améliore toujours le débit. Une hausse de postcharge tend initialement à réduire le VES et à augmenter le volume résiduel, toutes choses égales par ailleurs.
Hémodynamique vasculaire
Le débit moyen suit la relation Q = ΔP/R. La pression motrice est une différence entre amont et aval. Pour la circulation systémique, on utilise approximativement pression artérielle moyenne moins pression atriale droite. La résistance ne se déduit pas de la seule pression systolique.
Dans le modèle de Poiseuille, R est proportionnelle à viscosité × longueur / rayon à la puissance quatre. Ce modèle suppose un fluide et un tube idéalisés ; le sang et les vaisseaux réels sont plus complexes. Il montre néanmoins pourquoi une petite variation de rayon modifie fortement la résistance. Les résistances en série s’additionnent ; en parallèle, les conductances s’additionnent.
La compliance est ΔV/ΔP. Une veine peut stocker un volume important pour une variation de pression modérée ; les artères élastiques amortissent la pulsatilité. Le débit local dépend aussi des besoins métaboliques et de la régulation artériolaire. La pression artérielle moyenne peut être approchée par PAD + un tiers de la pression pulsée à fréquence de repos, mais cette formule devient moins précise lorsque la durée relative de systole change.
Régulations
Les barorécepteurs carotidiens et aortiques détectent des déformations liées à la pression. Une chute de pression diminue leur décharge et modifie les centres autonomes, favorisant généralement tachycardie, augmentation de contractilité, vasoconstriction artériolaire et veineuse. La réponse rapide limite la chute mais ne restaure pas à elle seule un volume sanguin perdu.
À plus long terme, le rein et les régulations hormonales modifient sodium, eau et tonus vasculaire. Les facteurs locaux peuvent redistribuer le débit : pendant l’effort, les muscles actifs se vasodilatent tandis que d’autres territoires s’ajustent. Une hausse du débit cardiaque ne signifie pas que tous les organes reçoivent la même augmentation relative.
| Variable | Expression ou déterminant | Unité habituelle |
|---|---|---|
| Débit | Fréquence × VES | L/min |
| VES | VTD − VTS | mL |
| Fraction d’éjection | VES/VTD | % |
| Résistance | ΔP/Q | mmHg·min/L |
| Compliance | ΔV/ΔP | mL/mmHg |
- Déformation artérielle réduite
- Décharge baroréceptrice réduite
- Réponse autonome
- Cœur et vaisseaux ajustés
- Pression partiellement restaurée
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il décrit une boucle rapide et simplifiée ; son réglage et son efficacité changent avec le contexte.
Figure intégrée : atlas 24-10
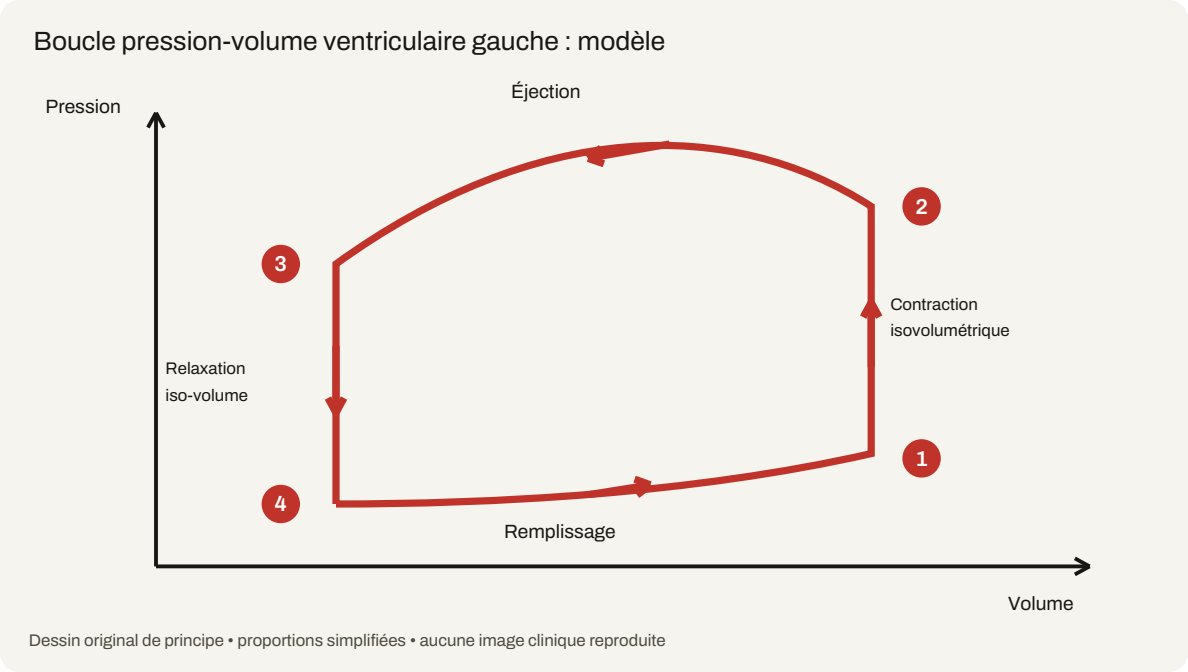
Légende du dessin
1. Fermeture mitrale : fin du remplissage, début de contraction isovolumétrique.
2. Ouverture aortique : début de l’éjection.
3. Fermeture aortique : fin de l’éjection, début de relaxation isovolumétrique.
4. Ouverture mitrale : début du remplissage suivant.
Lecture et limites
L’axe horizontal porte le volume ventriculaire et l’axe vertical la pression. Le temps n’est sur aucun axe : il est parcouru en suivant la boucle dans le sens indiqué. Depuis le point inférieur droit, la pression augmente à volume presque constant, puis le volume diminue pendant l’éjection. La pression redescend ensuite à volume presque constant, et le remplissage ramène vers la droite.
La largeur de la boucle correspond au volume d’éjection dans ce modèle. L’aire encerclée est liée au travail externe pression-volume par cycle, avec des unités cohérentes. La hauteur seule ne mesure donc pas le travail. Une boucle étroite et haute ne peut être comparée à une boucle large sans considérer l’ensemble de l’aire.
Les phases dites isovolumétriques correspondent ici aux périodes où les valves représentées sont fermées. La géométrie est qualitative et aucune valeur clinique n’est donnée. Le diagramme ne montre ni le ventricule droit ni les pressions atriales. Une modification de précharge, postcharge ou contractilité peut changer la boucle ; il faut préciser laquelle avant d’interpréter une variation.
Le dessin figure également dans la planche autonome 24-02, partie 9, avec un exercice de restitution.
Une même fraction ne garantit pas le même débit
Données. A : volume télédiastolique 120 mL et volume télésystolique 48 mL. B : 80 mL et 32 mL. La fréquence vaut 75/min dans les deux cas.
Correction. A éjecte 72 mL, B 48 mL. Les fractions d'éjection sont pourtant identiques : 72/120 = 48/80 = 60 %. Les débits valent respectivement 5,4 et 3,6 L/min. Une fraction est un rapport ; elle ne décrit pas à elle seule un volume éjecté, un débit ou une contractilité intrinsèque. Pour interpréter une variation, on examine précharge, postcharge, fréquence et contexte. Les chiffres sont des données pédagogiques construites et ne constituent pas des seuils de diagnostic.
Reconstruire une boucle pression-volume
On place le volume ventriculaire en abscisse et sa pression en ordonnée. Pendant le remplissage, le volume augmente alors que la valve atrioventriculaire est ouverte. La contraction isovolumétrique commence après sa fermeture : les deux valves sont fermées, la pression monte et le volume reste voisin du volume télédiastolique. L'éjection débute lorsque la pression ventriculaire dépasse celle de l'artère en aval ; le volume diminue. Après fermeture de la valve artérielle, la relaxation isovolumétrique abaisse la pression à volume télésystolique presque constant.
Le terme isovolumétrique ne veut pas dire absence d'activité énergétique. Le muscle développe ou relâche une tension, mais sans flux valvulaire net dans le modèle. L'aire intérieure de la boucle représente un travail mécanique externe par cycle ; elle n'est pas la totalité de l'énergie métabolique consommée par le myocarde.
Changer une condition à la fois
Une augmentation de précharge peut augmenter l'éjection par le mécanisme de Frank-Starling dans une plage physiologique, sans augmentation initiale de contractilité. Une hausse de postcharge s'oppose à l'éjection ; une augmentation de contractilité peut diminuer le volume télésystolique à conditions comparables. Comparer deux boucles n'est interprétable que si l'on sait quelles variables ont été contrôlées. Une fraction d'éjection identique ne prouve pas des pressions ni un travail identiques.
La pression artérielle moyenne se relie approximativement au débit cardiaque multiplié par la résistance vasculaire systémique, en tenant compte de la pression de sortie. Le débit seul ne détermine donc pas la pression. Le baroréflexe agit rapidement sur plusieurs composantes ; le contrôle du volume et les adaptations rénales opèrent selon d'autres dynamiques.
Calcul avec conversion d'unités
Exercice. Approcher le travail d'éjection par une pression constante de 100 mmHg et un volume éjecté de 70 mL. Utiliser 1 mmHg = 133,322 Pa.
Correction. La pression vaut 13332,2 Pa et le volume 70 × 10-6 m³. Leur produit vaut environ 0,933 J par battement. À 75 battements/min, la puissance externe moyenne de ce modèle vaut 0,933 × 75/60 ≈ 1,17 W. Ce résultat ignore la variation de pression réelle, d'autres composantes du travail et les pertes ; il ne mesure pas directement la dépense métabolique du cœur.
Exercices progressifs
Exercice 1. Avec VTD 120 mL et VTS 50 mL, calculer VES et fraction d’éjection.
Exercice 2. À 80/min, quel débit pour ce VES ?
Exercice 3. Pendant quelle phase le volume baisse-t-il ?
Exercice 4. Si le rayon d’un tube idéal est divisé par deux, que devient R ?
Exercice 5. Le baroréflexe peut-il remplacer immédiatement un litre de sang perdu ?
Corrections argumentées
Correction 1. VES = 70 mL ; fraction = 70/120 = 0,583, soit environ 58 %.
Correction 2. 80 × 70 = 5600 mL/min, soit 5,6 L/min.
Correction 3. Pendant l’éjection. Les deux phases isovolumétriques conservent le volume dans le modèle de valves étanches.
Correction 4. Elle est multipliée par 16, à viscosité et longueur constantes, car R varie comme 1/r⁴.
Correction 5. Non. Il ajuste rapidement cœur et vaisseaux mais ne crée pas de volume. Les transferts liquidiens et réponses rénales/hormonales interviennent à d’autres échelles.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 2 · Ventilation, échanges et transport des gaz
Prérequis et objectifs
Prérequis : pressions partielles, diffusion et circulation.
À la fin de ce cours : calculer la ventilation utile ; distinguer pression et contenu ; expliquer les rapports ventilation/perfusion.
Ventiler n’est pas encore échanger
La ventilation minute VE est volume courant VT × fréquence f. Une partie du volume reste dans les voies conductrices et ne renouvelle pas directement les alvéoles d’échange. La ventilation alvéolaire VA est approximativement (VT − espace mort VD) × f. L’espace mort physiologique comprend la composante anatomique et des unités ventilées insuffisamment perfusées.
Avec VT = 500 mL, VD = 150 mL et f = 12/min, VE = 6 L/min mais VA = 4,2 L/min. Si la même ventilation minute est obtenue par 250 mL à 24/min, VA = 2,4 L/min. Une respiration plus rapide et superficielle peut donc ventiler moins efficacement malgré un même volume total par minute.
Mécanique ventilatoire
L’inspiration calme résulte surtout de la contraction diaphragmatique et de l’expansion thoracique. La pression pleurale devient plus négative, la pression transpulmonaire augmente et les poumons se distendent. L’air entre lorsque la pression alvéolaire devient légèrement inférieure à l’atmosphère. À la fin d’une inspiration sans débit, les pressions alvéolaire et atmosphérique s’égalisent même si le volume reste élevé.
La compliance est ΔV/ΔP. Elle dépend du tissu et de la tension superficielle. Le surfactant réduit cette tension et contribue à la stabilité, particulièrement à faible volume. Les résistances des voies modulent le débit pour une différence de pression donnée. Une faible compliance et une forte résistance augmentent le travail par des mécanismes différents.
Le volume résiduel reste après expiration maximale et n’est pas mesuré directement par une simple spirométrie. Les capacités qui l’incluent nécessitent une autre méthode. Une courbe de débit ou un volume expiré ne renseigne donc pas sur tous les volumes pulmonaires à elle seule.
Diffusion alvéolocapillaire
Le transfert augmente avec surface, coefficient de diffusion et différence de pression partielle, et diminue avec épaisseur. Les pressions partielles reflètent les molécules dissoutes et déterminent la diffusion ; elles ne mesurent pas directement toute la quantité liée à l’hémoglobine.
L’oxygène passe de l’alvéole vers le sang veineux capillaire. Le CO2 suit le gradient inverse. Le temps de contact et les propriétés de la barrière déterminent l’approche de l’équilibre. Un épaississement, une perte de surface ou une diminution de temps de transit peuvent modifier le transfert selon les conditions.
Oxygène : pression, saturation et contenu
La majorité de l’oxygène sanguin est liée à l’hémoglobine. Une expression pédagogique est CaO2 ≈ 1,34 × Hb × SaO2 + 0,003 × PaO2, avec Hb en g/dL, saturation en fraction, PaO2 en mmHg et contenu en mL O2/dL. Les coefficients sont des approximations utilisées pour les calculs.
Avec Hb = 15 g/dL, SaO2 = 0,98 et PaO2 = 100 mmHg, le contenu vaut environ 20,0 mL/dL. Une personne avec Hb = 7,5 g/dL peut avoir une PaO2 et une saturation normales mais un contenu presque divisé par deux. Une oxygénation artérielle évaluée par pression ne résume donc pas la capacité de transport.
La courbe de dissociation est sigmoïde en raison de la coopérativité. Une hausse de température, de CO2 ou de concentration en protons favorise souvent la libération d’oxygène dans les tissus, avec déplacement vers la droite. L’hémoglobine fœtale présente une affinité différente. Ces changements modulent la relation saturation-pression sans modifier nécessairement la quantité d’hémoglobine.
CO2 et ventilation
Le CO2 est transporté sous forme dissoute, lié à des protéines et surtout sous forme bicarbonate après réactions facilitées par l’anhydrase carbonique. Les échanges chlorure-bicarbonate entre hématies et plasma participent à cette distribution. L’oxygénation de l’hémoglobine favorise la libération du CO2 au poumon, tandis que la désoxygénation facilite son transport dans les tissus.
À production de CO2 constante, la pression artérielle de CO2 varie inversement avec la ventilation alvéolaire dans un modèle stationnaire. Doubler VA tend à diviser PaCO2 par deux, si les autres hypothèses restent valides. Augmenter seulement la fréquence sans connaître VT et VD ne permet pas cette conclusion.
Rapport ventilation/perfusion
Une unité doit être ventilée et perfusée pour échanger efficacement. Un shunt correspond à du sang perfusant une région sans ventilation efficace ; un espace mort correspond à une ventilation sans perfusion utile. Les rapports intermédiaires varient normalement selon la région pulmonaire et la posture. Une valeur moyenne correcte ne garantit pas une répartition homogène.
| Situation | Ventilation | Perfusion | Conséquence |
|---|---|---|---|
| Unité équilibrée | Présente | Présente | Échange efficace |
| Shunt idéal | Nulle | Présente | Sang non oxygéné par cette unité |
| Espace mort idéal | Présente | Nulle | Ventilation gaspillée pour l’échange |
L’hypoxie alvéolaire provoque une vasoconstriction pulmonaire locale qui peut détourner le débit vers des régions mieux ventilées. Cette réponse diffère de la vasodilatation souvent observée dans des tissus systémiques hypoxiques. Une règle générale « l’hypoxie dilate tous les vaisseaux » serait donc fausse.
Régulation et livraison tissulaire
Les réseaux respiratoires du tronc cérébral reçoivent des informations chimiques et mécaniques. Les chémorécepteurs centraux répondent notamment aux changements de pH liés au CO2 ; les périphériques détectent aussi une baisse importante de PaO2. Le stimulus dépend du contexte et des adaptations.
La délivrance d’oxygène est débit cardiaque × contenu artériel. Avec 5 L/min et 200 mL O2/L, elle vaut 1000 mL O2/min. La consommation suit le principe de Fick : débit × différence artérioveineuse de contenu. Une saturation normale n’exclut donc pas un défaut de livraison lié au débit ou à l’hémoglobine.
- Ventilation alvéolaire
- Diffusion et adéquation V/Q
- Chargement de l’hémoglobine
- Débit circulatoire
- Extraction tissulaire
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : les étapes s’influencent et un défaut peut se situer à plusieurs niveaux simultanément.
Même ventilation minute, échanges différents
Exercice. A respire 12 fois/min avec un volume courant de 0,50 L ; B respire 30 fois/min avec 0,20 L. On suppose un espace mort de 0,15 L par cycle dans les deux cas.
Correction. Les ventilations minute valent chacune 6 L/min. Les ventilations alvéolaires sont pourtant (0,50 − 0,15) × 12 = 4,2 L/min pour A et (0,20 − 0,15) × 30 = 1,5 L/min pour B. Une plus grande part du volume de B renouvelle l'espace mort. À production de CO₂ constante et à l'état stationnaire, la PaCO₂ tend à être plus élevée pour B. La relation suppose ici un espace mort fixe ; le volume mort physiologique peut varier selon les conditions. Une fréquence respiratoire seule ne mesure donc pas la ventilation utile.
Pressions ventilatoires : préciser l'interface
La pression transpulmonaire est la différence entre pression alvéolaire et pression pleurale. Elle contribue à distendre le poumon. La pression qui produit un débit dans les voies aériennes est une autre différence : celle entre l'entrée des voies et les alvéoles. À un instant de débit nul, les deux pressions aux extrémités des voies peuvent être égales alors que la pression transpulmonaire reste positive.
Pendant une inspiration calme, les muscles augmentent le volume thoracique, la pression pleurale devient plus négative, puis l'air entre sous l'effet du gradient transitoire. L'expiration calme repose largement sur le recul élastique. Il ne faut pas transformer le poumon en muscle qui se contracte activement pour aspirer l'air.
Compliance, résistance et surface alvéolaire
La compliance est un rapport variation de volume/variation de pression distendante, défini pour des conditions données. Elle n'est pas une résistance au débit. Deux poumons peuvent opposer des difficultés différentes : l'un demande une forte pression pour se distendre, l'autre une forte différence de pression pour faire circuler l'air. La vitesse de ventilation modifie l'importance relative de ces contraintes.
Le surfactant modifie les forces de surface et participe à la stabilité des unités alvéolaires. La loi de Laplace d'une sphère idéale relie pression, tension et rayon ; les alvéoles réelles ne sont pas des bulles isolées identiques et leur tension n'est pas constante. On utilise donc la formule pour comprendre une dépendance, sans prédire exactement le comportement d'un poumon entier.
Volumes mesurables et volumes non directement spirométriques
Une spirométrie simple mesure des volumes mobilisés, mais ne mesure pas directement le volume résiduel qui reste après expiration maximale. Les capacités qui l'incluent nécessitent une autre approche. Une valeur normale d'un volume mobilisé ne démontre pas que tous les compartiments sont normaux.
Exercice. Un modèle a une compliance de 0,2 L/cmH2O. Quel changement de pression distendante correspond à 0,5 L, dans la zone où cette compliance est constante ? Correction. ΔP = ΔV/C = 2,5 cmH2O. Ce calcul ne donne pas la pression nécessaire au débit dans les voies ni le travail total, car résistance et dynamique ne sont pas incluses. Les limites sont partie intégrante du résultat.
Exercices progressifs
Exercice 1. Calculer VA pour VT 600 mL, VD 150 mL et f 10/min.
Exercice 2. Une PaO2 normale prouve-t-elle un contenu normal ?
Exercice 3. Avec débit 5 L/min et différence artérioveineuse 50 mL/L, calculer la consommation.
Exercice 4. Définir un espace mort idéal.
Exercice 5. À production de CO2 stable, quelle conséquence attendue d’une baisse de VA de moitié ?
Corrections argumentées
Correction 1. (600 − 150) × 10 = 4500 mL/min, soit 4,5 L/min.
Correction 2. Non. L’hémoglobine et sa saturation déterminent la majeure partie du contenu. Une anémie peut réduire fortement le contenu avec PaO2 normale.
Correction 3. 5 × 50 = 250 mL O2/min. Les contenus doivent être exprimés dans une unité compatible avec le débit.
Correction 4. Une région ventilée mais non perfusée, qui ne réalise donc pas d’échange utile avec le sang.
Correction 5. PaCO2 tend à doubler dans le modèle stationnaire, si la production et les autres conditions restent constantes.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 3 · Filtration, transports rénaux et concentration urinaire
Prérequis et objectifs
Prérequis : néphron, transports et concentrations.
À la fin de ce cours : écrire les bilans tubulaires ; calculer une clairance ; relier segments, gradients et hormones.
Filtrer puis modifier
Le rein reçoit un débit sanguin important et produit un ultrafiltrat au glomérule. Les cellules sanguines et la plupart des grandes protéines restent dans la circulation normale. La filtration dépend des forces hydrostatiques et oncotiques et d’un coefficient de filtration reflétant surface et perméabilité. Une pression dans l’espace urinaire s’oppose à la filtration.
Le débit de filtration glomérulaire, DFG, est un volume par unité de temps. Il ne correspond pas au débit urinaire : l’immense majorité de l’eau filtrée est réabsorbée. Avec un DFG illustratif de 120 mL/min, le volume filtré quotidien est 172,8 L, alors que l’urine finale peut être de l’ordre de quelques litres ou moins selon le bilan hydrique.
L’autorégulation associe notamment réponse myogène et rétrocontrôle tubuloglomérulaire. La macula densa renseigne sur la livraison tubulaire de NaCl et influence les artérioles et la rénine. Ces mécanismes maintiennent relativement le débit et la filtration dans une plage, sans les rendre indépendants de toute pression ou activation sympathique.
Bilan d’une substance
Quantité excrétée par temps = quantité filtrée − quantité réabsorbée + quantité sécrétée. La charge filtrée d’une substance librement filtrée vaut DFG × concentration plasmatique. La sécrétion transporte une substance du sang vers la lumière ; la réabsorption réalise le trajet inverse. Excrétion et sécrétion ne sont donc pas synonymes.
La clairance Cx = Ux × V/Px représente le volume de plasma théoriquement épuré de x par unité de temps. Ux est la concentration urinaire, V le débit urinaire et Px la concentration plasmatique. Il ne s’agit pas nécessairement d’un volume de plasma réellement débarrassé de toute molécule à un endroit précis.
Un marqueur librement filtré, non réabsorbé, non sécrété et non métabolisé par le rein a une clairance égale au DFG. La créatinine est pratique mais une sécrétion tubulaire contribue à sa clairance, qui peut surestimer le DFG. Les estimations cliniques utilisent d’autres relations et hypothèses ; la formule de clairance reste le principe pédagogique.
Segments proximaux et glucose
Le tubule proximal réabsorbe une grande fraction de sodium et d’eau ainsi que la majorité de plusieurs solutés utiles. Le gradient sodique basolatéral entraîne des cotransports apicaux. Le glucose est réabsorbé par des transporteurs dont la capacité est limitée. Lorsque la charge filtrée dépasse les capacités globales, une excrétion apparaît.
Le transport maximal Tm est une quantité par temps ; le seuil plasmatique est une concentration. Ils ne sont pas identiques. L’hétérogénéité des néphrons et la saturation progressive produisent une zone de transition, ou splay, au lieu d’un angle parfaitement net sur la courbe réelle.
Avec DFG = 0,12 L/min et glycémie = 5 mmol/L, la charge filtrée vaut 0,60 mmol/min. Si la réabsorption est complète, l’excrétion est presque nulle malgré une filtration importante. Une urine dépourvue de glucose ne signifie donc pas que le glucose n’a pas traversé le glomérule.
Anse et gradient médullaire
La branche descendante fine est très perméable à l’eau dans les régions concernées, tandis que la branche ascendante épaisse réabsorbe du NaCl et est peu perméable à l’eau. Cette dissociation contribue au mécanisme multiplicateur à contre-courant. Les vasa recta limitent le lavage du gradient par leurs échanges à contre-courant ; ils ne créent pas seuls le gradient initial.
L’urée participe à l’osmolarité médullaire et à son recyclage, particulièrement dans certaines conditions hormonales. Le gradient corticopapillaire n’est donc pas produit exclusivement par le sodium. Une bonne concentration urinaire exige gradient, flux et perméabilité du collecteur adaptés.
Distal et collecteur
Le distal et le collecteur ajustent plus finement sodium, potassium, eau et acidité. L’aldostérone favorise notamment la réabsorption sodée et la sécrétion potassique dans des cellules appropriées, avec effets dépendant de la livraison tubulaire et du débit. Une hormone seule ne détermine donc pas toute l’excrétion de potassium.
La vasopressine agit notamment via les récepteurs V2 et favorise l’insertion d’aquaporines AQP2 dans la membrane apicale des cellules principales. L’eau rejoint ensuite l’interstitium et le sang via d’autres voies. Sans gradient médullaire, augmenter la perméabilité ne suffit pas à concentrer fortement l’urine.
Les cellules intercalaires participent aux transports acido-basiques. Le rein réabsorbe le bicarbonate filtré et produit du nouveau bicarbonate lorsqu’il excrète des acides sous formes appropriées, notamment ammonium et acidité titrable. La quantité de protons libres urinaires est trop faible pour représenter seule toute l’excrétion acide.
| Segment | Fonction dominante pédagogique |
|---|---|
| Proximal | Réabsorption massive couplée |
| Descendant fin | Échanges d’eau importants |
| Ascendant épais | Réabsorption de sel sans eau |
| Distal | Ajustements électrolytiques |
| Collecteur | Réglage hormonal final eau, ions et acidité |
Exemple de clairance
Si Ux = 60 mmol/L, V = 1 mL/min et Px = 0,5 mmol/L, Cx = 120 mL/min. Les concentrations se divisent et le débit conserve son unité. Pour une substance librement filtrée et sans autre transformation rénale, une réabsorption nette supérieure à la sécrétion conduit à une clairance inférieure au DFG ; une sécrétion nette supérieure à la réabsorption peut conduire à une clairance supérieure. Une clairance nulle peut correspondre à une réabsorption complète, pas à une absence de passage rénal.
- Charge filtrée
- Réabsorption soustraite
- Sécrétion ajoutée
- Excrétion urinaire
Repères complémentaires, sans ordre ni lien de cause.
Limite du schéma : les transports se produisent dans des segments différents et parfois simultanément ; le bilan final seul ne localise pas un défaut.
Construire un bilan rénal avec les unités
Données. DFG = 100 mL/min ; concentration plasmatique d'un soluté librement filtré = 2 mmol/L ; débit urinaire = 1 mL/min ; concentration urinaire = 50 mmol/L. Aucune production ni destruction rénale du soluté n'est supposée.
Correction. Charge filtrée : 0,100 × 2 = 0,200 mmol/min. Excrétion : 0,001 × 50 = 0,050 mmol/min. Réabsorption nette : 0,150 mmol/min, soit 75 % de la charge filtrée. Clairance : 0,050/2 = 0,025 L/min = 25 mL/min. Une concentration urinaire supérieure au plasma ne prouve donc pas une sécrétion nette : la réabsorption d'eau peut concentrer le soluté restant. Le bilan compare des quantités par temps, pas seulement deux concentrations.
Lecture visuelle : Néphron : trajet tubulaire et échanges avec le sang
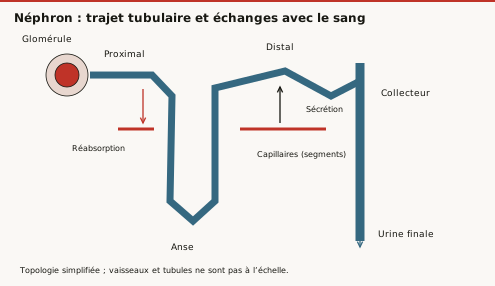
Question de lecture. Un soluté filtré puis entièrement réabsorbé apparaît-il nécessairement dans l’urine finale ?
Correction. Non. L’excrétion résulte de filtration − réabsorption + sécrétion. La présence en amont ne suffit pas à prédire la quantité excrétée.
Filtration : un bilan de pressions, pas une aspiration du tubule
La pression hydrostatique capillaire glomérulaire favorise la sortie de liquide ; la pression dans l'espace urinaire et la pression oncotique plasmatique s'y opposent principalement. La pression oncotique de l'espace urinaire est normalement faible dans le modèle usuel. Le débit de filtration dépend de la pression nette et du coefficient de filtration, qui intègre surface et perméabilité. Une pression identique ne garantit donc pas un débit identique si la barrière change.
Le glomérule se situe entre une artériole afférente et une efférente. Modifier l'une ne produit pas simplement le même effet que modifier l'autre. Une constriction efférente modérée peut soutenir la pression glomérulaire, mais des changements plus importants réduisent le débit plasmatique et modifient les forces oncotiques ; la relation n'est pas monotone sans limites.
Retour d'information tubulaire et commande hormonale
La macula densa renseigne sur l'apport de NaCl dans son segment tubulaire et participe au rétrocontrôle tubuloglomérulaire. Elle n'est pas un capteur direct de toute l'osmolarité plasmatique. Les cellules juxtaglomérulaires sécrétrices de rénine appartiennent à un autre compartiment. Capteur tubulaire, réponse vasculaire et sécrétion endocrine doivent être placés séparément sur le schéma.
L'ADH augmente notamment la perméabilité à l'eau du collecteur par insertion d'aquaporines apicales dans les cellules principales. Elle exploite un gradient médullaire entretenu par d'autres mécanismes. L'aldostérone module notamment les transports de sodium et de potassium dans des segments distaux sensibles. Retenir du sodium et rendre une membrane perméable à l'eau ne sont donc pas la même commande.
Charge filtrée et charge excrétée
Exercice. Une substance librement filtrée a une concentration plasmatique de 2 mg/mL. Le DFG vaut 100 mL/min ; 30 mg/min sont excrétés. Calculer la charge filtrée et le bilan tubulaire net.
Correction. La charge filtrée vaut 200 mg/min. L'excrétion étant inférieure de 170 mg/min, le bilan tubulaire net correspond à une réabsorption de 170 mg/min. Cela ne prouve pas l'absence de sécrétion simultanée : une réabsorption brute plus élevée peut coexister avec une sécrétion. Un bilan net ne révèle pas tous les flux opposés.
Exercices progressifs
Exercice 1. DFG 100 mL/min et Px 2 mmol/L : calculer la charge filtrée.
Exercice 2. Ux 20 mmol/L, V 2 mL/min et Px 0,4 mmol/L : calculer Cx.
Exercice 3. Une clairance inférieure au DFG suggère-t-elle une réabsorption ou une sécrétion nette ?
Exercice 4. Pourquoi une ADH élevée ne suffit-elle pas si le gradient médullaire est perdu ?
Exercice 5. L’excrétion acide se réduit-elle aux protons libres urinaires ?
Corrections argumentées
Correction 1. 0,100 L/min × 2 mmol/L = 0,200 mmol/min pour une substance librement filtrée.
Correction 2. 20 × 2/0,4 = 100 mL/min. Les concentrations sont dans la même unité.
Correction 3. Une réabsorption nette, sous les hypothèses de filtration libre et absence d’autres transformations.
Correction 4. La perméabilité permet un mouvement seulement s’il existe une force osmotique. Sans gradient, l’eau n’est pas attirée efficacement hors du collecteur.
Correction 5. Non. Les tampons urinaires et l’ammonium transportent la majeure partie des équivalents acides excrétés.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 4 · Équilibre acido-basique et régulations intégrées
Prérequis et objectifs
Prérequis : logarithmes, ventilation et rein.
À la fin de ce cours : interpréter un pH ; distinguer trouble primaire et compensation ; relier effort, volume et perfusion.
pH et tampons
Le pH est le logarithme décimal négatif de l’activité des protons, souvent approchée par leur concentration. Une différence d’une unité représente un facteur dix. Un tampon limite une variation lors d’un apport acide ou basique mais ne supprime pas la nécessité d’éliminer les charges à long terme. Les protéines, phosphates et bicarbonates contribuent dans des compartiments différents.
Le système bicarbonate est lié à un composant respiratoire, le CO2, et à un composant métabolique régulé notamment par le rein. Une forme pédagogique de Henderson-Hasselbalch est pH = 6,1 + log10([HCO3⁻]/(0,03 × PaCO2)), avec bicarbonate en mmol/L et PaCO2 en mmHg. Les constantes correspondent à des conditions usuelles et doivent être utilisées avec les unités indiquées.
Avec HCO3⁻ = 24 mmol/L et PaCO2 = 40 mmHg, le dénominateur vaut 1,2 et le rapport 20 ; pH ≈ 7,40. Le rapport importe : doubler simultanément les deux termes conserve théoriquement le pH, tout en correspondant à un état physiologique différent. Un pH normal n’exclut donc pas un trouble compensé ou mixte.
Quatre troubles primaires
Une acidose est un processus tendant à diminuer le pH ; une acidémie est un pH sanguin inférieur à la plage de référence. Une alcalose et une alcalémie se distinguent de la même manière. Deux processus opposés peuvent coexister et laisser un pH proche de la normale.
Une acidose métabolique comporte une baisse primaire du bicarbonate ; une alcalose métabolique une hausse primaire. Une acidose respiratoire résulte d’une hausse primaire de PaCO2 ; une alcalose respiratoire d’une baisse primaire. Le qualificatif respiratoire porte sur le mécanisme du CO2, pas seulement sur la présence de symptômes pulmonaires.
| Trouble primaire | Modification initiale | Compensation attendue dans son sens |
|---|---|---|
| Acidose métabolique | HCO3⁻ diminue | PaCO2 diminue |
| Alcalose métabolique | HCO3⁻ augmente | PaCO2 tend à augmenter |
| Acidose respiratoire | PaCO2 augmente | HCO3⁻ augmente avec adaptation rénale |
| Alcalose respiratoire | PaCO2 diminue | HCO3⁻ diminue avec adaptation rénale |
Une compensation n’est pas un second trouble primaire par définition. Elle tend à limiter l’écart sans surcorriger durablement le pH dans un trouble simple. Une réponse hors de la plage attendue suggère un trouble mixte ou des hypothèses inadéquates.
Poumon et rein : échelles temporelles
La ventilation peut modifier le CO2 rapidement. Le rein ajuste réabsorption de bicarbonate, ammoniogenèse et excrétion acide sur des délais plus longs. Les tampons interviennent dès les premières variations, avant que l’élimination ne rétablisse un bilan. Ces systèmes fonctionnent ensemble plutôt qu’en se remplaçant successivement.
Réabsorber le bicarbonate filtré évite de perdre une base déjà présente ; excréter un équivalent acide avec production de nouveau bicarbonate ajoute une base au compartiment. Les deux processus sont distincts. Une sécrétion tubulaire de protons peut servir à récupérer un bicarbonate filtré sans constituer une excrétion nette d’acide dans l’urine finale.
Calculs de première interprétation
Une règle pédagogique fréquemment utilisée pour l’acidose métabolique est PaCO2 attendue ≈ 1,5 × HCO3⁻ + 8, avec une plage d’environ ±2 mmHg. Elle ne s’applique pas à tous les troubles et ne remplace pas le contexte. Avec bicarbonate 12, on attend environ 26 mmHg, plage 24-28. Une PaCO2 de 40 est trop élevée pour cette compensation et suggère une composante respiratoire acidifiante associée.
Le trou anionique usuel est Na⁺ − (Cl⁻ + HCO3⁻), sans potassium dans cette convention. Il compare des ions mesurés, pas toutes les charges. L’albumine influence sa valeur ; une albumine basse peut masquer une élévation. Il faut donc annoncer la convention et les références du laboratoire, plutôt qu’un seuil universel sans contexte.
Effort et livraison d’oxygène
À l’effort, débit cardiaque et ventilation augmentent, les muscles extraient davantage d’oxygène et redistribuent leurs métabolismes. La consommation d’oxygène suit le principe de Fick : débit × différence de contenu artérioveineux. Une augmentation d’extraction peut compléter une hausse du débit ; aucune variable isolée ne décrit toute la réponse.
L’augmentation de production de CO2 doit être accompagnée d’une ventilation alvéolaire adaptée pour maintenir PaCO2. Une hausse de ventilation n’implique pas automatiquement une hypocapnie si la production augmente simultanément. Le lactate reflète un bilan de production et d’utilisation ; sa présence n’est pas synonyme d’absence totale d’oxygène dans chaque cellule.
Perte de volume et intégration
Une perte de volume circulant efficace active baroréflexe, système rénine-angiotensine-aldostérone et vasopressine selon son importance. Une rétention d’eau peut se produire malgré une tonicité qui ne l’aurait pas demandée seule. Les signaux volémiques et osmotiques ne sont donc pas toujours concordants.
Une perfusion tissulaire insuffisante peut modifier métabolisme, production d’acides et fonction rénale. Le rein lui-même dépend d’un apport sanguin pour filtrer et excréter. On ne peut pas supposer une compensation rénale intacte dans toute situation d’hypoperfusion.
- Lire le pH
- Examiner PaCO2 et bicarbonate
- Identifier le processus dominant
- Comparer à la compensation attendue
- Rechercher un mécanisme associé
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il s’agit d’un exercice physiologique ; une interprétation clinique exige contexte, chronologie, autres électrolytes et qualité du prélèvement.
Le raisonnement final doit distinguer ce qui est calculé de ce qui est inféré. Une formule vérifie la cohérence d’une hypothèse ; elle ne découvre pas seule la cause d’un trouble. Une concentration peut être modifiée par production, élimination, dilution ou redistribution, ce qui impose de revenir aux bilans.
Quand la compensation ne suffit pas à expliquer les données
Exercice de modèle. HCO₃⁻ = 12 mmol/L et PaCO₂ = 40 mmHg. Pour une acidose métabolique, on utilise l'approximation de Winter : PaCO₂ attendue = 1,5 × HCO₃⁻ + 8, avec intervalle indicatif ±2 mmHg.
Correction. L'attendu vaut 26 mmHg, environ 24-28. La valeur mesurée, 40, est trop élevée pour la compensation prévue : elle est compatible avec une composante d'acidose respiratoire associée. Henderson-Hasselbalch donne ici pH = 6,1 + log(12/1,2) = 7,10. Le CO₂ est pourtant à une valeur souvent décrite comme normale isolément : « normal » pour une variable ne signifie pas adapté au trouble présent. Ce cas sert au raisonnement physiologique ; timing, mesures et contexte sont nécessaires à une interprétation clinique.
Récupérer un bicarbonate filtré : suivre le carbone et le proton
Dans le modèle proximal, un proton sécrété dans la lumière réagit avec le bicarbonate filtré. Les interconversions avec CO2 et eau, facilitées par l'anhydrase carbonique, permettent le transfert du carbone puis la reconstitution de bicarbonate vers le sang. Le proton peut être recyclé dans ce mécanisme. Sa sécrétion luminale ne correspond donc pas automatiquement à une quantité identique de protons quittant finalement l'organisme.
L'excrétion nette d'acide suppose que des équivalents acides restent associés à des tampons urinaires ou à l'ammonium, en tenant compte du bicarbonate perdu. Une urine très acide mais de faible volume peut éliminer moins d'acide total qu'une urine plus abondante et riche en tampons. Le pH exprime une activité de protons libres ; il n'est pas le nombre total d'équivalents acides excrétés.
Ammonium, acidité titrable et bilan
L'ammoniogenèse rénale permet d'adapter la production et l'excrétion d'ammonium. Les phosphates contribuent à l'acidité titrable. Dans une convention de bilan, excrétion acide nette = ammonium + acidité titrable − bicarbonate urinaire, toutes les quantités étant exprimées pour la même durée et dans des unités compatibles.
Exercice. Un modèle excrète 35 mmol/j d'ammonium, 20 mmol/j d'acidité titrable et 5 mmol/j de bicarbonate. Calculer l'excrétion nette, puis expliquer pourquoi le pH urinaire seul ne permet pas de retrouver le résultat.
Correction. 35 + 20 − 5 = 50 mmol/j d'équivalents acides. Le pH ne renseigne ni sur le volume ni sur les quantités liées aux tampons. Deux urines de même pH peuvent avoir des excrétions nettes très différentes. Le modèle suppose les conventions analytiques indiquées et ne prétend pas remplacer une interprétation clinique complète.
Exercices progressifs
Exercice 1. Calculer le rapport bicarbonate/CO2 dissous pour 24 mmol/L et 40 mmHg.
Exercice 2. Un pH normal exclut-il deux troubles opposés ?
Exercice 3. Avec HCO3⁻ 12, quelle PaCO2 compensatrice attendue selon la règle donnée ?
Exercice 4. Na 140, Cl 104, HCO3⁻ 12 : calculer le trou anionique sans K.
Exercice 5. Une ventilation doublée à l’effort implique-t-elle toujours une PaCO2 divisée par deux ?
Corrections argumentées
Correction 1. 24/(0,03 × 40) = 20, donnant environ 7,40 avec la formule proposée.
Correction 2. Non. Un trouble mixte ou une compensation peut rapprocher le pH de la normale. Les deux composantes doivent être examinées.
Correction 3. 1,5 × 12 + 8 = 26 mmHg, environ 24-28. La règle vaut ici pour une acidose métabolique et reste approximative.
Correction 4. 140 − (104 + 12) = 24 mmol/L. Son interprétation nécessite référence locale, albumine et contexte.
Correction 5. Non. Si la production de CO2 double aussi, la PaCO2 peut rester proche de sa valeur initiale. La relation inverse suppose une production constante.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 5 · Physiologie digestive, absorption et état nourri
Prérequis et objectifs
Prérequis : tube digestif, enzymes et transports.
À la fin de ce cours : relier sécrétion, motricité et absorption ; suivre les voies porte et lymphatique ; expliquer état nourri et jeûne.
Une chaîne coordonnée
La digestion comprend ingestion, propulsion, transformation mécanique et chimique, absorption puis élimination. Une bonne activité enzymatique ne suffit pas si les substrats n’arrivent pas, si le pH est inadapté ou si les produits ne traversent pas l’épithélium. Les sécrétions, la motricité et la vascularisation doivent être coordonnées.
Le système nerveux entérique comprend notamment plexus myentérique et sous-muqueux. Il organise des réflexes locaux tout en recevant des influences autonomes. Le parasympathique favorise souvent l’activité digestive et le sympathique la module dans un sens opposé, mais les effets exacts dépendent des cellules et récepteurs. Une formule globale ne remplace pas le mécanisme local.
Motricité et sécrétions gastriques
Le péristaltisme associe des coordinations propulsives ; la segmentation favorise le mélange. Les cellules interstitielles de Cajal participent à l’organisation d’activités électriques lentes. Une onde lente n’est pas nécessairement une contraction d’amplitude fixe : l’excitabilité et les signaux modulent la réponse musculaire.
L’estomac stocke, mélange et délivre progressivement son contenu au duodénum. Les cellules pariétales sécrètent des protons grâce à une H⁺/K⁺-ATPase. Acétylcholine, gastrine et histamine coopèrent pour stimuler cette fonction ; des freins, dont la somatostatine, limitent la réponse. Le mucus et les bicarbonates de surface contribuent à la protection.
Le pepsinogène devient actif dans un environnement acide. Le facteur intrinsèque, également produit par les cellules pariétales, est nécessaire à l’absorption efficace de la vitamine B12 dans l’iléon terminal. Le lieu de production d’un facteur peut donc être éloigné du lieu où son absence se manifeste.
Pancréas et bile
Le pancréas exocrine sécrète enzymes et bicarbonates. Les enzymes protéolytiques sont largement produites sous forme de précurseurs, réduisant l’autodigestion. L’entéropeptidase intestinale active le trypsinogène ; la trypsine active d’autres précurseurs. Des mécanismes supplémentaires limitent une activation inappropriée.
La sécrétine répond notamment à l’acidité duodénale et favorise une sécrétion bicarbonatée. La cholécystokinine répond à des produits nutritifs, stimule notamment la sécrétion enzymatique et la contraction vésiculaire, et contribue à régler la vidange gastrique. Les hormones ne sont pas des interrupteurs exclusifs : les réponses nerveuses et locales coopèrent.
Les sels biliaires facilitent l’émulsification et la formation de micelles transportant des produits lipidiques vers la surface absorbante. Ils ne sont pas des enzymes hydrolysant eux-mêmes les triglycérides. Leur réabsorption, surtout iléale, permet une circulation entérohépatique. Le foie les produit et les recycle ; la vésicule les stocke et concentre la bile.
Absorption des glucides et protéines
Les polysaccharides sont hydrolysés par des enzymes luminales puis de bordure en brosse. Glucose et galactose utilisent un cotransport apical avec le sodium ; le fructose utilise un transport facilité distinct. La sortie basolatérale rejoint le sang portal. Le gradient sodique est entretenu par la pompe basolatérale, reliant indirectement absorption et ATP.
Les protéines sont dégradées en acides aminés et petits peptides. Plusieurs transporteurs apicaux existent ; les di- et tripeptides peuvent être absorbés puis hydrolysés dans l’entérocyte. Dire que toute protéine doit être entièrement réduite à des acides aminés libres avant toute traversée est donc trop strict.
Absorption des lipides et de l’eau
Les acides gras et monoglycérides issus de la digestion entrent dans l’entérocyte, où une partie est réestérifiée puis incorporée aux chylomicrons. Ceux-ci rejoignent les vaisseaux lymphatiques intestinaux avant la circulation sanguine générale. Les acides gras à chaîne courte ou moyenne suivent plus volontiers des voies portales. Tous les nutriments ne passent donc pas initialement par la même route hépatique.
L’eau suit des gradients osmotiques liés aux transports de solutés. Le tube sécrète et réabsorbe des volumes importants ; l’excrétion fécale normale est le solde de ces flux. Une augmentation du contenu osmotique luminal ou une modification de sécrétion peut attirer davantage d’eau dans la lumière. L’absorption sodée et glucidique couplée conserve un intérêt physiologique majeur dans ce bilan.
| Nutriment | Produit absorbé ou transport | Première grande voie |
|---|---|---|
| Glucides digestibles | Monosaccharides | Sang portal |
| Protéines | Acides aminés et petits peptides transformés | Sang portal |
| Lipides à longue chaîne | Réassemblage en chylomicrons | Lymphe puis sang |
| Eau | Flux osmotique | Capillaires selon gradients |
État nourri et jeûne
Après un repas, l’insuline favorise stockage et utilisation de substrats dans des tissus appropriés. Le foie capte une partie des nutriments portaux, synthétise du glycogène et adapte les voies lipidiques. Le muscle et le tissu adipeux augmentent notamment leur captation de glucose via GLUT4 en réponse à l’insuline. Toutes les cellules ne dépendent pas de GLUT4 pour faire entrer le glucose.
Pendant le jeûne, la baisse du rapport insuline/glucagon favorise mobilisation hépatique du glycogène puis production de glucose à partir de précurseurs. Le tissu adipeux libère des acides gras ; le foie peut produire des corps cétoniques. Les contributions changent avec la durée et l’état physiologique. Le cerveau n’abandonne pas instantanément le glucose dès le premier repas manqué.
- Digestion luminale
- Transport épithélial
- Voie porte ou lymphatique
- Distribution
- Utilisation et stockage
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il ne représente pas les sécrétions endogènes ni les cycles de recyclage ; le devenir varie selon le nutriment.
Suivre un lipide en changeant de véhicule
Restitution. Distinguer trois compartiments : lumière intestinale, entérocyte et circulation lymphatique. Les micelles mixtes participent au transport luminal des produits de digestion lipidique vers la surface absorbante. Elles ne deviennent pas intactes des chylomicrons.
Dans l'entérocyte, les lipides absorbés sont transformés et une partie est assemblée avec des apolipoprotéines en chylomicrons. Ceux-ci sont sécrétés au pôle basolatéral et gagnent surtout la lymphe intestinale avant le sang. Les sels biliaires restent majoritairement dans la lumière jusqu'à leur récupération, notamment iléale.
Question. Une molécule lipidique traverse-t-elle nécessairement tout ce parcours ? Correction. Non : les acides gras plus courts peuvent emprunter davantage la voie portale. Le trajet dépend de la nature du lipide.
Sécrétion gastrique : produire un acide sans acidifier toute la cellule
La cellule pariétale sécrète des protons par une pompe apicale échangeant H+ et K+. Des mouvements de chlorure et d'autres ions participent à l'électroneutralité et à la sécrétion d'HCl dans la lumière. La production et le transfert des ions impliquent des faces membranaires différentes ; la cellule ne stocke pas simplement une poche d'acide concentré qu'elle déverse sans transport.
Les cellules principales sécrètent le pepsinogène, précurseur activé dans le milieu luminal approprié. La protection de surface implique mucus, bicarbonate, jonctions et renouvellement. Sécrétion agressive et protection ne sont pas produites par une seule cellule indistincte. La gastrine, l'histamine et les commandes nerveuses interagissent ; un même résultat final peut donc être modifié par plusieurs voies.
Sécrétions pancréatiques et activation au bon endroit
Le pancréas exocrine fournit des enzymes et un liquide riche en bicarbonate par des compartiments cellulaires complémentaires. Le bicarbonate contribue à neutraliser le contenu acide arrivant du duodénum ; cette neutralisation crée des conditions favorables à plusieurs enzymes intestinales. Le signal sécrétine est particulièrement associé à cette réponse au contenu acide, tandis que la CCK participe notamment à la sécrétion enzymatique et à la contraction vésiculaire.
Plusieurs protéases sont sécrétées sous forme de précurseurs. L'entéropeptidase de la bordure en brosse initie l'activation du trypsinogène ; la trypsine active ensuite d'autres précurseurs. Il faut distinguer synthèse dans le pancréas, transport dans le conduit et activation dans la lumière intestinale. Une enzyme digestive active au mauvais endroit n'est pas équivalente à une sécrétion physiologique efficace.
Suivre un glucose et un peptide
Les monosaccharides traversent l'épithélium par des systèmes différents ; le glucose et le galactose utilisent notamment un cotransport apical dépendant du sodium. Les di- et tripeptides peuvent entrer via un transport couplé aux protons avant hydrolyse intracellulaire. La disparition d'une molécule de la lumière n'implique donc pas son apparition intacte dans le sang.
Exercice. Une inhibition basolatérale de la pompe Na+/K+ peut-elle réduire un cotransport apical de glucose sans bloquer directement sa protéine ? Correction. Oui. Le gradient de sodium qui fournit l'énergie au cotransport est moins bien entretenu. La dépendance est indirecte mais causale ; on distingue inhibition du transporteur et perte de sa force motrice.
Exercices progressifs
Exercice 1. Les sels biliaires sont-ils des enzymes ?
Exercice 2. Où est produit le facteur intrinsèque et où intervient-il pour l’absorption ?
Exercice 3. Pourquoi un défaut de pompe sodique peut-il réduire l’absorption de glucose ?
Exercice 4. Les chylomicrons gagnent-ils directement la veine porte ?
Exercice 5. Un jeûne court supprime-t-il immédiatement toute utilisation cérébrale du glucose ?
Corrections argumentées
Correction 1. Non. Ils facilitent la dispersion et le transport micellaire des lipides ; les hydrolases réalisent les coupures chimiques.
Correction 2. Il est produit par les cellules pariétales gastriques et permet l’absorption efficace de B12 dans l’iléon terminal.
Correction 3. La pompe entretient le gradient de sodium qui fournit l’énergie au cotransport apical. L’effet sur le glucose est indirect mais essentiel.
Correction 4. Non. Ils empruntent d’abord principalement la lymphe intestinale puis rejoignent la circulation sanguine.
Correction 5. Non. Les adaptations sont progressives ; le glucose reste nécessaire et les corps cétoniques prennent une place variable lors d’un jeûne prolongé.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 6 · Calcium et phosphate : compartiments, os, rein et régulations hormonales
Prérequis et objectifs
Prérequis : transport membranaire, néphron, tissu osseux et principes endocriniens.
Objectifs : distinguer stock et concentration ; expliquer PTH, calcitriol et FGF23 ; raisonner sur les bilans de calcium et de phosphate.
Des éléments abondants dont la fraction circulante est petite
Le calcium et le phosphate participent à la minéralisation osseuse, mais aussi à de nombreuses fonctions cellulaires. Le calcium intervient dans l’excitabilité, la contraction, la sécrétion et la signalisation. Le phosphate appartient aux acides nucléiques, aux phospholipides et aux molécules phosphorylées du métabolisme. Une grande quantité corporelle ne signifie pas une concentration libre élevée dans tous les compartiments.
La majeure partie du calcium corporel se trouve dans le squelette. Le calcium extracellulaire ne représente qu’une faible fraction de ce stock, mais sa concentration ionisée doit être étroitement contrôlée. Le calcium cytosolique libre est maintenu à un niveau bien inférieur à celui du milieu extracellulaire ; les membranes et les organites entretiennent ce gradient. Une élévation transitoire intracellulaire peut donc servir de signal sans reproduire une variation identique du calcium plasmatique.
Le phosphate est également majoritairement associé au squelette, avec une part importante dans les cellules. La phosphatémie ne mesure pas le stock total. Les passages entre compartiments, l’absorption, l’excrétion et la minéralisation peuvent modifier différemment stock et concentration. Cette distinction évite d’assimiler une valeur sanguine isolée à un bilan corporel complet.
Calcium total, calcium ionisé et pH
Le calcium plasmatique comprend une fraction ionisée, une fraction liée aux protéines, surtout à l’albumine, et une fraction complexée à de petits anions. Le calcium ionisé est la fraction directement détectée par le récepteur sensible au calcium et disponible pour de nombreuses fonctions. Une variation d’albumine modifie le calcium total sans imposer une variation identique du calcium ionisé.
Le pH modifie la liaison aux protéines. Une alcalinisation favorise la liaison du calcium à l’albumine et peut diminuer la fraction ionisée à calcium total inchangé. Une acidification produit l’effet inverse. Le raisonnement doit donc préciser si la mesure porte sur le total ou l’ionisé et dans quelles conditions l’échantillon a été traité.
Des formules de correction du calcium total selon l’albumine existent, mais elles ne remplacent pas universellement une mesure du calcium ionisé et leur précision dépend du contexte. Le présent cours utilise les compartiments pour comprendre les mécanismes, sans proposer de calcul diagnostique individuel ni de valeur seuil thérapeutique.
Intestin, rein et os : trois fonctions complémentaires
L’intestin fait entrer le calcium et le phosphate provenant de l’alimentation. Leur absorption combine des mécanismes transcellulaires régulés et des voies paracellulaires dépendant des conditions luminales. Le calcitriol augmente notamment la capacité d’absorption intestinale. La quantité ingérée n’est donc pas égale à la quantité absorbée ; cette dernière n’est pas nécessairement égale à la quantité retenue.
Le rein filtre la fraction ultrafiltrable du calcium, puis en réabsorbe la majeure partie. Une part importante de la réabsorption se fait dans le tubule proximal et l’anse ascendante large ; les segments distaux assurent un réglage plus fin par des transports transcellulaires. Le calcium lié aux grandes protéines n’est pas librement filtré comme le calcium ionisé et les petits complexes.
Le phosphate filtré est principalement réabsorbé dans le tubule proximal par des cotransports sodium-phosphate. La quantité de transporteurs présents à la membrane peut changer sous l’effet hormonal. Diminuer cette réabsorption augmente la phosphaturie, toutes choses égales par ailleurs. Un effet rénal doit cependant être distingué du résultat sanguin final, qui dépend aussi des autres flux.
L’os est un réservoir dynamique et un tissu vivant. Il assure à la fois une fonction mécanique et une participation aux équilibres minéraux. Une mobilisation osseuse peut soutenir temporairement une concentration extracellulaire tout en modifiant le stock. Maintenir la calcémie ne garantit donc pas que le bilan osseux soit nul.
Le capteur et la réponse parathyroïdienne
Les cellules principales parathyroïdiennes expriment un récepteur sensible au calcium extracellulaire, le CaSR. Lorsque le calcium ionisé diminue, le frein exercé sur la sécrétion de PTH se réduit et la sécrétion augmente. Lorsque le calcium ionisé augmente, le signal du CaSR limite la sécrétion. Ce contrôle direct ne nécessite pas un relais obligatoire par l’hypophyse.
La PTH favorise la conservation rénale du calcium dans les segments régulés, diminue la réabsorption proximale du phosphate et stimule la production rénale de calcitriol. Son action globale tend ainsi à soutenir le calcium extracellulaire tout en favorisant l’excrétion de phosphate. Les effets observés dépendent néanmoins du fonctionnement rénal, des apports et du contexte hormonal.
Dans l’os, la PTH agit surtout sur des cellules de la lignée ostéoblastique et sur les ostéocytes, qui modifient ensuite les signaux régulant les ostéoclastes. La présenter comme une hormone se liant directement aux ostéoclastes pour les activer résume mal le mécanisme principal. Le système RANKL-RANK favorise l’ostéoclastogenèse ; l’ostéoprotégérine peut capter RANKL et limiter ce signal.
Les effets osseux d’une exposition continue et d’une exposition intermittente à la PTH ne sont pas identiques. La durée, l’amplitude et le contexte déterminent l’équilibre entre formation et résorption. Cette propriété illustre pourquoi « une hormone détruit toujours l’os » est une formulation trop générale, sans que le cours fournisse une indication de traitement.
Vitamine D et calcitriol
La vitamine D provient de sources cutanées et alimentaires. Elle subit une première hydroxylation hépatique donnant la 25-hydroxyvitamine D, puis une hydroxylation notamment rénale donnant la 1,25-dihydroxyvitamine D, ou calcitriol. Précurseur, forme de réserve circulante utilisée pour certains dosages et hormone active ne doivent pas être confondus.
Le calcitriol agit via un récepteur nucléaire qui modifie l’expression de gènes. Il augmente l’absorption intestinale de calcium et de phosphate et participe aux rétrocontrôles endocriniens. Sa synthèse et sa dégradation sont régulées ; une quantité de précurseur donnée ne détermine donc pas à elle seule la concentration finale d’hormone active.
La PTH stimule la voie d’activation rénale. Le FGF23 limite la production de calcitriol et favorise sa dégradation par les enzymes appropriées. Le calcitriol exerce à son tour des rétrocontrôles sur la parathyroïde et les signaux osseux. Le réseau possède plusieurs boucles ; il ne se réduit pas à une chaîne linéaire « vitamine D puis calcium ».
FGF23 : l’os comme organe endocrine
Le FGF23 est produit notamment par les ostéocytes. Il participe à l’équilibre du phosphate en agissant sur le rein, avec des récepteurs dont la signalisation endocrine classique dépend du corécepteur alpha-Klotho. Il diminue la réabsorption tubulaire proximale de phosphate et réduit le calcitriol. Ces actions favorisent une réduction de la charge phosphatée disponible dans le compartiment extracellulaire.
La régulation de FGF23 dépend de plusieurs facteurs, dont les signaux liés au phosphate et au calcitriol. Sa concentration et son activité ne correspondent pas à un simple capteur instantané unique. Il faut distinguer la production, les modifications de la protéine et la réponse des tissus cibles. Une hormone présente dans le sang peut avoir des effets différents si son système récepteur est modifié.
PTH et FGF23 ont tous deux un effet phosphaturiant, mais leurs effets sur le calcitriol sont opposés dans le schéma physiologique de base. Cette comparaison est utile pour organiser les mécanismes sans prétendre prédire toute situation à partir d’une seule hormone.
| Signal | Calcium rénal | Phosphate rénal | Calcitriol et absorption |
|---|---|---|---|
| PTH | Favorise la conservation dans les segments régulés | Diminue la réabsorption proximale | Stimule l’activation rénale |
| FGF23 | Effets complexes non résumés ici | Diminue la réabsorption proximale | Réduit production et disponibilité du calcitriol |
| Calcitriol | Plusieurs effets selon le contexte | Plusieurs effets selon le contexte | Augmente l’absorption intestinale de calcium et phosphate |
Minéralisation et remodelage ne sont pas synonymes
Les ostéoblastes produisent une matrice organique, l’ostéoïde, riche en collagène de type I. La minéralisation dépose une phase minérale dans cette matrice selon des conditions locales contrôlées. Disposer de calcium et de phosphate est nécessaire mais ne suffit pas : les enzymes, les inhibiteurs locaux et l’organisation de la matrice comptent aussi.
Les ostéoclastes résorbent le tissu osseux dans un compartiment acidifié au contact de la matrice. Le remodelage couple des phases de résorption et de formation. La quantité de tissu formé peut différer de la quantité résorbée, produisant un bilan positif ou négatif. Une augmentation de renouvellement ne signifie pas automatiquement une augmentation de masse osseuse.
La calcitonine, produite par les cellules C thyroïdiennes, peut inhiber la résorption ostéoclastique. Son rôle dans l’homéostasie quotidienne du calcium chez l’adulte est moins central que celui du réseau PTH-calcitriol. La symétrie séduisante « PTH augmente, calcitonine diminue » ne doit pas masquer cette différence d’importance physiologique.
Raisonnement de bilan
Sur une période définie, la variation du stock corporel résulte des entrées nettes et des sorties. Les échanges entre sang et os redistribuent les éléments sans constituer nécessairement une entrée ou une sortie de l’organisme. Si 300 mg de calcium sont absorbés, 220 mg éliminés dans les urines et 80 mg perdus par d’autres voies, le bilan externe est nul dans cet exemple simplifié. Cela n’interdit pas des flux osseux importants qui s’équilibrent.
Pour le rein, charge filtrée = débit de filtration × concentration ultrafiltrable. Excrétion = charge filtrée − réabsorption, si l’on néglige les termes absents du modèle. Une augmentation de phosphaturie peut résulter d’une charge filtrée accrue ou d’une réabsorption réduite. Déduire automatiquement une variation hormonale d’un seul débit urinaire serait insuffisant.
- Détection par la parathyroïde
- Hausse de PTH
- Conservation rénale et calcitriol
- Modification des flux intestinaux et osseux
- Rétrocontrôle sur la sécrétion
Schéma de principe : lire les conditions et les limites dans le texte.
Limite : les flux sont simultanés, dépendent du contexte et n’évoluent pas tous à la même vitesse ; le phosphate et le FGF23 ajoutent des boucles parallèles.
Changer la liaison sans changer le stock total
Question. Lors d'une augmentation du pH sanguin, le calcium total peut rester proche de sa valeur initiale alors que la fraction ionisée diminue. Comment cela est-il possible ?
Correction. L'alcalinisation favorise la liaison du calcium aux protéines plasmatiques, notamment à l'albumine. Une redistribution entre formes liées et libres peut donc modifier la fraction biologiquement active sans élimination importante de calcium hors du plasma. Le calcium total additionne plusieurs formes et ne mesure pas directement cette redistribution. Inversement, une baisse d'albumine peut abaisser le total sans baisse proportionnelle de l'ionisé. Le prélèvement et son pH influencent ainsi l'interprétation ; une formule de correction du total ne remplace pas systématiquement une mesure de l'ionisé.
Exercices progressifs
Exercice 1. Une baisse d’albumine impose-t-elle une baisse proportionnelle du calcium ionisé ?
Exercice 2. Quel est l’effet direct attendu d’une diminution des cotransporteurs proximaux sodium-phosphate ?
Exercice 3. Comparer PTH et FGF23 sur la production de calcitriol.
Exercice 4. La PTH agit-elle principalement sur les ostéoclastes par un récepteur direct pour stimuler leur formation ?
Exercice 5. Une charge filtrée fictive de phosphate de 1 000 unités/j et une réabsorption de 850 donnent quelle excrétion ? Que devient-elle si la réabsorption tombe à 700 ?
Corrections argumentées
Correction 1. Non. La fraction liée peut diminuer et abaisser le calcium total sans changement proportionnel de la fraction ionisée. Il faut distinguer les mesures.
Correction 2. Une réduction de réabsorption et donc une augmentation d’excrétion, à charge filtrée comparable. La phosphatémie finale dépend de l’ensemble des flux.
Correction 3. La PTH stimule l’activation rénale dans le schéma de base ; le FGF23 réduit la production et favorise la dégradation du calcitriol. Les deux hormones sont pourtant phosphaturiantes.
Correction 4. Non. L’effet principal passe par les cellules de la lignée ostéoblastique et les ostéocytes, notamment via les signaux RANKL-RANK et leur modulation.
Correction 5. L’excrétion vaut 150 unités/j puis 300 unités/j. Elle double sans modification de charge filtrée, uniquement par diminution de réabsorption dans ce modèle.
Références et portée
Rédaction originale et exemples construits. Ressources universitaires et institutionnelles consultées le 1 octobre 2026 pour recoupement ciblé ; elles ne certifient pas le programme local.
- OpenStax : 17 5 the parathyroid glands
- Ressource universitaire : www.ncbi.nlm.nih.gov
- Ressource universitaire : www.ncbi.nlm.nih.gov
Accès documentaire : les extraits indexés des chapitres Endotext ont été consultés ; l’ouverture intégrale a rencontré une vérification antirobot. La page OpenStax a été accessible directement. Cette limite d’accès est conservée dans le rapport de relecture.
Ce cours, en cartes de révision
Ce cours est déjà transformé en 415 cartes, chacune sourcée à sa page. Tu l’ajoutes gratuitement à tes cours depuis la bibliothèque de l’app, et Ossik te ressort ses cartes au bon moment.