Ce cours réunit 5 parties : 1. Méiose et gamétogenèses humaines ; 2. Fécondation et développement préimplantatoire ; 3. Implantation, disque didermique et annexes précoces ; 4. Gastrulation, axes et dérivés des feuillets ; 5. Neurulation, délimitation et développement segmentaire.
Partie 1 · Méiose et gamétogenèses humaines
Prérequis et objectifs
Prérequis : mitose, chromosomes homologues et ADN.
À la fin de ce cours : compter n et C ; comparer les deux gamétogenèses ; relier maturation germinale et support somatique.
Méiose : réduire la ploïdie après une seule réplication
La méiose associe une réplication de l’ADN à deux divisions. La première sépare les chromosomes homologues ; la seconde sépare les chromatides sœurs. Un chromosome homologue paternel et son homologue maternel portent les mêmes catégories de gènes mais pas nécessairement les mêmes allèles. Deux chromatides sœurs proviennent de la réplication d’un chromosome ; elles peuvent ensuite différer par recombinaison.
La notation n indique le nombre de jeux chromosomiques ; C exprime une quantité d’ADN relativement à un génome haploïde non répliqué. Une cellule germinale diploïde avant réplication est 2n/2C ; après réplication, 2n/4C ; après méiose I, n/2C ; après méiose II, n/1C. Le nombre de chromosomes se compte par centromères fonctionnellement individualisés, pas par nombre de traits sur un dessin.
| État humain classique | Chromosomes | Chromatides | ADN |
|---|---|---|---|
| Avant réplication | 46 | 46 | 2C |
| Prophase I | 46 | 92 | 4C |
| Après première division, par cellule | 23 | 46 | 2C |
| Gamète après seconde division | 23 | 23 | 1C |
Prophase I et diversité
Pendant la prophase I, les homologues s’apparient et établissent des échanges entre chromatides non sœurs. Le complexe synaptonémal participe à leur association. Les étapes leptotène, zygotène, pachytène, diplotène et diacinèse décrivent l’évolution de cette organisation. Les chiasmas matérialisent des relations issues des recombinaisons après désassemblage du complexe.
Le brassage intrachromosomique vient des recombinaisons ; le brassage interchromosomique dépend de la répartition des paires homologues. Ces phénomènes produisent de la diversité sans changer systématiquement le nombre de chromosomes. Une non-disjonction est un défaut de séparation, distinct d’un échange normal. Ses conséquences dépendent de la division concernée et des gamètes impliqués.
Spermatogenèse
À partir de la puberté, les spermatogonies assurent maintien et production de la lignée germinale. Des cellules engagées deviennent des spermatocytes I après réplication. La méiose I produit des spermatocytes II, puis la méiose II des spermatides. La spermiogenèse transforme les spermatides en spermatozoïdes sans nouvelle division : condensation nucléaire, formation de l’acrosome, développement du flagelle et réduction du cytoplasme.
Les divisions peuvent laisser des ponts cytoplasmiques entre cellules germinales apparentées. Ces connexions favorisent une coordination de leur développement. Les cellules de Sertoli soutiennent la lignée, assurent une organisation des compartiments et participent à la barrière hématotesticulaire. Les spermatogonies se trouvent du côté basal, tandis que les stades plus avancés progressent vers la lumière.
La LH stimule les cellules de Leydig et la production d’androgènes ; la FSH agit notamment sur les Sertoli. Les androgènes et les signaux de Sertoli coopèrent. L’inhibine B participe au rétrocontrôle sur la FSH. Une hormone ne remplace pas le microenvironnement testiculaire : une fonction normale exige interactions endocrines et locales.
La spermiation libère les spermatozoïdes dans la lumière. Leur maturation fonctionnelle se poursuit dans l’épididyme. La capacitation ultérieure dans les voies génitales féminines est encore une étape distincte. Confondre spermiogenèse, maturation épididymaire et capacitation empêche de situer correctement une anomalie.
Ovogenèse et folliculogenèse
Les ovogonies prolifèrent pendant la vie fœtale puis entrent en méiose. Les ovocytes I restent arrêtés en prophase I, à un stade diplotène prolongé. À partir de la puberté, des cohortes folliculaires évoluent ; la plupart régressent par atrésie. La reprise de méiose du follicule préovulatoire conduit à une première division asymétrique donnant un ovocyte II et un premier globule polaire.
L’ovocyte II est arrêté en métaphase II au moment de l’ovulation dans le schéma humain habituel. La fécondation déclenche l’achèvement de la seconde division et l’émission d’un second globule polaire. L’asymétrie conserve le cytoplasme dans une grande cellule destinée à soutenir les premières étapes du développement. Le nombre de produits cellulaires ne traduit donc pas le nombre de gamètes fonctionnels équivalents.
La croissance folliculaire associe ovocyte, granulosa et thèques. La zone pellucide apparaît autour de l’ovocyte ; une cavité antrale se développe dans les follicules plus avancés. Le modèle à deux cellules/deux gonadotrophines explique une coopération majeure : la thèque sous influence de LH produit des précurseurs androgéniques ; la granulosa sous influence de FSH les aromatise en œstrogènes. Les récepteurs et fonctions évoluent avec la maturation.
Comparer sans simplifier à l’excès
La spermatogenèse produit de nombreux gamètes selon une organisation continue à l’échelle de l’organe. L’ovogenèse comporte un stock établi précocement, de longs arrêts et des divisions asymétriques. L’âge de la cellule germinale et l’environnement influencent la fidélité des processus. Ces différences ne signifient pas que tous les risques de transmission ou de mutation appartiennent à un seul parent.
- Cellule 2n/2C
- Réplication : 2n/4C
- Méiose I : n/2C
- Méiose II : n/1C
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il indique l’état d’une cellule représentative après chaque étape, sans montrer les recombinaisons ni l’asymétrie ovocytaire.
Dans un exercice, il faut nommer la cellule et l’instant. « Ovocyte = haploïde » est faux pour l’ovocyte I ; « gamète = chromosome à une chromatide » doit être adapté à l’ovocyte II ovulé qui n’a pas achevé sa seconde division. Les expressions pédagogiques générales deviennent exactes lorsqu’elles sont reliées à un stade précis.
Figure intégrée : atlas 24-08
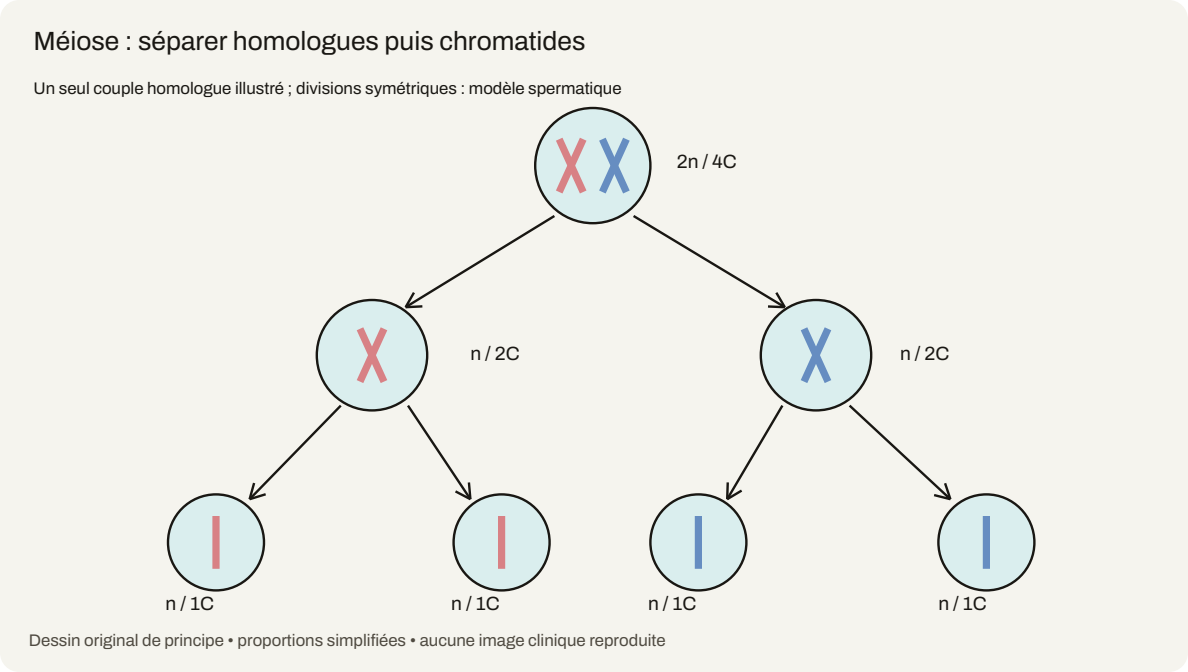
Légende du dessin
1. Cellule primaire après réplication : 2n et 4C.
2. Deux cellules après méiose I : chacune n et 2C.
3. Quatre produits après méiose II : chacun n et 1C.
Lecture et limites
Le dessin ne représente qu’un couple de chromosomes homologues afin de rendre leur séparation lisible. Les couleurs distinguent les homologues ; les deux traits d’un chromosome dupliqué représentent ses chromatides. Un chromosome à deux chromatides reste un chromosome tant que le comptage par centromère ne les sépare pas.
La première division sépare les homologues et réduit le nombre de jeux chromosomiques. La seconde sépare les chromatides sœurs. La réplication préalable augmente la quantité d’ADN sans doubler le nombre de jeux : 2n/2C devient 2n/4C. Entre méiose I et II, aucune réplication complète supplémentaire n’est introduite dans ce modèle.
Les divisions symétriques illustrent le modèle spermatique. L’ovogenèse humaine comporte des cytocinèses asymétriques et des arrêts spécifiques ; on ne peut donc lire les quatre cercles comme quatre ovocytes fonctionnels équivalents. Les recombinaisons ne sont pas dessinées et les chromatides sont simplifiées. Pour l’humain, le nombre haploïde vaut 23, mais le schéma réduit permet de suivre la logique sans dessiner chaque chromosome.
Le dessin figure également dans la planche autonome 24-02, partie 4, avec un exercice de restitution.
Distinguer les deux non-disjonctions
Exercice. Dans un modèle limité à une paire d'homologues, comparer un défaut de séparation en méiose I et un défaut touchant une seule des deux cellules en méiose II. Supposer les autres séparations normales.
Correction. En méiose I, les deux homologues gagnent le même pôle : après méiose II, les quatre produits sont aneuploïdes pour le chromosome étudié, deux avec une copie supplémentaire et deux avec une copie manquante. Si la méiose I est normale et qu'une seule cellule subit une non-disjonction en méiose II, deux produits sont normaux, un possède une copie supplémentaire et un une copie manquante. Cette comparaison concerne un modèle à divisions symétriques ; en ovogenèse, les produits ne correspondent pas à quatre gamètes fonctionnels. Compter les centromères permet d'éviter de confondre chromosome et chromatide.
Lecture visuelle : Méiose : ADN et ploïdie ne mesurent pas la même chose
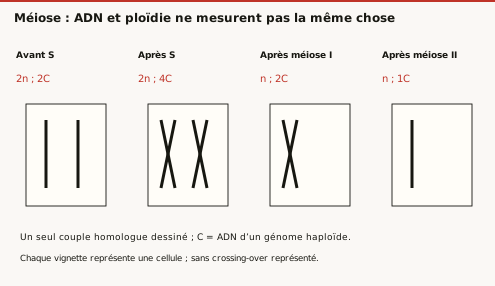
Question de lecture. Une cellule après méiose I est-elle diploïde parce que chaque chromosome possède deux chromatides ?
Correction. Non : elle possède un seul jeu d’homologues, donc n. Le nombre de chromatides et la ploïdie sont distincts.
Exercices progressifs
Exercice 1. Donner l’état n/C d’un spermatocyte I après réplication.
Exercice 2. La spermiogenèse réduit-elle la ploïdie ?
Exercice 3. À quel stade est habituellement bloqué l’ovocyte ovulé ?
Exercice 4. Comparer les produits de la méiose chez les deux sexes.
Exercice 5. Deux homologues échangent des segments sans changer de nombre. Est-ce une non-disjonction ?
Corrections argumentées
Correction 1. 2n/4C : deux jeux chromosomiques, chacun répliqué. Chez l’humain, 46 chromosomes et 92 chromatides.
Correction 2. Non. Les spermatides sont déjà haploïdes après la méiose II. La spermiogenèse transforme leur forme et leur équipement.
Correction 3. En métaphase II ; il est n/2C. La fécondation permet normalement la fin de cette division.
Correction 4. La spermatogenèse produit quatre spermatides haploïdes à partir d’un spermatocyte I. L’ovogenèse conserve l’essentiel du cytoplasme dans une grande cellule et produit des globules polaires, non quatre gamètes équivalents.
Correction 5. Non. Il s’agit d’une recombinaison si l’échange est organisé entre chromatides non sœurs. La non-disjonction correspond à un défaut de séparation.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 2 · Fécondation et développement préimplantatoire
Prérequis et objectifs
Prérequis : gamètes, méiose et membranes.
À la fin de ce cours : ordonner fécondation et segmentation ; distinguer compaction et cavitation ; préciser les conventions chronologiques.
Convention de datation
Dans ce cours, J0 désigne la fécondation et les jours suivants sont postfécondation. Les semaines d’aménorrhée, ou SA, se comptent depuis le premier jour des dernières règles. Dans le modèle d’un cycle avec ovulation vers le quatorzième jour, âge en SA ≈ âge postfécondation en semaines + 2. Cette équivalence est approximative et dépend de la date réelle d’ovulation. Elle ne doit pas être appliquée comme une identité biologique universelle.
Rendre les gamètes compétents
La rencontre a lieu habituellement dans l’ampoule de la trompe. Le transport des gamètes dépend des propriétés des voies génitales, des mouvements tubaires et de la mobilité spermatique. Le spermatozoïde doit subir une capacitation modifiant notamment sa membrane et sa signalisation. Une motilité visible ne prouve pas à elle seule sa capacité à féconder.
La réaction acrosomique libère ou expose des éléments nécessaires au franchissement des enveloppes ovocytaires et à l’interaction avec l’ovocyte. Elle ne correspond pas à la fusion des deux gamètes. Les relations avec le cumulus et la zone pellucide sont complexes ; une description réduite à une seule enzyme qui « perce un trou » est insuffisante.
La fusion des membranes gamétiques permet l’entrée de composants spermatiques et déclenche des signaux calciques ovocytaires. Ceux-ci participent à l’activation de l’ovocyte, à l’exocytose des granules corticaux et à l’achèvement de la méiose II. Les modifications des enveloppes limitent la polyspermie. Il ne faut pas transposer sans précaution à l’humain tous les mécanismes rapides décrits chez d’autres espèces.
Deux pronoyaux puis une première division
Le noyau spermatique se décondense ; les génomes parentaux s’organisent en pronoyaux. Après réplication et réorganisation des enveloppes, les chromosomes participent au premier fuseau. Les pronoyaux ne fusionnent pas simplement comme deux gouttes pour fabriquer un noyau interphasique diploïde permanent avant toute division. Les détails structuraux sont plus complexes que ce raccourci.
La fécondation réunit les contributions génétiques parentales et active un programme de développement. Elle ne garantit pas à elle seule la poursuite normale de toutes les étapes. Une anomalie de nombre chromosomique, de structure ou de régulation peut affecter la suite. La description pédagogique du déroulement normal ne doit pas être transformée en promesse de résultat individuel.
Segmentation et compaction
Les premières divisions mitotiques produisent des blastomères. Elles augmentent leur nombre sans augmentation proportionnelle du volume total de l’ensemble entouré par la zone pellucide. Les blastomères deviennent donc plus petits. Le développement humain présente une variabilité : les repères temporels sont des plages et l’état morphologique apporte une information complémentaire.
La compaction, classiquement visible autour du stade huit cellules, renforce les contacts et la polarité. Elle contribue à distinguer des cellules externes et internes. La morula est un amas compact de blastomères, observé typiquement autour de J3-J4. Elle n’est pas définie par une grande cavité centrale.
La cavitation forme le blastocèle. Le blastocyste associe une masse cellulaire interne, ou embryoblaste, un trophectoderme périphérique et une cavité. La masse interne contribue notamment à l’embryon et à certaines annexes ; le trophectoderme contribue aux tissus trophoblastiques. Réduire embryoblaste à « tout l’embryon seulement » et trophoblaste à « tout le placenta » ignore les contributions extraembryonnaires et maternelles.
| Repère approximatif postfécondation | Événement |
|---|---|
| J0 | Fécondation et activation ovocytaire |
| J1-J3 | Segmentation précoce |
| J3-J4 | Compaction avancée, morula |
| J4-J5 | Formation du blastocyste |
| J5-J6 environ | Éclosion de la zone pellucide |
| Vers J6-J7 | Début de l’implantation dans le déroulement habituel |
Ces dates ne constituent ni des seuils diagnostiques isolés ni une horloge identique pour chaque embryon.
Éclosion et préparation de l’implantation
La zone pellucide maintient une enveloppe autour de l’ensemble pendant le transport précoce. Le blastocyste doit s’en libérer pour établir un contact approprié avec l’endomètre. L’éclosion associe expansion et modifications locales de l’enveloppe. La disparition de la zone ne signifie pas que l’implantation est déjà achevée.
L’endomètre doit être dans un état réceptif sous l’influence des hormones ovariennes et de signaux locaux. L’implantation implique apposition, adhérence et invasion contrôlée. La qualité du blastocyste et celle du milieu maternel participent au résultat ; aucune étape ne dépend d’un seul acteur isolé.
- Fécondation
- Segmentation
- Compaction
- Blastocyste
- Éclosion et contact endométrial
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : certains événements se chevauchent, et le transport tubaire accompagne plusieurs étapes sans constituer une division supplémentaire.
Comment raisonner sur une image
Pour identifier un stade, on cherche d’abord une cavité, une organisation interne/externe et l’état de la zone pellucide. Un nombre de cellules seul devient moins utile lorsque les blastomères se compactent ou que certains sont masqués. La qualité d’un dessin ne doit pas imposer une symétrie parfaite à une structure réelle variable.
Une observation à J5 avec cavité et masse interne correspond à un blastocyste, mais ne démontre pas que toutes ses cellules possèdent un génome identique ou qu’il s’implantera. Les termes morphologiques décrivent des caractères observés. La distinction entre description, mécanisme et pronostic évite de demander à une image plus qu’elle ne peut fournir.
Segmentation : un calcul de volume
Modèle. Un zygote de volume V se divise en huit blastomères identiques sans croissance ni perte de matière. Quel volume et quel rayon possède chaque blastomère, si l'on idéalise toutes les cellules par des sphères ?
Correction. Chaque volume vaut V/8. Puisque le volume d'une sphère varie comme le cube de son rayon, le rayon est multiplié par la racine cubique de 1/8, soit 1/2. Diviser le rayon par huit serait une erreur de dimension. L'exemple explique comment le nombre de cellules augmente alors que la taille globale reste contrainte par la zone pellucide. Les blastomères réels ne sont ni tous identiques ni des sphères libres : compaction, polarité et cavitation modifieront leurs contacts et la géométrie de l'ensemble.
Cavitation : construire un épithélium avant de remplir un espace
La morula compacte n'est pas seulement une sphère de blastomères serrés. La position externe favorise une polarité apico-basale et l'organisation de jonctions entre cellules de surface. Des transports ioniques orientés contribuent à accumuler des solutés dans un compartiment interne ; l'eau suit les conditions osmotiques, permettant l'expansion du blastocèle. Cette cavité est donc produite par des comportements cellulaires coordonnés, non par la mort obligatoire de toutes les cellules centrales.
L'étanchéité relative et le transport vectoriel sont complémentaires. Une pompe active ne produit pas un compartiment stable si les solutés fuient immédiatement par une interface totalement perméable. Inversement, des jonctions sans transport ne fournissent pas seules la force de remplissage. Cette construction relie directement embryologie, polarité épithéliale et transports membranaires étudiés en 06-01, partie 2.
Potentiel cellulaire, lignage et preuve expérimentale
Totipotence et pluripotence décrivent des capacités de développement dans des conditions définies. La masse cellulaire interne contribue à l'embryon et à certaines structures extraembryonnaires ; elle n'est pas identique au trophectoderme externe. Une cellule située à l'intérieur sur une image n'est pas démontrée pluripotente par sa position seule : il faut des critères de lignage et de potentiel adaptés.
L'activation du génome embryonnaire et l'utilisation de produits maternels se chevauchent au début du développement. Une synthèse protéique précoce ne prouve donc pas que toutes les informations utilisées viennent déjà d'une transcription embryonnaire nouvelle. Pour distinguer les contributions, une expérience doit mesurer transcription et traduction séparément et tenir compte du stade.
Deux perturbations préimplantatoires à comparer
Question. Dans un modèle, les jonctions externes restent présentes mais les transports ioniques nécessaires au remplissage sont bloqués. Dans un second, les transports persistent mais la barrière fuit. Prévoir l'effet commun et expliquer les causes distinctes.
Correction. L'expansion stable de la cavité peut diminuer dans les deux cas. Dans le premier, le gradient qui attire l'eau n'est pas entretenu ; dans le second, le compartiment ne conserve pas efficacement les solutés accumulés. Une cavité réduite ne permet donc pas de choisir entre défaut de pompe et défaut de jonction sans mesure supplémentaire. La morphologie finale est une conséquence, non une identification automatique du mécanisme initial.
Exercices progressifs
Exercice 1. Un âge de deux semaines postfécondation correspond approximativement à combien de SA dans le modèle usuel ?
Exercice 2. La réaction acrosomique et la réaction corticale concernent-elles la même cellule ?
Exercice 3. Pourquoi les blastomères deviennent-ils plus petits ?
Exercice 4. Quel critère distingue surtout morula et blastocyste ?
Exercice 5. Un blastocyste encore dans la zone pellucide peut-il établir l’implantation habituelle sans s’en libérer ?
Corrections argumentées
Correction 1. Environ quatre SA. L’addition de deux semaines suppose une ovulation autour du quatorzième jour ; elle n’est pas une datation individuelle certaine.
Correction 2. Non. La première concerne le spermatozoïde ; la seconde correspond à l’exocytose de granules de l’ovocyte activé. Elles participent à des étapes différentes.
Correction 3. Les divisions répartissent un volume global qui augmente peu pendant la segmentation précoce. Le nombre de cellules augmente plus vite que le volume de l’ensemble.
Correction 4. La présence d’un blastocèle et la distinction embryoblaste/trophectoderme caractérisent le blastocyste ; la morula est un amas compact sans cette grande cavité.
Correction 5. L’éclosion est normalement nécessaire pour le contact trophoblastique et l’implantation. Un blastocyste observé dans sa zone n’a pas encore accompli cette transition.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
- Ressource vérifiée : approfondissement 08-01, partie 2, 1
- Ressource vérifiée : approfondissement 08-01, partie 2, 2
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 3 · Implantation, disque didermique et annexes précoces
Prérequis et objectifs
Prérequis : blastocyste, épithéliums et convention postfécondation/SA.
À la fin de ce cours : reconstruire la deuxième semaine ; distinguer deux feuillets, deux cavités et tissus maternels ; situer le chorion.
Deuxième semaine : repère et logique
Les jours de ce cours sont postfécondation. La deuxième semaine correspond approximativement à la quatrième SA dans le modèle conventionnel. L’embryon s’implante, le trophoblaste se différencie, le disque didermique se met en place et plusieurs compartiments extraembryonnaires apparaissent. Ces transformations sont simultanées à l’échelle de la semaine : une liste chronologique ne signifie pas que chacune attend la fin complète de la précédente.
L’implantation débute habituellement vers J6-J7 par le pôle embryonnaire du blastocyste. L’endomètre n’est pas un sol inerte ; ses cellules stromales, ses glandes, ses vaisseaux et ses populations immunitaires participent à l’interface. La réaction déciduale modifie le stroma maternel autour du site.
Cytotrophoblaste et syncytiotrophoblaste
Le cytotrophoblaste est constitué de cellules individualisées, capables de proliférer. Le syncytiotrophoblaste forme une masse plurinucléée sans limites cellulaires internes équivalentes et participe à l’invasion de l’endomètre. L’augmentation du syncytium repose notamment sur l’apport de cellules trophoblastiques. Dire qu’il se multiplie simplement par mitoses de cellules individualisées ne décrit pas correctement son organisation.
Des lacunes apparaissent dans le syncytiotrophoblaste puis établissent progressivement des relations avec les espaces sanguins maternels. Le développement de la circulation utéroplacentaire est progressif et contrôlé ; il ne faut pas représenter dès le premier contact une perfusion adulte complète. Les cellules trophoblastiques produisent notamment l’hCG, qui contribue au maintien initial du corps jaune et de son soutien hormonal.
Le trophoblaste envahit de façon régulée. Une implantation normale implique un équilibre entre adhérence, remodelage tissulaire et limitation de l’invasion. Les détails cliniques des défauts d’implantation dépassent la description morphologique, mais la logique aide à comprendre pourquoi profondeur et localisation comptent.
Le disque didermique
L’embryoblaste se différencie en épiblaste et hypoblaste. L’épiblaste est adjacent à la cavité amniotique ; l’hypoblaste regarde la cavité vitelline primitive. Le mot didermique décrit deux couches à ce stade ; il ne signifie pas que l’ectoderme et l’endoderme définitifs sont déjà tous deux établis comme après gastrulation.
L’épiblaste donnera les trois feuillets embryonnaires lors de la gastrulation. L’hypoblaste participe surtout au revêtement extraembryonnaire de la vésicule vitelline et à des signaux de développement. La confusion hypoblaste/endoderme embryonnaire définitif est une erreur majeure, car elle attribue les dérivés digestifs à la mauvaise population.
La cavité amniotique se développe du côté de l’épiblaste, avec des amnioblastes contribuant à son toit. La vésicule vitelline primitive puis secondaire s’organise du côté hypoblastique. Chez l’humain, cette vésicule n’est pas une grande réserve de vitellus comme chez certains animaux ; elle participe néanmoins à plusieurs événements précoces, dont hématopoïèse et relations avec l’intestin en formation.
Mésoderme extraembryonnaire et cavité choriale
Un tissu mésenchymateux extraembryonnaire apparaît entre les revêtements internes et le trophoblaste. Des espaces s’y réunissent pour former le cœlome extraembryonnaire, ou cavité choriale. On distingue alors une composante somatique associée au trophoblaste et à l’amnios et une composante splanchnique associée à la vésicule vitelline.
Le chorion associe trophoblaste et mésoderme extraembryonnaire somatique. Le disque, l’amnios et la vésicule vitelline restent reliés à la paroi choriale par un pédicule de fixation. Celui-ci contribuera à l’organisation du cordon avec d’autres structures lors de la délimitation. Il ne faut pas appeler immédiatement ce pédicule un cordon adulte déjà constitué.
| Structure | Situation relative | Contribution principale à ce stade |
|---|---|---|
| Épiblaste | Sous la cavité amniotique | Source des feuillets embryonnaires futurs |
| Hypoblaste | Face vitelline du disque | Revêtement extraembryonnaire et signaux |
| Amnios | Autour de la cavité amniotique | Enveloppe de protection en développement |
| Chorion | Paroi périphérique | Interface trophoblastique et support extraembryonnaire |
| Pédicule de fixation | Pont vers la paroi choriale | Liaison future ombilicale |
Villosités initiales
À la fin de la deuxième semaine apparaissent des villosités primaires, comportant un axe cytotrophoblastique recouvert de syncytiotrophoblaste. L’arrivée d’un axe mésenchymateux produit les villosités secondaires ; l’apparition de capillaires fœtaux définit les villosités tertiaires durant la troisième semaine. Ce classement repose sur la composition, pas uniquement sur la longueur du prolongement.
Une villosité tertiaire contient donc du sang fœtal dans ses capillaires, séparé du sang maternel qui l’entoure dans la chambre intervilleuse. Les deux circulations coopèrent pour les échanges sans former normalement une seule lumière commune. La présence de sang maternel dans les lacunes n’équivaut pas à un mélange massif avec un réseau fœtal encore en cours de formation.
- Cavité amniotique
- Épiblaste
- Hypoblaste
- Vésicule vitelline
Repères complémentaires, sans ordre ni lien de cause.
Limite du schéma : il indique un ordre spatial de haut en bas, non un trajet de migration ou de circulation. Le trophoblaste et la cavité choriale entourent cet ensemble.
Construire une coupe correcte
Pour dessiner cette semaine, on commence par la paroi externe trophoblastique, puis la cavité choriale, enfin l’ensemble disque-amnios-vésicule relié par son pédicule. On ajoute les couches internes sans inverser épiblaste et hypoblaste. Une coupe sagittale permet de situer un futur axe craniocaudal, mais les formes et dimensions changent rapidement.
Les dates J8, J9, J12 ou J13 utilisées dans les schémas sont des repères conventionnels. La séquence et les relations topologiques sont plus robustes qu’une attribution au jour près. En examen, toute datation doit annoncer sa convention ; écrire « quatrième semaine » sans préciser SA ou postfécondation peut décaler l’interprétation de deux semaines.
Corriger une coupe de deuxième semaine
Dessin à critiquer. Un schéma place le disque didermique entre cavité amniotique et cavité choriale, en omettant la vésicule vitelline. Que faut-il rectifier ?
Correction. La face épiblastique borde l'amnios ; la face hypoblastique regarde la vésicule vitelline. La cavité choriale est extraembryonnaire et entoure largement cet ensemble, relié à la paroi par le pédicule de fixation. Elle ne remplace donc pas directement la vésicule vitelline au contact de l'hypoblaste. On dessine d'abord les deux faces du disque, puis leurs cavités voisines, enfin l'enveloppe choriale extérieure. Ce contrôle des voisinages reste valable même si les proportions du dessin sont simplifiées. Les noms « amniotique », « vitelline » et « choriale » ne désignent pas trois étapes successives d'une même cavité.
De l'endomètre au disque : ne pas traverser les mauvaises cavités
L'endomètre appartient à la mère ; le trophoblaste dérive du conceptus. Le sang maternel et les sécrétions glandulaires n'entrent pas dans la cavité amniotique pour nourrir directement l'épiblaste. Les échanges précoces dépendent d'interfaces et de voies qui se remanient progressivement. Le modèle d'un placenta mature très perfusé ne doit pas être projeté sans distinction sur chaque jour de la deuxième semaine.
Le syncytiotrophoblaste est en contact avec les tissus maternels, tandis que le disque embryonnaire est séparé de lui par d'autres tissus et espaces extraembryonnaires. Une flèche allant de l'endomètre à l'épiblaste doit donc préciser ce qu'elle représente : diffusion d'une substance, continuité anatomique ou trajet d'une cellule. Ces trois flèches ne sont pas interchangeables.
Vésicule vitelline, amnios et chorion : fonctions et relations
La vésicule vitelline humaine ne constitue pas une volumineuse réserve de vitellus comparable à celle d'un œuf d'oiseau. Elle participe néanmoins à des fonctions précoces, dont des contributions à l'hématopoïèse et aux échanges selon le stade. Réduire son intérêt à sa taille ou à l'absence d'un stock nutritif massif ferait perdre sa fonction de territoire embryologique.
L'amnios borde la cavité amniotique ; le chorion forme une enveloppe plus externe associant trophoblaste et mésoderme extraembryonnaire somatique. La cavité choriale se trouve entre ces organisations, sauf aux zones de connexion. Le pédicule de fixation ne doit pas être dessiné comme un tube digestif ouvert sur la cavité choriale. Il porte une relation mécanique et vasculaire en développement, différente du canal vitellin qui sera individualisé lors des replis.
Reconstruction sans calendrier rigide
Question. Une coupe montre deux couches du disque, une cavité au-dessus, une vésicule au-dessous et un large espace périphérique. Identifier chaque espace, puis expliquer pourquoi ce schéma ne donne pas un jour exact.
Correction. La cavité au contact de l'épiblaste est amniotique ; la vésicule au contact de l'hypoblaste est vitelline ; le large espace extraembryonnaire est chorial. Les relations situent une organisation de deuxième semaine, mais plusieurs transformations se chevauchent et varient. Le jour exact demanderait d'autres critères et une convention de datation. L'exercice privilégie une topologie contrôlable à une précision chronologique artificielle.
Exercices progressifs
Exercice 1. Quelle couche donnera les trois feuillets embryonnaires ?
Exercice 2. Le syncytiotrophoblaste est-il formé de cellules bien individualisées ?
Exercice 3. Quels éléments composent le chorion ?
Exercice 4. Une villosité possède un axe mésenchymateux mais aucun capillaire. Comment la nommer ?
Exercice 5. Quel côté du disque regarde la cavité amniotique ?
Corrections argumentées
Correction 1. L’épiblaste. L’hypoblaste contribue surtout à des structures extraembryonnaires et ne constitue pas l’endoderme embryonnaire définitif issu de la gastrulation.
Correction 2. Non. Il forme un syncytium plurinucléé. Le cytotrophoblaste possède, lui, des cellules individualisées proliférantes.
Correction 3. Le trophoblaste et le mésoderme extraembryonnaire somatique qui lui est associé. L’amnios est une enveloppe distincte.
Correction 4. Villosité secondaire. La présence de capillaires fœtaux ferait parler de villosité tertiaire.
Correction 5. Le côté épiblastique. Le côté hypoblastique regarde la vésicule vitelline. Cette orientation est un repère pour toutes les coupes de la deuxième semaine.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
- Ressource vérifiée : approfondissement 08-01, partie 3, 1
- Ressource vérifiée : approfondissement 08-01, partie 3, 2
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 4 · Gastrulation, axes et dérivés des feuillets
Prérequis et objectifs
Prérequis : disque didermique, polarité et migration cellulaire.
À la fin de ce cours : expliquer l’origine des trois feuillets ; situer la chorde ; attribuer les grands dérivés sans confondre organe et tissu.
La gastrulation réorganise l’épiblaste
La gastrulation débute classiquement vers J15 postfécondation, soit environ 4 SA + 1 jour (au cours de la cinquième semaine d’aménorrhée) dans la convention usuelle. Une ligne primitive apparaît dans la région caudale de l’épiblaste ; sa partie craniale comporte le nœud primitif. Des cellules épiblastiques convergent, modifient leurs adhérences et s’engagent sous la surface par une transition épithélio-mésenchymateuse.
Les premières cellules qui s’insèrent remplacent des cellules hypoblastiques dans le territoire embryonnaire et forment l’endoderme définitif. D’autres se placent entre couche de surface et endoderme pour former le mésoderme intraembryonnaire. Les cellules restant en surface deviennent l’ectoderme. Les trois feuillets embryonnaires dérivent donc de l’épiblaste, malgré leur position finale différente.
Le mésoderme ne s’interpose pas partout. Aux membranes buccopharyngée et cloacale, ectoderme et endoderme restent directement associés dans le modèle classique. Ces territoires serviront de repères pour les futures ouvertures. Une coupe montrant uniformément trois couches sur toute la longueur est donc une simplification trompeuse.
Axes et signaux
Les axes craniocaudal, dorsoventral et droite-gauche résultent d’événements coordonnés. La ligne primitive constitue un repère morphologique important mais n’est pas l’unique source de toute information antérieure. Des interactions entre tissus extraembryonnaires et embryonnaires précèdent et accompagnent cette organisation.
Des voies de signalisation comme Nodal, BMP, Wnt et leurs antagonistes participent à l’identité des territoires. La conséquence d’un signal dépend de sa concentration, de sa durée et de la compétence cellulaire. Une molécule ne correspond donc pas à un organe unique indépendamment du lieu. Le même réseau peut être réutilisé plus tard dans un autre contexte.
Chorde et axe médian
Des cellules passant par le nœud contribuent à un processus axial qui donnera la chorde. Celle-ci s’organise sous le futur neuroectoderme et participe à l’induction et à la polarisation du système nerveux axial. Son développement comporte des remaniements transitoires de relations avec l’endoderme ; les schémas successifs ne doivent pas être superposés comme s’ils représentaient un état stable unique.
La chorde n’est ni le tube neural ni la future colonne vertébrale entière. Elle constitue un organisateur axial et laisse notamment une contribution au noyau pulpeux des disques intervertébraux. Les vertèbres dérivent principalement de territoires du sclérotome, issus du mésoderme paraxial. Cette distinction de lignée explique pourquoi des structures proches ont des origines différentes.
Régionalisation du mésoderme
Le mésoderme paraxial, de part et d’autre de l’axe, se segmente en somites dans une progression craniocaudale. Le mésoderme intermédiaire contribue largement à l’appareil urogénital. Le mésoderme latéral se sépare en feuillets somatique et splanchnique autour du cœlome intraembryonnaire. Le feuillet somatique participe à la paroi corporelle ; le splanchnique aux tissus associés au tube digestif et à des structures cardiovasculaires.
Les termes somatopleure et splanchnopleure associent respectivement mésoderme somatique avec ectoderme et mésoderme splanchnique avec endoderme. Ils ne désignent donc pas seulement une cellule mésodermique isolée. Les relations spatiales permettent de comprendre les futures séreuses et le lien entre paroi et viscères.
Grands dérivés des feuillets
L’ectoderme donne notamment épiderme et annexes cutanées, système nerveux central via le tube neural, et de nombreux dérivés des crêtes neurales. L’endoderme donne une grande partie des épithéliums digestifs et respiratoires ainsi que le parenchyme épithélial de plusieurs glandes associées. Le mésoderme contribue aux muscles, tissus conjonctifs, système cardiovasculaire et une grande partie de l’appareil urogénital.
Il faut attribuer des tissus plutôt que déclarer un organe entièrement issu d’un feuillet. Le poumon associe épithélium endodermique et soutien mésodermique ; l’intestin associe épithélium endodermique, muscles mésodermiques et neurones entériques issus des crêtes neurales. Une glande possède aussi vaisseaux, stroma et nerfs dont l’origine peut différer de celle de ses cellules sécrétrices.
| Structure ou tissu | Origine majeure dans le modèle de base |
|---|---|
| Épiderme | Ectoderme de surface |
| Neurones et glie du SNC, hors microglie | Neuroectoderme |
| Épithélium intestinal | Endoderme, avec exceptions terminales |
| Muscle intestinal | Mésoderme splanchnique |
| Neurones entériques | Crêtes neurales |
| Appareil néphronique | Mésoderme intermédiaire |
La microglie ne doit pas être attribuée au neuroectoderme avec les autres grandes cellules gliales : elle appartient à une lignée immunitaire d’origine mésodermique. Cette exception illustre la nécessité d’éviter des tableaux trop absolus.
Régression de la ligne primitive
La ligne primitive régresse à mesure que la formation et l’allongement des territoires progressent. Sa persistance anormale peut être liée à des anomalies du développement ; les mécanismes particuliers demandent une étude spécialisée. Le point central est qu’une structure organisatrice précoce peut être temporaire tout en laissant des effets durables.
- Endoderme définitif après ingression
- Mésoderme après ingression
- Ectoderme restant en surface
Repères complémentaires, sans ordre ni lien de cause.
Limite du schéma : les trois devenirs ne constituent pas une séquence. Les migrations et les positions sont spatialement organisées.
Raisonner sur une perturbation
Un défaut de migration peut produire une anomalie d’un feuillet même si les cellules possèdent les gènes appropriés. Un défaut de signal peut modifier l’identité de cellules arrivées au bon endroit. Un défaut de prolifération peut réduire la taille d’un territoire correctement spécifié. Position, identité et quantité doivent donc être distinguées lorsqu’on explique une malformation.
Une expérience montrant qu’un signal induit un marqueur dans une culture prouve une réponse dans ce contexte, pas qu’il suffit seul à construire un organe complet. La morphogenèse exige interactions, géométrie et chronologie. Cette prudence évite de transformer une voie moléculaire en explication unique d’un processus collectif.
Figure intégrée : atlas 24-03
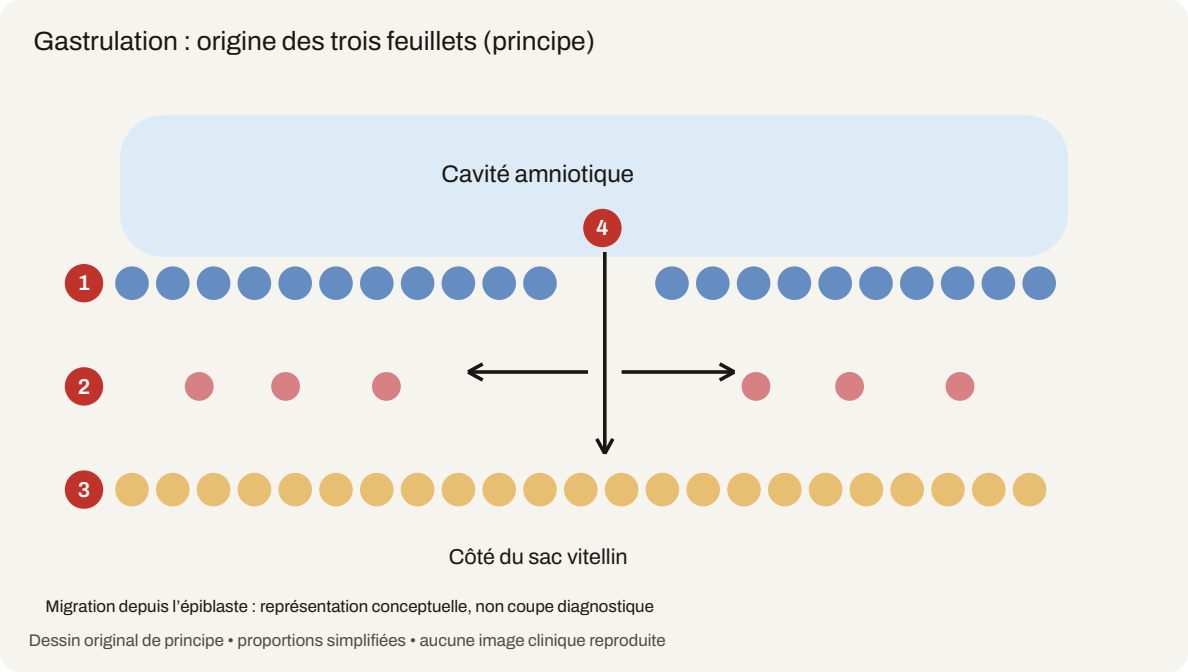
Légende du dessin
1. Épiblaste restant en surface, à l’origine de l’ectoderme embryonnaire.
2. Cellules du mésoderme embryonnaire interposées.
3. Endoderme définitif représenté après remplacement de l’hypoblaste dans le territoire embryonnaire.
4. Région conceptuelle d’ingression au niveau de la ligne primitive.
Lecture et limites
Le dessin organise les relations de provenance, pas une coupe histologique exacte à identifier. Des cellules issues de l’épiblaste s’engagent dans des mouvements qui contribuent à établir l’endoderme définitif et le mésoderme embryonnaires ; les cellules qui restent en surface participent à l’ectoderme. Les trois feuillets embryonnaires proviennent ainsi de l’épiblaste dans cette description classique.
L’hypoblaste et l’endoderme définitif ne doivent pas être confondus. Le schéma représente l’organisation après le remplacement dans la région embryonnaire et omet les territoires extraembryonnaires. Une flèche vers le bas n’indique pas que l’épiblaste serait simplement poussé en bloc : il s’agit de mouvements cellulaires organisés.
La cavité amniotique est du côté dorsal de l’organisation représentée, le sac vitellin du côté opposé. La gastrulation contribue aussi à l’organisation des axes. Les événements s’étalent dans le temps et l’espace ; une date unique ne décrit pas toutes les régions à la fois. Les datations du cours sont exprimées explicitement en âge postfécondation lorsqu’elles sont utilisées.
Le dessin figure également dans la planche autonome 24-02, partie 5, avec un exercice de restitution.
Reconstruire l’intestin à partir de ses tissus
Exercice. Attribuer une origine principale à l'épithélium du tube intestinal, au muscle lisse de sa paroi et aux neurones des plexus entériques.
Correction. L'épithélium intestinal dérive principalement de l'endoderme ; le tissu conjonctif et le muscle lisse de la paroi proviennent du mésoderme splanchnique ; les neurones entériques dérivent des crêtes neurales. Le même organe associe donc plusieurs lignées. Dire « l'intestin est endodermique » constitue un raccourci acceptable seulement si l'on précise que l'on parle de son épithélium et des régions concernées. Une perturbation de migration des crêtes peut affecter l'innervation sans supprimer l'épithélium. Le raisonnement relie ainsi origine, migration et fonction ; il ne transforme pas un feuillet embryonnaire en étiquette exclusive de tout un organe.
Exercices progressifs
Exercice 1. L’endoderme définitif provient-il directement de l’hypoblaste ?
Exercice 2. Pourquoi le poumon ne peut-il être attribué intégralement à l’endoderme ?
Exercice 3. Quelle relation distinguer entre chorde, tube neural et vertèbres ?
Exercice 4. Quel mésoderme contribue largement à l’appareil urogénital ?
Exercice 5. Une anomalie de position d’un tissu prouve-t-elle une mauvaise identité cellulaire ?
Corrections argumentées
Correction 1. Non. Il provient de cellules épiblastiques qui remplacent l’hypoblaste dans le territoire embryonnaire.
Correction 2. Son épithélium est principalement endodermique, mais son tissu conjonctif, ses muscles et ses vaisseaux ont d’autres contributions, surtout mésodermiques.
Correction 3. La chorde est un axe organisateur ; le tube neural forme le SNC ; les vertèbres dérivent surtout du sclérotome. La proximité anatomique n’implique pas une lignée identique.
Correction 4. Le mésoderme intermédiaire. Les organes définitifs associent néanmoins plusieurs types cellulaires et interactions.
Correction 5. Non. Une cellule correctement spécifiée peut mal migrer ; inversement, une cellule bien placée peut avoir une identité inappropriée. Les deux dimensions doivent être testées séparément.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 5 · Neurulation, délimitation et développement segmentaire
Prérequis et objectifs
Prérequis : gastrulation, feuillets et axes embryonnaires.
À la fin de ce cours : suivre la fermeture neurale ; distinguer tube et crêtes ; expliquer délimitation et organisation somitiques.
Neurulation : transformer une plaque en tube
La neurulation commence pendant la troisième semaine postfécondation et se poursuit pendant la quatrième, soit approximativement les cinquième et sixième SA. L’ectoderme dorsal se spécialise en plaque neurale sous l’influence d’interactions avec les tissus sous-jacents. La plaque se creuse en gouttière tandis que ses bords se soulèvent et se rapprochent.
La fermeture débute dans des régions déterminées puis progresse, laissant temporairement des neuropores. Les repères classiques situent la fermeture du neuropore cranial autour de J25 et celle du caudal vers J27-J28 postfécondation. Ce sont des approximations dépendantes des stades ; elles ne doivent pas être utilisées comme dates individuelles certaines. Le tube se sépare de l’ectoderme de surface qui restaure sa continuité.
La neurulation primaire construit une grande partie du tube par plissement et fusion ; la région la plus caudale implique une neurulation secondaire avec condensation et cavitation d’un cordon cellulaire. Une unique fermeture en fermeture-éclair ne décrit donc pas toute la formation du système nerveux axial.
Tube neural et crêtes neurales
Le tube neural donne le système nerveux central. Sa lumière participe au système ventriculaire et au canal central. Sa paroi prolifère et se régionalise ; les régions dorsales et ventrales acquièrent des propriétés différentes sous l’effet de signaux, notamment issus de l’ectoderme dorsal et de la chorde/plaque du plancher.
Les cellules des crêtes neurales se détachent des bords du neuroectoderme et migrent selon des trajets variés. Elles contribuent notamment à des ganglions sensitifs et autonomes, à la glie périphérique, aux mélanocytes, à des cellules de la médullosurrénale et à une part importante du tissu craniofacial. Leurs dérivés dépendent du niveau axial et du moment ; toutes les crêtes ne donnent pas indistinctement tous les produits.
Les neurones entériques dérivent principalement de populations de crêtes neurales qui colonisent le tube digestif. Un défaut de migration ou d’expansion peut laisser un territoire insuffisamment innervé. Ce raisonnement relie une anomalie de trajet cellulaire à une conséquence fonctionnelle sans exiger que l’épithélium digestif soit lui-même d’origine neurale.
Somites et segmentation
Le mésoderme paraxial se segmente progressivement en somites de l’avant vers l’arrière. Un somite se régionalise en sclérotome et dermomyotome, puis en territoires donnant notamment derme et muscles. Les cellules du sclérotome migrent autour de la chorde et du tube neural pour participer au squelette axial.
La resegmentation vertébrale associe classiquement des moitiés de sclérotomes voisins. Cette organisation place les muscles segmentaires en relation avec plusieurs pièces squelettiques, permettant leur mobilisation, et conserve des passages pour les nerfs. Une vertèbre adulte n’est donc pas une simple copie intacte d’un somite isolé.
Les muscles des membres reçoivent des cellules myogènes issues des somites, tandis qu’une grande partie du tissu conjonctif et du squelette appendiculaires provient du mésoderme latéral. Dans un même membre, muscle et os ne partagent donc pas exactement la même origine régionale.
Délimitation : du disque au corps cylindrique
La croissance différentielle provoque des replis céphalique, caudal et latéraux pendant la quatrième semaine. L’embryon acquiert une forme corporelle tridimensionnelle ; une portion de la vésicule vitelline est incorporée pour former le tube digestif primitif. Le lien avec la vésicule persiste temporairement par le canal vitellin.
Le repli céphalique déplace la région cardiogène et d’autres structures vers la face ventrale. Il ne faut pas imaginer le cœur traversant les feuillets comme un objet indépendant : les rapports changent parce que l’ensemble du tissu se replie et croît. Les replis latéraux rapprochent les bords de la paroi ventrale, tout en laissant une région ombilicale où passent des connexions extraembryonnaires.
Le cœlome intraembryonnaire se régionalise en futures cavités péricardique, pleurales et péritonéale. Les feuillets mésodermiques qui le bordent donneront les composantes pariétales et viscérales des séreuses. Le mésentère suspend une partie du tube digestif et permet le passage de vaisseaux, nerfs et lymphatiques.
| Transformation | Effet spatial | Erreur à éviter |
|---|---|---|
| Neurulation | Tube dorsal séparé de la surface | Confondre sa lumière avec le tube digestif |
| Délimitation latérale | Fermeture de la paroi ventrale | Imaginer disparition de toutes les connexions ombilicales |
| Repli céphalique | Modification des rapports cœur/intestin | Traiter les organes comme des objets indépendants |
| Segmentation somite | Organisation répétée puis remaniée | Assimiler un somite à une vertèbre adulte entière |
Lire une coupe transversale
De dorsal à ventral, une coupe de tronc en développement peut montrer ectoderme de surface, tube neural, chorde puis tube digestif. Latéralement se trouvent somites, mésoderme intermédiaire et mésoderme latéral. Ce dessin varie selon le niveau et l’âge. Une coupe cervicale et une coupe caudale du même embryon ne montrent pas nécessairement des degrés de maturation identiques.
- Tube neural dorsal
- Chorde axiale
- Somites latéraux
- Tube digestif ventral
- Cavités cœlomiques latérales
Repères complémentaires, sans ordre ni lien de cause.
Limite du schéma : la liste indique des positions relatives, sans représenter les distances ni toutes les structures d’un niveau précis.
Vulnérabilité et raisonnement
La fermeture neurale exige prolifération, changements de forme, adhérence et interactions avec les tissus voisins. Une perturbation d’une de ces fonctions peut affecter le résultat. Une anomalie de fermeture n’a donc pas forcément une cause moléculaire unique. La relation entre exposition, moment et effet dépend également de la dose et de la susceptibilité.
Une date seule n’est pas un mécanisme. Pour expliquer une anomalie, il faut nommer le processus actif pendant cette fenêtre et le territoire concerné. Cette méthode permet de comprendre pourquoi des perturbations proches dans le temps peuvent donner des conséquences différentes selon le niveau axial et les structures en formation.
Orienter une coupe avant de nommer les structures
Restitution guidée. À un niveau où le tube neural est fermé, placer le tube neural dorsal, la chorde immédiatement ventrale à celui-ci, les somites de part et d'autre et le territoire intestinal plus ventral. Définir dorsal/ventral sur le dessin avant toute flèche.
Correction du piège. La lumière du tube neural n'est pas une lumière digestive et la chorde n'est pas un conduit creux reliant les deux. Tube et chorde appartiennent à des structures et des devenirs différents. Une coupe plus caudale du même embryon peut présenter une gouttière encore ouverte : comparer deux niveaux sans les nommer produit une fausse contradiction chronologique. Le stade global, le niveau de section et l'orientation sont donc trois renseignements nécessaires à la lecture d'une coupe embryonnaire.
Du tube neural à la moelle : régionaliser sans déplacer la lumière
La paroi du tube neural prolifère autour d'une lumière qui donnera notamment le canal central et les cavités ventriculaires selon le niveau. Dans la moelle en développement, les territoires ventraux et dorsaux acquièrent des identités différentes. Les plaques basales sont associées à des fonctions motrices ; les plaques alaires participent aux territoires de réception et de traitement sensitifs. Les signaux ventraux issus notamment de la chorde et du plancher, et les signaux dorsaux, contribuent à cette polarisation.
Cette carte ne signifie pas que les corps cellulaires de tous les neurones sensitifs se trouvent dans la plaque alaire. Les neurones des ganglions sensitifs spinaux dérivent des crêtes neurales et envoient leurs prolongements vers la moelle. Une racine dorsale et une corne dorsale sont donc des structures en relation, mais ni du même compartiment ni de la même origine cellulaire pour toutes leurs composantes.
Re-segmentation et mouvement : la conséquence des décalages
Les sclérotomes se réorganisent de telle sorte qu'une vertèbre associe des contributions de segments adjacents. Les muscles segmentaires peuvent alors franchir une articulation intervertébrale et la mobiliser. Si chaque muscle s'insérait uniquement sur une seule pièce rigide qui ne bouge pas relativement à elle-même, son raccourcissement ne pourrait pas produire le même mouvement articulaire.
La chorde contribue au territoire du nucleus pulposus ; elle ne forme pas tout le disque intervertébral. L'anneau fibreux relève d'autres contributions mésenchymateuses. Il faut donc résister au raccourci « chorde égale disque », de même qu'à « somite égale vertèbre entière ».
Exercice. Un dessin place les corps cellulaires sensitifs primaires dans le tube neural et fait sortir leur axone par une racine ventrale. Corriger les deux erreurs.
Correction. Pour le modèle spinal, les corps cellulaires sensitifs primaires sont dans le ganglion de racine dorsale, issu des crêtes neurales ; leur prolongement central rejoint la moelle par la racine dorsale. La racine ventrale contient les axones efférents moteurs. Il faut conserver cette distinction même lorsque racines dorsale et ventrale se réunissent ensuite dans un nerf spinal mixte.
Exercices progressifs
Exercice 1. Le tube neural et les crêtes neurales ont-ils les mêmes destinations ?
Exercice 2. Donner la convention des dates J25 et J28 citées ici.
Exercice 3. La colonne vertébrale est-elle produite par la chorde entière ?
Exercice 4. Comment se forme le tube digestif lors de la délimitation ?
Exercice 5. Pourquoi deux coupes du même embryon peuvent-elles montrer des maturations différentes ?
Corrections argumentées
Correction 1. Non. Le tube forme principalement le SNC ; les crêtes migrent vers de nombreux dérivés, notamment périphériques et craniofaciaux.
Correction 2. Il s’agit de jours postfécondation approximatifs ; ajouter conventionnellement environ deux semaines pour les exprimer en âge d’aménorrhée.
Correction 3. Non. Elle dérive principalement de cellules sclérotomiques. La chorde joue un rôle organisateur et contribue notamment au noyau pulpeux.
Correction 4. Les replis incorporent une partie de la vésicule vitelline dans le corps, avec un lien vitellin transitoire. Ce n’est pas un tube neuf formé indépendamment de l’endoderme préexistant.
Correction 5. Le développement progresse selon des gradients et des séquences craniocaudales. Les niveaux anatomiques ne sont pas tous synchrones pour chaque événement.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
- Ressource vérifiée : approfondissement 08-01, partie 5, 1
- Ressource vérifiée : approfondissement 08-01, partie 5, 2
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Ce cours, en cartes de révision
Lire un cours ne suffit pas à le retenir. Dépose ce cours, ou le poly de ta fac, dans Ossik : il en sort des cartes sourcées à la page, qu’il te ressort au bon moment.