Ce cours réunit 5 parties : 1. Placenta, membranes et circulation fœtale ; 2. Organogenèse cardiovasculaire, digestive et respiratoire ; 3. Développement urinaire et différenciation sexuelle ; 4. Membres, face, datation et vulnérabilité du développement ; 5. Développement céphalique : appareil pharyngé, face, palais et migrations.
Partie 1 · Placenta, membranes et circulation fœtale
Prérequis et objectifs
Prérequis : villosités, circulation et échanges membranaires.
À la fin de ce cours : distinguer les deux circulations placentaires ; suivre les shunts fœtaux ; expliquer les changements de naissance.
Un organe d’interface à contributions distinctes
Le placenta associe une composante fœtale issue notamment du chorion villeux et une composante maternelle liée à la décidua basale. Il assure échanges gazeux et nutritifs, élimination de déchets, fonctions endocrines et interactions immunologiques. Il ne constitue ni une barrière absolument imperméable ni une passoire sans sélectivité.
Les villosités primaires comportent un axe cytotrophoblastique ; les secondaires acquièrent un mésenchyme ; les tertiaires contiennent des capillaires fœtaux. Cette succession se déroule de la fin de la deuxième à la troisième semaine postfécondation, avec maturation prolongée ensuite. Les arbres villositaires se ramifient, augmentant la surface et adaptant les distances de diffusion.
Deux sangs, deux espaces
Le sang maternel arrive par les artères spiralées dans la chambre intervilleuse et repart par les voies veineuses utérines. Le sang fœtal circule dans les capillaires des villosités. Entre eux se trouvent des couches trophoblastiques et des structures de soutien et endothéliales dont l’épaisseur évolue. À terme, certaines zones d’échange sont très amincies.
Le remodelage des artères spiralées implique des cellules trophoblastiques extravilleuses et des partenaires maternels. Il modifie la résistance et l’alimentation de l’interface. La circulation maternelle ne doit pas être dessinée comme une artère directement raccordée à une veine fœtale. Des passages limités de cellules peuvent survenir, mais le fonctionnement normal repose sur des circulations séparées.
Les deux artères ombilicales conduisent le sang du fœtus vers le placenta ; la veine ombilicale revient du placenta vers le fœtus avec un sang plus oxygéné et enrichi. Le nom artère ou veine dépend du sens par rapport au cœur, pas du contenu en oxygène. Cette règle est indispensable pour éviter une inversion des flèches.
Échanges et limites
L’oxygène et le dioxyde de carbone diffusent selon leurs gradients de pression partielle. Le glucose utilise notamment un transport facilité ; les acides aminés font appel à des systèmes de transport spécifiques. Certains anticorps maternels de classe IgG traversent via des mécanismes récepteurs-dépendants, surtout au cours de la seconde partie de la grossesse. La sélectivité varie selon la molécule et le stade.
Une surface importante, une faible épaisseur et une perfusion suffisante favorisent les échanges. Une réduction de débit peut limiter l’apport même si la barrière est anatomiquement fine. Inversement, un obstacle diffusif peut limiter le transfert malgré un débit conservé. Les concepts de perfusion et de diffusion doivent rester distincts.
Les hormones placentaires comprennent notamment hCG, progestérone, œstrogènes et hormone lactogène placentaire. Leurs origines et interactions évoluent ; la synthèse de certains produits implique une coopération entre placenta et compartiments fœtaux ou maternels. Le placenta n’est donc pas autonome pour toute réaction endocrinienne.
Membranes et liquide amniotique
L’amnios entoure une cavité qui s’agrandit et finit par occuper une grande partie de l’espace initial. Le liquide amniotique change de sources et de renouvellement au cours du développement. Plus tard, la production urinaire fœtale et les échanges liés à la déglutition contribuent fortement à sa dynamique. Un volume est un bilan entre entrées et sorties, pas une mesure d’un seul organe.
Le cordon ombilical contient habituellement deux artères et une veine dans un tissu conjonctif mucoïde, la gelée de Wharton, recouvert par l’amnios. Son organisation protège les vaisseaux contre certaines contraintes mécaniques. La vésicule vitelline et l’allantoïde ont des relations précoces avec cette région, sans persister comme grandes cavités fonctionnelles identiques à la fin.
Circulation fœtale
Le placenta assure l’oxygénation ; les poumons fœtaux ne réalisent pas l’hématose aérienne. Une partie du sang de la veine ombilicale traverse le foie, une autre emprunte le canal veineux vers la veine cave inférieure. Dans l’atrium droit, les flux ne se mélangent pas de façon parfaitement uniforme. Une partie du sang est dirigée vers l’atrium gauche par le foramen ovale, puis le ventricule gauche et l’aorte ascendante.
Le ventricule droit éjecte vers le tronc pulmonaire. La résistance pulmonaire élevée limite le débit pulmonaire, et une grande partie du sang rejoint l’aorte descendante par le canal artériel. Le retour vers le placenta emprunte les artères ombilicales. Les shunts réduisent donc le passage dans certains lits tout en permettant leur développement et leur perfusion partielle.
| Shunt | Connexion | Rôle principal |
|---|---|---|
| Canal veineux | Région ombilico-portale vers cave inférieure | Dériver une partie du débit hépatique |
| Foramen ovale | Atrium droit vers gauche | Court-circuit partiel du circuit pulmonaire |
| Canal artériel | Tronc pulmonaire vers aorte | Dériver une grande partie du débit pulmonaire |
Transition à la naissance
La ventilation pulmonaire et l’augmentation de l’oxygénation abaissent les résistances pulmonaires. Le clampage ou l’arrêt de la circulation ombilicale supprime un lit vasculaire à faible résistance et modifie les pressions systémiques. L’augmentation du retour veineux pulmonaire élève la pression atriale gauche, favorisant la fermeture fonctionnelle du foramen ovale.
Le canal artériel se contracte sous l’effet de changements d’oxygène et de médiateurs, puis peut subir une fermeture anatomique plus tardive. Le canal veineux et les vaisseaux ombilicaux cessent également leur fonction. Fermeture fonctionnelle et anatomique ne sont donc pas synonymes, et les délais diffèrent entre structures et individus.
- Ventilation et arrêt du circuit placentaire
- Résistances modifiées
- Débit pulmonaire accru
- Pression atriale gauche accrue
- Fermeture fonctionnelle du foramen ovale
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : les événements sont interdépendants et simultanés ; la fermeture anatomique ultérieure n’est pas représentée.
Figure intégrée : atlas 24-04
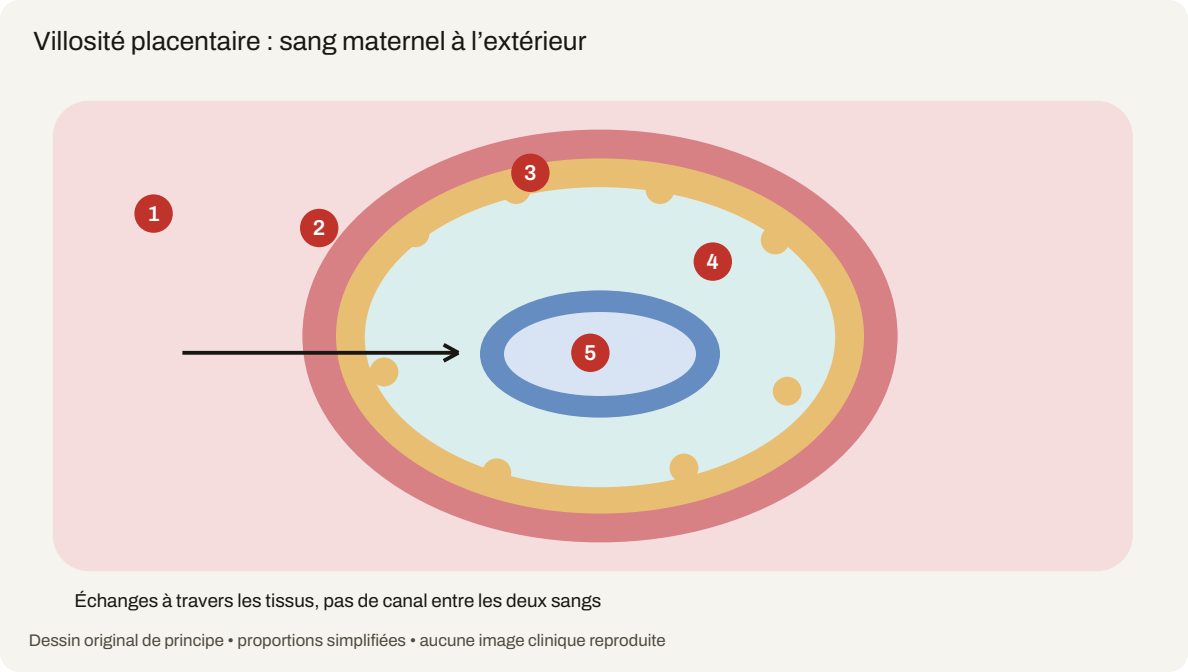
Légende du dessin
1. Sang maternel de l’espace intervilleux, extérieur à la villosité.
2. Syncytiotrophoblaste périphérique.
3. Cytotrophoblaste schématisé à un stade où il est bien représenté.
4. Stroma villositaire.
5. Capillaire fœtal, avec son endothélium et sa lumière.
Lecture et limites
Une villosité tertiaire contient une vascularisation fœtale. Le sang maternel baigne sa surface dans l’espace intervilleux ; il ne circule pas dans le capillaire fœtal. Les échanges ont lieu à travers des structures tissulaires. La flèche horizontale indique un trajet d’échange conceptuel, pas un vaisseau reliant directement les deux sangs.
La composition et l’épaisseur de la barrière évoluent avec la maturation. Le cytotrophoblaste devient notamment moins continu et les rapports entre capillaires et surface se modifient. Le dessin amplifie toutes les couches et convient à un modèle explicatif précoce ; il ne prétend pas représenter uniformément une villosité à terme.
Le mot barrière ne signifie pas imperméabilité absolue. Les gaz, nutriments, déchets et certaines autres substances traversent selon des mécanismes différents. La séparation des circulations ne permet donc pas d’affirmer que le fœtus est isolé de toute exposition maternelle. Pour le sens des vaisseaux ombilicaux, se reporter au cours : leur nom artère/veine dépend du sens par rapport au cœur fœtal, pas du degré d’oxygénation.
Le dessin figure également dans la planche autonome 24-02, partie 6, avec un exercice de restitution.
Un échange sans mélange des deux circulations
Problème. De l'oxygène passe du sang maternel au sang fœtal. Faut-il dessiner une flèche de sang traversant la paroi villositaire ?
Correction. Non. La flèche représente un transfert de molécules à travers les tissus séparant chambre intervilleuse et capillaires fœtaux. Le sang maternel reste dans son espace et le sang fœtal dans ses vaisseaux dans l'organisation normale. Pour un dessin lisible, utiliser des flèches pleines à l'intérieur des circuits pour les débits sanguins et des flèches fines transversales pour les échanges. Le sens de transfert dépend du soluté et des mécanismes ; le CO₂ suit globalement le sens opposé à l'O₂. Une interface efficace n'est pas pour autant une barrière absolue à toute substance ou tout agent infectieux.
Exercices progressifs
Exercice 1. Le sang maternel circule-t-il normalement dans les capillaires villositaires ?
Exercice 2. Quel vaisseau ombilical ramène le sang le plus oxygéné au fœtus ?
Exercice 3. Le foramen ovale est-il une anomalie pendant la vie fœtale ?
Exercice 4. Pourquoi les poumons reçoivent-ils peu de débit avant la naissance ?
Exercice 5. Une fermeture fonctionnelle prouve-t-elle une fusion anatomique immédiate ?
Corrections argumentées
Correction 1. Non. Ils contiennent du sang fœtal. Le sang maternel se trouve dans la chambre intervilleuse autour des villosités.
Correction 2. La veine ombilicale. La dénomination veine indique le retour vers le cœur fœtal et ne signifie pas sang pauvre en oxygène.
Correction 3. Non. C’est une communication physiologique participant à la circulation fœtale. Son devenir après naissance constitue une autre question.
Correction 4. La résistance vasculaire pulmonaire est élevée et le canal artériel offre une voie de dérivation. Le débit n’est cependant pas nul.
Correction 5. Non. Une modification des pressions peut arrêter le passage avant que les tissus se soudent ou que le conduit s’oblitère durablement.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 2 · Organogenèse cardiovasculaire, digestive et respiratoire
Prérequis et objectifs
Prérequis : feuillets, délimitation et circulation fœtale.
À la fin de ce cours : expliquer les changements de position et de connexions ; suivre l’intestin moyen ; distinguer ramification et maturation pulmonaire.
Convention et logique commune
Toutes les semaines sont postfécondation, sauf mention explicite SA ; leur équivalent conventionnel en SA ajoute environ deux semaines. L’organogenèse majeure se déroule surtout entre les troisième et huitième semaines, mais la maturation se poursuit bien au-delà. Un organe peut posséder son plan général sans être prêt à fonctionner comme chez le nouveau-né.
Les organes associent des interactions entre épithélium et mésenchyme. Bourgeonnement, fusion, cloisonnement et rotation ne sont pas des déplacements arbitraires : ils résultent de croissances différentielles et de contraintes spatiales. Pour comprendre une anomalie, on identifie l’étape qui a changé plutôt que d’imaginer un organe fini placé au mauvais endroit.
Tube cardiaque et boucle
Les ébauches cardiaques apparaissent dans le mésoderme cardiogène. Les replis rapprochent et réorganisent des structures qui forment un tube cardiaque. Celui-ci commence à présenter une activité contractile vers le début de la quatrième semaine, autour de J22-J23 dans les repères classiques. La circulation et la morphogenèse évoluent ensemble.
Le tube s’allonge et forme une boucle qui modifie les rapports entre régions atriales, ventriculaires et voie d’éjection. La boucle normale contribue à placer les futures cavités dans leur organisation générale. Le cloisonnement vient ensuite préciser les séparations ; il ne consiste pas à poser une paroi unique dans une sphère initiale.
Les coussins endocardiques participent à l’organisation du canal atrioventriculaire et de structures septales et valvulaires. Le septum interatrial se construit par plusieurs éléments et maintient une communication fœtale fonctionnelle. Le septum interventriculaire associe des contributions musculaires et membraneuses. Les voies d’éjection se séparent en aorte et tronc pulmonaire avec participation de plusieurs populations, dont des crêtes neurales cardiaques.
Une anomalie du cloisonnement peut donc résulter d’un défaut de migration, de croissance ou d’alignement. La présence d’une communication ne suffit pas à identifier son mécanisme. Certaines communications sont physiologiques au stade fœtal, d’autres reflètent une organisation anormale.
Intestin antérieur et glandes annexes
Le tube digestif primitif se régionalise en intestin antérieur, moyen et postérieur. L’épithélium est principalement endodermique ; les muscles et le tissu conjonctif proviennent surtout du mésoderme splanchnique ; l’innervation entérique implique les crêtes neurales. Les territoires vasculaires adultes gardent des relations avec cette régionalisation.
L’estomac se dilate et change d’orientation au cours de la croissance. Ces mouvements modifient les mésogastres et contribuent à l’organisation des espaces péritonéaux. Le foie apparaît comme un diverticule endodermique en interaction avec le mésenchyme voisin. Les hépatocytes et l’épithélium biliaire ont une contribution endodermique, tandis que les autres composantes hépatiques ont des origines différentes.
Le pancréas provient de bourgeons dorsal et ventral. Les transformations du duodénum rapprochent les bourgeons, qui fusionnent habituellement avec réorganisation de leurs canaux. Le bourgeon ventral contribue notamment au processus unciné et à une partie de la tête ; le dorsal fournit le reste principal. Une anomalie de rotation ou de fusion peut modifier les conduits sans que tout l’organe soit absent.
Intestin moyen : hernie et rotation
L’intestin moyen s’allonge rapidement autour de l’axe de l’artère mésentérique supérieure. Vers la sixième semaine postfécondation, une hernie ombilicale physiologique permet d’accueillir temporairement des anses dans la région du cordon. Le retour abdominal se déroule classiquement autour de la dixième semaine. La hernie physiologique transitoire ne doit pas être assimilée à toute protrusion persistante après la naissance.
Le modèle classique décrit une rotation totale d’environ 270° dans le sens antihoraire vue de face autour de l’artère mésentérique supérieure, répartie entre herniation et retour. La précision « vue de face » est indispensable : inverser le point de vue inverse le sens apparent. La fixation secondaire de certaines régions modifie ensuite les rapports péritonéaux.
| Événement | Conséquence |
|---|---|
| Allongement rapide | Formation d’anses |
| Herniation physiologique | Espace temporaire hors de la cavité abdominale |
| Rotation | Organisation relative grêle-côlon |
| Retour | Réintégration abdominale |
| Fixation | Certains rapports rétropéritonéaux secondaires |
Intestin postérieur et cloaque
La région caudale comporte initialement un cloaque commun. Des remaniements la séparent en territoires digestif et urogénital. Les membranes terminales et les contributions ectodermiques à certaines extrémités expliquent que « tout l’épithélium du tube digestif est endodermique » nécessite des exceptions. L’organisation finale demande également une continuité correcte des lumières et de leurs sphincters.
Arbre respiratoire et maturation
L’ébauche respiratoire apparaît ventralement à l’intestin antérieur pendant la quatrième semaine. Elle se sépare progressivement de la voie digestive et bourgeonne en arbre bronchique. L’épithélium respiratoire est endodermique ; cartilage, muscle lisse, tissu conjonctif et une grande partie du réseau vasculaire dépendent du mésoderme environnant.
La phase pseudoglandulaire, approximativement de la cinquième à la dix-septième semaine, organise une grande partie des conduits. La phase canaliculaire, environ seizième à vingt-cinquième semaine, améliore notamment la relation entre épithélium et capillaires. La phase sacculaire suit et prépare les unités terminales ; l’alvéolisation commence avant la naissance et se poursuit largement après. Les limites se chevauchent et varient selon les classifications.
Ces âges sont postfécondation dans ce cours ; les comparer à une source exprimée en SA exige conversion et vérification de sa convention. La présence de bronches ne garantit pas une capacité d’échange : finesse de la barrière, vascularisation et production de surfactant doivent aussi mûrir. Il n’existe donc pas une seule date universelle où le poumon deviendrait soudainement « terminé ».
- Bourgeonnement
- Ramification conductrice
- Rapprochement capillaire
- Sacs terminaux
- Alvéolisation prolongée
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : les phases se chevauchent ; il n’indique pas un seuil clinique individuel de viabilité.
Le sens d’une rotation dépend du point de vue
Exercice. Le modèle classique décrit une rotation intestinale totale d'environ 270° antihoraires autour de l'axe mésentérique supérieur, vue de face. Un dessin regardé depuis l'arrière montre-t-il le même sens apparent ?
Correction. Non : le même mouvement apparaît horaire vu depuis le côté opposé. Avant d'appliquer un angle, il faut placer l'axe, le regard de l'observateur et les branches de l'anse. L'angle décrit un modèle spatial global ; il ne signifie pas que toutes les anses intestinales tournent comme une roue rigide. Allongement, retour dans l'abdomen et fixation participent ensemble à l'organisation finale. Une inversion purement graphique de point de vue ne doit donc pas être interprétée comme une anomalie du développement.
Cloisonner le cœur sans supprimer immédiatement toutes les communications
La boucle cardiaque modifie les positions relatives des régions du tube, alors que le cloisonnement organise progressivement des cavités et des voies d'éjection. Ces processus ne sont pas synonymes. Une flexion du tube ne produit pas à elle seule un septum étanche ; une cloison ne suffit pas à expliquer tous les rapports spatiaux.
La communication interatriale fœtale est organisée pour permettre un passage préférentiel de droite à gauche dans les conditions de pression fœtales. La fermeture fonctionnelle à la naissance dépend de nouveaux gradients et de l'application de structures préexistantes, avant toute fusion anatomique durable. Le développement construit donc une communication utile, pas uniquement une ouverture inachevée par accident.
Rotation intestinale : fixer l'axe et le regard
Le modèle classique décrit une rotation totale d'environ 270 degrés de l'intestin moyen autour de l'axe mésentérique supérieur, dans le sens antihoraire vu de face. Ce total résume plusieurs étapes, notamment hernie physiologique et réintégration ; il ne correspond pas à une rotation simultanée d'un bloc rigide adulte. Les anses s'allongent et changent de rapports pendant ces déplacements.
Une fixation secondaire peut appliquer un organe contre la paroi postérieure en remaniant son méso. C'est le principe utile pour comprendre certains territoires secondairement rétropéritonéaux, différent d'une position rétropéritonéale primitive. La disposition adulte du péritoine conserve ainsi la trace de mouvements et d'accolements, sans permettre de lire directement tous leurs jours d'apparition.
Épithélium et mésenchyme dans l'arbre respiratoire
La ramification des bourgeons respiratoires implique des interactions entre l'épithélium endodermique et le mésenchyme environnant. La production de branches, la différenciation de cellules sécrétrices et la constitution d'une interface alvéolocapillaire fonctionnelle sont des étapes différentes. Un arbre ramifié n'est pas automatiquement capable d'échanges gazeux efficaces.
Exercice. Un modèle possède des voies aériennes nombreuses mais une barrière terminale épaisse et peu de capillaires proches. Pourquoi le nombre de branches ne suffit-il pas à conclure à une bonne diffusion ?
Correction. La diffusion dépend notamment de la surface réellement mise en relation, de l'épaisseur de la barrière et du gradient de pression partielle. Un réseau sans interface fine et perfusée ne remplit pas la même fonction. Morphogenèse des conduits et maturation des unités d'échange doivent être évaluées séparément.
Exercices progressifs
Exercice 1. Pourquoi la boucle cardiaque et le cloisonnement sont-ils deux notions distinctes ?
Exercice 2. Quels deux bourgeons construisent le pancréas ?
Exercice 3. Préciser sens, angle et point de vue de la rotation intestinale classique.
Exercice 4. Une hernie d’anses vers la sixième semaine postfécondation est-elle forcément anormale ?
Exercice 5. Pourquoi des conduits respiratoires présents ne suffisent-ils pas à assurer l’hématose ?
Corrections argumentées
Correction 1. La boucle organise les rapports spatiaux du tube et de ses régions ; le cloisonnement sépare ensuite cavités et voies. Une anomalie peut toucher l’un, l’autre ou leur coordination.
Correction 2. Les bourgeons dorsal et ventral, rapprochés par les transformations du duodénum puis habituellement fusionnés.
Correction 3. Environ 270° antihoraires vus de face, autour de l’artère mésentérique supérieure, dans le modèle pédagogique classique.
Correction 4. Non. Elle correspond à une étape physiologique transitoire liée à l’allongement intestinal. Persistance et contexte ultérieur changent l’interprétation.
Correction 5. Il faut une surface terminale suffisante, une barrière mince, une perfusion adaptée et une stabilité assurée notamment par le surfactant. La ramification n’est qu’une composante.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
- Ressource vérifiée : approfondissement 08-02, partie 2, 1
- Ressource vérifiée : approfondissement 08-02, partie 2, 2
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 3 · Développement urinaire et différenciation sexuelle
Prérequis et objectifs
Prérequis : mésoderme intermédiaire, épithéliums et hormones.
À la fin de ce cours : attribuer les structures rénales ; expliquer l’induction réciproque ; distinguer détermination gonadique et différenciation des voies.
Trois organisations rénales successives
Les structures urinaires dérivent largement du mésoderme intermédiaire. Le pronéphros humain est rudimentaire et transitoire ; le mésonéphros forme un système temporaire ; le métanéphros constitue le rein définitif. Ces termes désignent des étapes et organisations différentes, non trois reins adultes superposés.
Le métanéphros débute autour de la cinquième semaine postfécondation, approximativement sept SA. Son développement repose sur l’interaction entre bourgeon urétéral et mésenchyme métanéphrogène. Une structure seule ne suffit pas : leurs signaux réciproques permettent ramification, survie, différenciation et connexion.
Deux origines complémentaires dans le rein
Le bourgeon urétéral émerge du conduit mésonéphrotique. Il donne l’uretère, le pelvis rénal, les calices et le réseau collecteur. Le mésenchyme métanéphrogène produit les épithéliums des néphrons, depuis la capsule glomérulaire jusqu’aux segments tubulaires distaux qui se raccordent au système collecteur. Le réseau vasculaire et les cellules de soutien ajoutent d’autres contributions.
La transition mésenchymo-épithéliale produit des vésicules rénales puis des formes plus complexes. Les précurseurs acquièrent une polarité et une lumière. La connexion entre tubule et collecteur est essentielle : fabriquer deux tubes sans les raccorder ne crée pas une voie d’excrétion continue. La formation d’un glomérule exige aussi l’entrée et l’organisation du réseau capillaire.
| Structure | Origine principale |
|---|---|
| Uretère et pelvis | Bourgeon urétéral |
| Calices et collecteurs | Ramifications du bourgeon urétéral |
| Épithéliums du néphron | Mésenchyme métanéphrogène |
| Une grande partie de l’épithélium vésical | Sinus urogénital endodermique |
Position et vascularisation
Les reins se trouvent initialement dans une région plus caudale puis acquièrent une position relative plus craniale au cours de la croissance. Cette ascension apparente s’accompagne d’une rotation et de changements d’apports artériels. Des branches peuvent persister, expliquant certaines artères rénales supplémentaires. Il ne s’agit pas d’un rein qui grimpe activement le long d’une artère fixe.
Une fusion ou un obstacle modifie cette trajectoire et les rapports. Les variations vasculaires ont un intérêt anatomique majeur, mais toute variante ne constitue pas automatiquement une maladie. Le raisonnement embryologique fournit un mécanisme plausible ; il ne remplace pas l’observation de l’anatomie individuelle.
La vessie se développe principalement à partir du sinus urogénital. Les relations avec les conduits mésonéphrotiques et les uretères se réorganisent. Le trigone possède une histoire embryologique particulière avec incorporation de territoires canalaires, puis revêtement remanié ; un tableau simpliste attribuant chaque cellule adulte à une origine unique immuable serait excessif.
Gonade indifférenciée et cellules germinales
La crête gonadique forme un environnement somatique dans lequel arrivent les cellules germinales primordiales. Celles-ci ne sont pas produites localement par chaque futur follicule ou tube séminifère ; elles suivent un trajet de migration avant colonisation. La gonade associe donc populations germinales et somatiques d’histoires différentes.
La différenciation testiculaire implique notamment un réseau comprenant SRY et SOX9 dans le développement typique associé à un chromosome Y fonctionnel. La différenciation ovarienne repose également sur des programmes actifs, avec des voies telles que WNT4, RSPO1 et FOXL2. Il serait inexact de décrire l’ovaire comme un résultat purement passif par absence de toute instruction.
Les cellules de Sertoli participent à l’organisation des cordons testiculaires et produisent l’hormone antimüllérienne. Les cellules de Leydig produisent des androgènes. Ces deux fonctions orientent des cibles distinctes ; la présence d’une gonade testiculaire n’implique pas que toutes les réponses tissulaires aux hormones sont intactes.
Deux systèmes de conduits
Au stade indifférencié coexistent conduits mésonéphrotiques et paramésonéphrotiques. Dans le développement masculin typique, les androgènes soutiennent des dérivés mésonéphrotiques tels qu’épididyme, conduit déférent, vésicules séminales et conduits éjaculateurs. L’AMH entraîne la régression des conduits paramésonéphrotiques selon un programme spécifique.
Dans le développement féminin typique, les conduits paramésonéphrotiques contribuent aux trompes, à l’utérus et à une partie du vagin ; le sinus urogénital participe également à la région vaginale. Les conduits mésonéphrotiques régressent largement avec possibilité de vestiges. Les contributions exactes de l’épithélium vaginal sont plus complexes que le modèle classique d’une simple fraction supérieure et inférieure ; il convient de suivre la convention du cours local lorsqu’une fraction est exigée.
Organes génitaux externes
Le tubercule génital, les plis urogénitaux et les bourrelets labioscrotaux constituent des ébauches communes. Leur transformation dépend notamment de la signalisation androgénique et, dans certains tissus, de la dihydrotestostérone issue de la testostérone. La production d’hormone et la réponse par son récepteur sont deux conditions distinctes.
L’organisation chromosomique, gonadique, hormonale et anatomique correspond à plusieurs niveaux biologiques. Une variation à un niveau ne permet pas de déduire automatiquement tous les autres. Les développements sexuels présentent des variations humaines ; leur description exige une terminologie précise et respectueuse, sans réduire une personne à un schéma de mécanisme.
- Information génétique
- Différenciation gonadique
- Production hormonale
- Réponse des tissus
- Anatomie des voies et organes externes
Repères complémentaires, sans ordre ni lien de cause.
Limite du schéma : les relations comportent des rétroactions et des variations ; il ne représente pas une détermination exhaustive de l’identité d’une personne.
Assembler un néphron et son système collecteur
Question. Pour faire circuler l'ultrafiltrat du corpuscule au pelvis rénal, suffit-il qu'un bourgeon urétéral se ramifie ?
Correction. Non. Le mésenchyme métanéphrogène doit produire l'épithélium des néphrons et établir une continuité avec le système collecteur issu du bourgeon. Le trajet associe espace urinaire, tubule proximal, anse, segment distal, puis système collecteur et voies excrétrices. Une ramification abondante ne prouve donc ni présence de néphrons matures ni filtration. Inversement, une différenciation néphronique isolée sans drainage ne suffit pas à construire un rein fonctionnel. L'induction réciproque explique que l'atteinte précoce d'un partenaire puisse perturber l'autre ; ce n'est pas une relation entre deux organes déjà achevés.
Induction réciproque : de la condensation au néphron polarisé
Le mésenchyme proche des extrémités du bourgeon se condense, s'épithélialise et acquiert une lumière. Les états de vésicule rénale, de corps en virgule puis en S décrivent cette évolution morphologique. Une extrémité organise le corpuscule en relation avec des cellules vasculaires ; l'autre établit la continuité avec le système collecteur. Cette suite relie identité, forme et connexion, plutôt qu'une simple multiplication de cellules identiques.
Une inhibition de ramification peut réduire le nombre de niches d'induction ; une altération de réponse mésenchymateuse peut laisser une ébauche urétérale sans production correcte de néphrons. Les effets peuvent ensuite se renforcer mutuellement. Une corrélation entre deux structures absentes ne permet pas d'attribuer l'événement initial sans observation plus précoce ou perturbation ciblée.
Trois signaux sexuels à ne pas fusionner
L'AMH agit sur le devenir paramésonéphrotique ; la testostérone soutient notamment les dérivés mésonéphrotiques ; la conversion locale en DHT joue un rôle majeur pour plusieurs caractères des organes génitaux externes. La présence de l'un de ces signaux ne démontre pas que les deux autres étapes fonctionnent. Chaque cible possède une fenêtre de compétence, des récepteurs et une machinerie de réponse.
Le modèle explique qu'un défaut de conversion locale puisse affecter certains territoires en épargnant d'autres réponses androgéniques. Il faut distinguer production hormonale, transport, conversion et sensibilité. L'anatomie finale ne peut pas être réduite à la mesure d'une seule hormone à un instant tardif, après les périodes décisives.
Exercice. Dans une expérience conceptuelle, l'AMH est absente mais la production de testostérone et les récepteurs androgéniques sont conservés. Peut-on conclure que les deux systèmes de conduits régressent ?
Correction. Non. L'absence d'AMH retire un signal de régression paramésonéphrotique, tandis que le signal androgénique peut soutenir des dérivés mésonéphrotiques. Il faut raisonner par cible plutôt que remplacer toute la différenciation par une seule étiquette. L'expérience est un modèle de mécanisme, sans attribution diagnostique à une personne.
Exercices progressifs
Exercice 1. Le bourgeon urétéral forme-t-il le tubule proximal ?
Exercice 2. Pourquoi parler d’induction réciproque ?
Exercice 3. Quel mécanisme explique certaines artères rénales supplémentaires ?
Exercice 4. Distinguer cibles de l’AMH et de la testostérone dans le développement des conduits.
Exercice 5. Une hormone produite normalement garantit-elle une réponse tissulaire normale ?
Corrections argumentées
Correction 1. Non. L’épithélium du tubule proximal provient du mésenchyme métanéphrogène. Le bourgeon produit notamment le système collecteur et les voies excrétrices correspondantes.
Correction 2. Parce que le bourgeon et le mésenchyme échangent des signaux nécessaires à leur développement mutuel. Aucun ne construit seul un rein fonctionnel complet.
Correction 3. La persistance de branches parmi les apports successifs associés au changement de position relative du rein.
Correction 4. L’AMH favorise la régression paramésonéphrotique ; la testostérone soutient les dérivés mésonéphrotiques dans le développement masculin typique. Les organes externes impliquent en plus des mécanismes locaux, dont la DHT.
Correction 5. Non. Il faut un récepteur fonctionnel, des relais et parfois une conversion locale. Une production intacte n’exclut pas une résistance tissulaire.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
- OpenStax : 27 3 development of the male and female reproductive systems
- UNSW Embryology : Embryonic Development
Recoupements de l’approfondissement v0.4
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 4 · Membres, face, datation et vulnérabilité du développement
Prérequis et objectifs
Prérequis : feuillets, crêtes neurales et chronologie postfécondation.
À la fin de ce cours : suivre les axes du membre et les bourgeons faciaux ; convertir les datations ; raisonner sur fenêtres et gémellité.
Construire un membre selon trois axes
Les bourgeons des membres apparaissent pendant la quatrième semaine postfécondation, les supérieurs précédant légèrement les inférieurs. Ils associent un mésenchyme recouvert d’ectoderme. Une grande partie du squelette et du tissu conjonctif provient du mésoderme latéral ; les cellules musculaires migrent depuis des territoires somitiques.
L’axe proximodistal distingue racine du membre et extrémités ; l’axe antéropostérieur distingue notamment côtés préaxial et postaxial ; l’axe dorsoventral distingue dos et face ventrale. La crête ectodermique apicale participe au maintien de la croissance distale via des signaux tels que les FGF. Une région postérieure de signalisation impliquant SHH contribue à l’organisation antéropostérieure. Des interactions ectoderme-mésenchyme règlent l’identité dorsoventrale.
Ces centres n’agissent pas indépendamment. La durée d’exposition, la compétence et les rétroactions modifient les résultats. Associer un signal à un axe est un point de départ, pas une explication complète de chaque os. La segmentation des rayons digitaux et la régression du tissu interdigital impliquent notamment une mort cellulaire régulée. L’apoptose peut donc construire une forme normale.
Arcs pharyngés et face
Les arcs pharyngés sont des territoires comprenant une composante mésenchymateuse, des éléments cartilagineux, musculaires, vasculaires et un nerf associé. Leur revêtement externe est ectodermique et leur revêtement interne endodermique. Les crêtes neurales contribuent largement au mésenchyme craniofacial, sans fournir tous les muscles ni tous les vaisseaux.
Les poches pharyngées sont internes, les sillons externes. Le premier arc est associé au trijumeau, le deuxième au facial, le troisième au glossopharyngien, et les quatrième et sixième à des branches du vague. Les correspondances portent sur des ensembles de dérivés ; elles ne signifient pas que tout territoire adulte traversé par le nerf provient d’un seul arc.
Le premier sillon participe au méat acoustique externe ; la première poche participe à la caisse du tympan et à la trompe auditive. Les troisième et quatrième poches contribuent notamment à des structures thymiques et parathyroïdiennes selon leur territoire. Les déplacements expliquent que des organes adultes se trouvent loin de leur point initial.
Bourgeons faciaux et palais
La face se construit par croissance et rapprochement de bourgeons frontonasal, maxillaires et mandibulaires, avec des bourgeons nasaux médiaux et latéraux issus de remaniements autour des placodes nasales. La réunion des structures dépend de leur croissance, de leur position et du remodelage de l’interface épithéliale.
Le palais primaire est lié au segment intermaxillaire. Le palais secondaire se forme à partir de lames palatines issues des processus maxillaires. Leur élévation au-dessus de la langue, leur rapprochement et leur fusion avec les autres éléments se déroulent principalement entre les semaines six et douze postfécondation dans les repères classiques, avec des étapes successives.
Une fente peut provenir d’un défaut de croissance, d’une perturbation de position ou d’une fusion insuffisante. La même apparence globale n’impose donc pas une cause unique. Il faut préciser localisation, étendue et structures associées avant de raisonner sur le mécanisme.
Datation : âge, stade et mesure
L’âge postfécondation commence à la fécondation ; l’âge en SA commence aux dernières règles. Le décalage conventionnel est de deux semaines, mais la durée folliculaire peut varier. Une datation échographique utilise des mesures et modèles spécifiques ; elle ne revient pas à observer directement l’instant de la fécondation.
Les stades de Carnegie classent les embryons selon des caractères morphologiques, et pas seulement selon une longueur ou un nombre de jours. Deux embryons du même âge estimé peuvent ne pas montrer exactement les mêmes caractères. Les premières huit semaines postfécondation correspondent à la période embryonnaire ; la période fœtale commence ensuite, avec croissance et maturation importantes.
| Expression | Point de départ | Utilité |
|---|---|---|
| Jour postfécondation | Fécondation | Séquence embryologique |
| Semaine d’aménorrhée | Dernières règles | Convention clinique |
| Stade morphologique | Caractères anatomiques | Comparaison du développement |
Gémellité : distinguer origine et enveloppes
Les jumeaux dizygotes proviennent de deux fécondations ; ils sont classiquement bichoriaux et biamniotiques, même si les placentas peuvent se juxtaposer ou fusionner macroscopiquement. Les jumeaux monozygotes proviennent d’un même zygote et peuvent présenter plusieurs organisations choriales et amniotiques.
Le modèle pédagogique relie une séparation plus précoce à deux chorions et deux amnios, une séparation après individualisation trophoblastique à un chorion avec deux amnios, et une séparation plus tardive à un chorion et un amnios. Ces correspondances temporelles sont des modèles explicatifs, non des horloges directement observées pour chaque grossesse. Une date exacte de séparation ne peut être reconstruite avec certitude à partir des seules enveloppes.
La chorionicité et l’amnionicité décrivent donc des structures, tandis que la zygosité décrit l’origine génétique. Deux placentas visibles ne prouvent pas à eux seuls une dizygosité ; un placenta macroscopique unique peut résulter de juxtaposition. Il faut garder ces axes de description séparés.
Fenêtres de vulnérabilité
Une perturbation précoce peut affecter survie, implantation ou grandes organisations ; pendant l’organogenèse, elle peut modifier une structure en formation ; plus tard, elle peut altérer croissance ou maturation fonctionnelle. La formule « tout ou rien » des tout premiers stades est une simplification utile mais non une garantie absolue applicable à toute exposition.
La conséquence dépend de l’agent, de la dose, de la durée, du moment et de la susceptibilité. Une association temporelle ne démontre pas seule la causalité. Ce cours expose une logique du développement et ne permet pas d’évaluer un risque individuel sans données spécifiques.
- Stade réel
- Processus actif
- Territoire exposé
- Dose et durée
- Réponse et compensation
Repères complémentaires, sans ordre ni lien de cause.
Limite du schéma : les facteurs se combinent ; aucun ne permet isolément de prédire toute conséquence.
Comparer un âge conventionnel et un stade
Cas. Un document mentionne 35 jours postfécondation ; un autre indique 7 SA. Sont-ils nécessairement contradictoires ?
Correction. Dans la convention qui ajoute 14 jours, 35 + 14 = 49 jours, soit 7 SA révolues. Les deux peuvent donc exprimer le même âge. En revanche, « au cours de la septième semaine » et « 7 semaines révolues » ne sont pas des expressions interchangeables. Un stade morphologique repose sur plusieurs caractères de développement, et pas uniquement sur une conversion arithmétique. La variabilité de l'ovulation et du développement interdit d'utiliser ce calcul comme datation individuelle certaine. Pour comparer des images, relever d'abord convention de temps, semaines révolues ou en cours, puis caractères morphologiques.
Exercices progressifs
Exercice 1. Quels axes structurent le développement d’un membre ?
Exercice 2. Poche et sillon pharyngés se trouvent-ils du même côté ?
Exercice 3. Convertir approximativement huit semaines postfécondation en SA.
Exercice 4. Deux amnios impliquent-ils deux zygotes ?
Exercice 5. Une exposition pendant l’organogenèse produit-elle obligatoirement une malformation ?
Corrections argumentées
Correction 1. Proximodistal, antéropostérieur et dorsoventral. Les centres de signalisation interagissent pour attribuer position et identité.
Correction 2. Non. Les poches sont des évaginations internes endodermiques ; les sillons sont externes ectodermiques.
Correction 3. Environ dix SA selon la convention d’ovulation au quatorzième jour. Cette conversion ne remplace pas une datation individuelle.
Correction 4. Non. Des jumeaux monozygotes peuvent être biamniotiques. Amnionicité et zygosité sont des descriptions différentes.
Correction 5. Non. L’effet dépend de la nature de l’exposition, de sa dose, de la fenêtre, du tissu et de la susceptibilité. La chronologie seule ne prouve ni dommage ni innocuité.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 5 · Développement céphalique : appareil pharyngé, face, palais et migrations
Objectifs et construction d'une carte
La tête n'est pas produite par un seul feuillet. Neuroectoderme, ectoderme de surface, endoderme, mésoderme et populations issues des crêtes neurales contribuent à des structures voisines. Le terme mésenchyme décrit un état et une organisation cellulaire ; dans la région céphalique, il ne signifie pas automatiquement origine mésodermique. L'ectomésenchyme dérivé des crêtes neurales fournit une contribution majeure à de nombreux tissus conjonctifs et squelettiques de la face.
L'objectif est d'associer chaque transformation à un territoire, un déplacement et un devenir. Les noms adultes peuvent masquer les relations initiales : une glande située près de la thyroïde n'est pas nécessairement issue de son ébauche médiane. On distinguera particulièrement arc, poche et sillon pharyngés, puis palais primaire et secondaire. Le cours 08-02, partie 4 fournit la vue d'ensemble ; le présent chapitre développe les rapports et les migrations. L'odontogenèse proprement dite reste détaillée en 18-01, partie 4.
Arcs, poches et sillons : trois objets différents
Les arcs pharyngés sont des masses mésenchymateuses disposées latéralement autour de l'intestin pharyngien. Leur revêtement externe est ectodermique et leur revêtement interne endodermique. Les sillons sont les dépressions externes entre arcs ; les poches sont des évaginations internes de l'endoderme. Un numéro identique ne rend pas les trois objets équivalents. Un cartilage d'arc n'est donc pas un dérivé de poche simplement parce qu'ils portent le même numéro.
Chaque arc s'organise en association avec un contingent musculaire, un nerf et un trajet artériel ; des contributions squelettiques se différencient également. La numérotation classique comporte les arcs 1, 2, 3, 4 et 6, le cinquième étant absent ou rudimentaire selon la description. Il ne faut pas inventer un cinquième ensemble adulte symétrique pour compléter une série numérique.
Les artères des arcs se remanient profondément et de manière asymétrique. Leur présence embryonnaire transitoire ne signifie pas que six paires d'arcs artériels persistent simultanément chez l'adulte. La reconstruction doit séparer apparition, régression et incorporation. Les dessins schématiques superposent souvent des étapes pour enseigner les devenirs ; leur légende doit préciser cette limite.
Arcs et identité neuromusculaire
Le premier arc participe aux territoires maxillaire et mandibulaire. Sa musculature comprend notamment les muscles masticateurs, associés à la branche mandibulaire du trijumeau. L'os mandibulaire ne résulte pas simplement d'une transformation complète du cartilage de Meckel en os : une importante ossification se produit dans le mésenchyme voisin. Cette distinction est un exemple majeur du piège « cartilage embryonnaire proche = moule intégral de l'os adulte ».
Le deuxième arc est associé au nerf facial et à des muscles de la mimique, ainsi qu'à certains autres muscles. Le troisième est associé au glossopharyngien et au stylopharyngien. Les quatrième et sixième arcs sont associés à des branches du vague ; les rapports entre muscles laryngés et nerfs laryngés supérieur ou récurrent s'interprètent dans cette organisation. Une liste de nerfs sans leurs muscles et leurs trajets est moins robuste qu'une carte de dérivés.
- Premier arc : muscles masticateurs, branche mandibulaire du trijumeau
- Deuxième arc : muscles de la mimique, nerf facial
- Troisième arc : stylopharyngien, glossopharyngien
- Quatrième et sixième arcs : branches du vague
Repères complémentaires, sans ordre ni lien de cause.
La croissance et les déplacements des structures peuvent éloigner un muscle de son territoire initial tout en conservant son innervation. Un nerf qui traverse une région ne prouve pas que toutes les structures de cette région proviennent de son arc. L'identité de la fibre et le territoire auquel elle est destinée doivent être distingués du simple voisinage anatomique.
Repères discriminants par arc
- Premier arc : marteau et enclume parmi les repères squelettiques classiques ; muscles de la mastication, mylohyoïdien et ventre antérieur du digastrique parmi les repères musculaires ; commande motrice par V3. Le cartilage de Meckel sert de repère mais n'est pas le moule intégral de la mandibule.
- Deuxième arc : étrier, processus styloïde et petite corne de l'os hyoïde parmi les dérivés classiquement associés ; muscles de la mimique, stylohyoïdien et ventre postérieur du digastrique ; nerf facial VII. La base de l'étrier et certaines interfaces possèdent des contributions complexes : la liste est une carte de référence, pas une filiation exclusive de chaque cellule.
- Troisième arc : grande corne et partie inférieure du corps de l'hyoïde ; muscle stylopharyngien ; nerf glossopharyngien IX. Ne pas étendre cette association à tous les muscles pharyngés.
- Quatrième arc : repère musculaire majeur, cricothyroïdien, commandé par la branche externe du nerf laryngé supérieur issu du X. Des muscles pharyngés relèvent aussi de ce territoire. Les contributions cartilagineuses laryngées sont remaniées et mixtes.
- Sixième arc : muscles intrinsèques du larynx, à l'exception du cricothyroïdien, associés au nerf laryngé récurrent issu du X. Opposer ce trajet à celui du quatrième arc est plus discriminant qu'une formule globale « larynx = vague ».
Contrôle de carte. Le cricothyroïdien et le cricoaryténoïdien postérieur ont-ils la même branche motrice ? Réponse. Non : branche externe du laryngé supérieur pour le premier, récurrent pour le second. L'arc et la branche nerveuse distinguent deux muscles d'une même région adulte. Ces repères n'attribuent pas chaque cartilage adulte entier à une seule lignée sans nuance.
Poches, sillons et devenir cervical
La première poche contribue à la cavité tympanique et à la trompe auditive ; le premier sillon contribue au conduit auditif externe. Les deux espaces se trouvent de part et d'autre de la membrane tympanique, qui a des contributions multiples. La première poche ne forme donc pas toute l'oreille, et l'oreille interne ne se déduit pas de ce simple face-à-face : son ébauche implique la placode otique.
La deuxième poche contribue à l'épithélium du territoire tonsillaire palatin. Le tissu lymphoïde qui le colonise a une autre histoire cellulaire ; dériver un épithélium d'une poche ne signifie pas que tous les lymphocytes adultes en dérivent. Cette distinction entre trame ou revêtement et populations immigrantes est valable pour plusieurs organes lymphoïdes.
La troisième poche donne notamment les ébauches thymiques et des parathyroïdes inférieures ; la quatrième contribue aux parathyroïdes supérieures. Les ébauches associées au thymus descendent davantage, d'où l'ordre adulte qui semble inverser l'ordre numérique. Le deuxième arc recouvre progressivement les sillons plus caudaux, formant transitoirement un sinus cervical qui disparaît normalement. Le maintien d'une cavité embryonnaire et une nouvelle cavitation sont deux mécanismes différents.
- Première poche : cavité tympanique et trompe auditive
- Deuxième poche : épithélium du territoire tonsillaire palatin
- Troisième poche : ébauches thymiques, parathyroïdes inférieures
- Quatrième poche : parathyroïdes supérieures
Repères complémentaires, sans ordre ni lien de cause.
Thyroïde, thymus et parathyroïdes : suivre les migrations
L'ébauche médiane thyroïdienne apparaît dans le plancher pharyngien puis acquiert une position cervicale antérieure. Son lien transitoire avec le territoire lingual est classiquement décrit par le trajet thyréoglosse. Ce trajet explique l'intérêt d'un repère médian dans une reconstruction embryologique, sans permettre de diagnostiquer toute masse médiane à partir de sa localisation seule.
Le thymus rejoint un territoire plus caudal, tandis que les parathyroïdes restent associées à la région thyroïdienne. La variabilité de migration contribue à des positions différentes. Il faut distinguer un organe qui se déplace, un tissu qui prolifère et une région dont les proportions changent autour de lui. Le mot « migration » sert parfois de raccourci à plusieurs processus de croissance relative.
L'origine des cellules parafolliculaires thyroïdiennes est un point où les présentations historiques et les données modernes ne sont pas toujours identiques selon l'espèce et le type de démonstration. Pour le socle de ce cours, on retient l'intégration du territoire ultimobranchial et on évite d'affirmer une filiation de toutes les cellules humaines sur la seule base d'un schéma ancien. Une question exigeant une convention particulière doit être confrontée au support local.
Bourgeons faciaux et reliefs nasaux
La face se construit autour du stomodéum à partir d'un territoire frontonasal et de bourgeons maxillaires et mandibulaires pairs. Des épaississements ectodermiques nasaux s'invaginent et contribuent à individualiser des reliefs nasaux médiaux et latéraux. Les modifications de volume et de position rapprochent les territoires. Un rapprochement visible ne prouve pas immédiatement une continuité tissulaire fonctionnelle : les interfaces épithéliales doivent se remanier.
Les bourgeons mandibulaires contribuent à la région inférieure ; les maxillaires participent aux régions latérales de la face supérieure. Les reliefs nasaux médiaux contribuent au segment intermaxillaire, en relation avec le philtrum et le palais primaire. Les reliefs nasaux latéraux participent aux ailes du nez. La lèvre supérieure est donc une construction composite, et non un produit uniforme d'un seul bourgeon.
Les termes « fusion » et « coalescence » peuvent varier selon le mécanisme et les auteurs. Pour raisonner, on doit préciser quels territoires sont rapprochés, s'il existe une couture épithéliale et comment est obtenue la continuité mésenchymateuse. Le dessin final ne fournit pas à lui seul le détail cellulaire de la disparition de cette interface.
Palais primaire, palais secondaire et cloisonnement
Le palais primaire est lié au segment intermaxillaire. Le palais secondaire se développe à partir de processus palatins issus des bourgeons maxillaires. Ceux-ci changent d'orientation en relation avec la croissance des structures voisines, notamment la mandibule et la langue, puis se rapprochent et établissent une continuité sur la ligne médiane. Le septum nasal participe au cloisonnement supérieur.
- Processus palatins issus des bourgeons maxillaires
- Changement d'orientation des processus
- Rapprochement des processus palatins
- Continuité sur la ligne médiane
Schéma de principe : lire les conditions et les limites dans le texte.
Le foramen incisif constitue un repère adulte utile entre les territoires primaire et secondaire. Il ne faut pas confondre l'ordre de formation et l'étendue adulte : un territoire précoce n'occupe pas nécessairement la plus grande surface finale. Le palais dur et le palais mou se différencient dans le prolongement de cette organisation, avec des composantes squelettiques et musculaires distinctes.
Un défaut de rapprochement, d'élévation ou de continuité ne correspond pas au même mécanisme. Une langue maintenue dans une position empêchant le rapprochement peut perturber la fermeture sans anomalie initiale identique de tous les processus palatins. Ces enchaînements montrent pourquoi plusieurs mécanismes peuvent conduire à une configuration finale ressemblante. Le cours décrit cette logique et ne propose pas de prise en charge clinique.
Langue et relations entre origine et innervation
La langue résulte de plusieurs territoires du plancher pharyngien et de contributions musculaires provenant principalement de myotomes occipitaux. L'innervation motrice majoritairement hypoglosse ne doit donc pas être assimilée à l'innervation sensitive de la muqueuse. De plus, sensibilité générale et goût empruntent des voies distinctes sur certains territoires.
Pour les deux tiers antérieurs, la sensibilité générale emprunte surtout le nerf lingual, branche de V3 ; le goût emprunte principalement des fibres de la corde du tympan issues du VII. Ces fibres rejoignent un trajet commun périphérique sans acquérir la même origine centrale. Le tiers postérieur dépend largement du IX pour ces deux modalités ; la région épiglottique implique le X. Les limites sont une organisation générale, pas une grille centimétrique immuable.
Le nerf qui accompagne une modalité sensorielle et le nerf qui commande un muscle sont deux informations différentes. Une carte embryologique aide à mémoriser ces relations, mais elle ne dispense pas de connaître l'anatomie des trajets et les communications périphériques. Le regroupement de fibres dans un nerf nommé n'annule pas leur identité fonctionnelle.
Datation et lecture d'une anomalie de forme
La période embryonnaire comporte des événements qui se chevauchent. Pour interpréter un prélèvement, on combine plusieurs caractères morphologiques plutôt que d'assigner un jour exact à un seul relief. Les jours après fécondation, les semaines d'aménorrhée et les stades morphologiques ne sont pas trois noms d'une même mesure. Une conversion conventionnelle d'environ deux semaines entre âge postfécondation et âge obstétrical ne transforme pas la morphologie en chronomètre parfait.
Une perturbation peut toucher prolifération, migration, survie, différenciation ou interactions épithélio-mésenchymateuses. Une absence apparente de structure doit être distinguée d'une position inhabituelle ou d'un retard de maturation. Le mécanisme recherché doit rester au niveau que les observations permettent. Affirmer une cause unique à partir d'une seule image finale dépasserait les informations disponibles.
Exercices discriminants
Exercice 1. Décrire les revêtements d'un arc et distinguer poche et sillon.
Exercice 2. Pourquoi les parathyroïdes issues de la troisième poche se trouvent-elles classiquement plus bas que celles de la quatrième ?
Exercice 3. L'endoderme de la poche tonsillaire produit-il directement tous les lymphocytes de la tonsille ?
Exercice 4. Le cartilage de Meckel est-il un modèle intégral de la mandibule ossifiée ?
Exercice 5. Placer le foramen incisif dans le raisonnement sur les palais primaire et secondaire.
Exercice 6. Une anomalie de position de la langue peut-elle modifier la fermeture du palais sans supprimer initialement les processus palatins ?
Exercice 7. Les fibres gustatives de la corde du tympan deviennent-elles des fibres trigéminales lorsqu'elles rejoignent le nerf lingual ?
Exercice 8. Une pièce est étiquetée « huit semaines » sans convention. Peut-on comparer directement son stade à une table après fécondation ?
Corrections développées
Correction 1. L'extérieur est ectodermique et l'intérieur endodermique ; le cœur comporte du mésenchyme d'origines multiples. Une poche est une évagination interne endodermique, un sillon une dépression externe ectodermique. Le numéro ne remplace pas la nature tissulaire.
Correction 2. Leur association au trajet descendant du thymus entraîne un déplacement caudal plus important. La position adulte résulte de trajectoires différentes et ne conserve pas nécessairement l'ordre initial des numéros. C'est une relation de développement, pas une règle de classement par hauteur d'origine.
Correction 3. Non. La contribution concerne notamment l'épithélium du territoire. Les cellules hématopoïétiques colonisent cet environnement. Confondre le devenir de la trame avec celui des cellules immigrantes attribuerait à tort une origine endodermique aux lymphocytes.
Correction 4. Non. Une importante composante mandibulaire se forme par ossification dans le mésenchyme voisin. La proximité avec un cartilage ne suffit pas à établir que tout l'os résulte d'une ossification endochondrale de ce cartilage.
Correction 5. Il fournit un repère entre le territoire primaire antérieur et le palais secondaire plus étendu. Le repère aide à reconstruire les contributions ; il ne transforme pas tous les reliefs adultes voisins en dérivés du même bourgeon.
Correction 6. Oui. Les mouvements relatifs et l'espace disponible interviennent dans leur élévation et leur rapprochement. Un obstacle mécanique secondaire et un défaut intrinsèque du processus peuvent donc converger vers un défaut de continuité, sans avoir le même événement initial.
Correction 7. Non. Elles conservent leur origine et leur modalité. Le nerf lingual sert de trajet périphérique partagé. L'analogie utile est celle de voies distinctes empruntant momentanément une même gaine anatomique.
Correction 8. Non. Il faut préciser s'il s'agit d'un âge postfécondation ou de semaines d'aménorrhée. La différence conventionnelle modifie fortement l'interprétation à ces stades. La morphologie peut ensuite aider à vérifier la cohérence, sans donner une date exacte à elle seule.
Sources et limites
- UNSW Embryology : Pharyngeal arches, carte des dérivés
- Duke University : Craniofacial Development
- Embryology.ch : Face and upper foregut
- Embryology.ch : Parathyroid glands and ultimopharyngeal bodies
Consultation documentaire le 2 octobre 2026. Les tableaux classiques de dérivés sont des modèles pédagogiques ; les filiations cellulaires fines et les extrapolations entre espèces demandent des sources expérimentales propres. Aucune validation humaine exhaustive ou correspondance intégrale avec Moodle n'est revendiquée.
Ce cours, en cartes de révision
Lire un cours ne suffit pas à le retenir. Dépose ce cours, ou le poly de ta fac, dans Ossik : il en sort des cartes sourcées à la page, qu’il te ressort au bon moment.