Ce cours réunit 6 parties : 1. Histologie cardiovasculaire et respiratoire ; 2. Histologie digestive, foie et pancréas ; 3. Histologie du rein, des glandes endocrines et des téguments ; 4. Histologie endocrine et gonadique : architectures, cellules et cycles ; 5. Peau et annexes : barrière, renouvellement et interfaces ; 6. Organes des sens : architectures de l'œil, de l'oreille et des interfaces chimiques.
Partie 1 · Histologie cardiovasculaire et respiratoire
Prérequis et objectifs
Prérequis : épithéliums, muscle lisse et tissu conjonctif.
À la fin de ce cours : identifier un vaisseau par sa paroi ; suivre les transitions bronchiques ; reconnaître la barrière alvéolocapillaire.
Vaisseaux : rapport entre lumière et paroi
La paroi d’un vaisseau comprend classiquement intima, média et adventice. L’intima comporte l’endothélium et son support ; la média contient surtout des cellules musculaires lisses et des éléments élastiques ; l’adventice est conjonctive et relie le vaisseau à son environnement. Dans les plus petits vaisseaux, ces couches ne sont pas toutes individualisables.
Une artère élastique possède de nombreuses lames élastiques dans la média, permettant de stocker une partie de l’énergie de l’éjection et de la restituer entre deux battements. Une artère musculaire possède une média riche en muscle lisse ; sa limitante élastique interne peut être bien visible. Une artériole possède une petite lumière et une ou quelques couches musculaires selon son calibre. Elle constitue un site majeur de réglage des résistances.
Les veines ont souvent une lumière plus large et irrégulière et une paroi relativement moins épaisse que les artères comparables. L’adventice peut y être importante. Certaines présentent des valvules, replis de l’intima orientant le retour. Une lumière affaissée évoque une veine mais n’est pas un critère absolu : pression, fixation et coupe modifient la forme.
Les vasa vasorum nourrissent les couches externes des grosses parois vasculaires. La diffusion depuis la lumière ne suffit pas pour toutes les épaisseurs. La présence de petits vaisseaux dans l’adventice d’une grosse artère ne doit pas être confondue avec plusieurs lumières principales.
Capillaires et lymphatiques
Un capillaire comporte essentiellement un endothélium, une lame basale et des cellules de soutien variables, notamment des péricytes. Les capillaires continus, fenestrés et sinusoïdes diffèrent par leurs ouvertures et leur support. Cette architecture adapte les échanges à l’organe : barrière stricte dans certains territoires, passage facilité de solutés dans d’autres.
Les lymphatiques initiaux ont une paroi très mince et une organisation facilitant l’entrée du liquide interstitiel. Leur lumière ne contient normalement pas le même flux d’hématies que les vaisseaux sanguins. Toutefois, l’absence d’hématies sur une coupe ne suffit pas à prouver qu’un conduit est lymphatique. Des marqueurs et le contexte peuvent être nécessaires.
| Structure | Critères utiles | Fonction dominante |
|---|---|---|
| Artère élastique | Média à lames élastiques nombreuses | Amortir la pulsatilité |
| Artère musculaire | Média musculaire épaisse | Distribuer et régler le débit |
| Veine | Large lumière, média relativement faible | Retour et capacité |
| Capillaire | Paroi endothéliale très fine | Échanges |
Paroi cardiaque
L’endocarde tapisse les cavités et se continue avec l’endothélium vasculaire. Le myocarde contient les cardiomyocytes et un réseau capillaire dense. L’épicarde correspond au feuillet viscéral du péricarde séreux, associé à du tissu conjonctif et parfois adipeux où cheminent des vaisseaux coronaires.
Les fibres de Purkinje sont des cardiomyocytes spécialisés dans la conduction, souvent plus pâles et riches en glycogène, situés dans des régions sous-endocardiques. Leur aspect diffère des neurones : le système de conduction est principalement musculaire spécialisé. Une coloration adaptée et la localisation renforcent l’identification.
Trachée, bronches et bronchioles
La trachée présente un épithélium respiratoire pseudostratifié cilié avec cellules sécrétrices de mucus, un chorion, des glandes sous-muqueuses et du cartilage hyalin. Les cils déplacent le mucus chargé de particules. La paroi postérieure comporte du muscle lisse trachéal entre les extrémités des arcs cartilagineux.
Dans les bronches intrapulmonaires, le cartilage devient organisé en plaques et la musculature lisse est bien représentée. Des glandes restent présentes. À mesure que le calibre diminue, l’épithélium s’abaisse et la proportion des types cellulaires change. Les bronchioles ne possèdent ni plaques cartilagineuses ni glandes sous-muqueuses dans leur paroi. Leur muscle lisse joue un rôle important dans le contrôle du calibre.
Les cellules club, notamment bronchiolaires, participent à la sécrétion, à la protection et au renouvellement épithélial. Une bronchiole terminale appartient encore à la zone conductrice. Une bronchiole respiratoire présente des alvéoles s’ouvrant dans sa paroi, marquant le début de la zone d’échanges. La transition ne se définit donc pas seulement par un diamètre.
Alvéoles et septa
Les pneumocytes de type I sont très aplatis et couvrent la majorité de la surface alvéolaire. Les pneumocytes de type II sont plus cubiques, produisent le surfactant et participent au renouvellement de l’épithélium. Une cellule numériquement moins couvrante peut donc être essentielle à la stabilité mécanique de toute la surface.
Les macrophages alvéolaires se trouvent dans les lumières et les septa, où ils participent à l’élimination des particules. Les septa contiennent capillaires, fibres et interstitium. La barrière air-sang la plus fine associe film de surface, cytoplasme du pneumocyte I, lames basales souvent étroitement associées et endothélium capillaire. L’hématie reste dans le capillaire ; elle n’est pas directement au contact de l’air.
Le surfactant diminue la tension superficielle et contribue à limiter le collapsus, surtout à faible volume. Il est stocké dans des corps lamellaires des pneumocytes II avant sécrétion. Les fibres élastiques du septum participent au recul du poumon. Une grande surface ne suffit donc pas : finesse de barrière, stabilité et perfusion doivent coexister.
- Lumière alvéolaire
- Pneumocyte I
- Interface basale mince
- Endothélium capillaire
- Sang capillaire
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il montre la région mince d’échange, pas toute l’épaisseur variable du septum ni les autres cellules présentes.
Démarche d’identification
Une lumière épithéliale avec cartilage et glandes évoque une voie aérienne proximale. L’absence de cartilage ne suffit pas si le fragment de paroi est incomplet ; on cherche aussi l’épithélium, le muscle et le contexte pulmonaire. Une bronchiole respiratoire se distingue par les alvéoles de sa paroi. Un capillaire proche d’une alvéole doit être reconnu par l’endothélium et les éléments sanguins, non par sa seule petite taille.
Une coupe de poumon insuffisamment gonflé montre des septa apparemment rapprochés ; une surdistension ou une préparation différente modifie l’espace aérien. L’interprétation morphométrique exige donc une préparation standardisée. Une impression de « paroi épaisse » sur une coupe isolée peut résulter d’un plan oblique ou d’un état de gonflage différent.
Figure intégrée : atlas 24-05
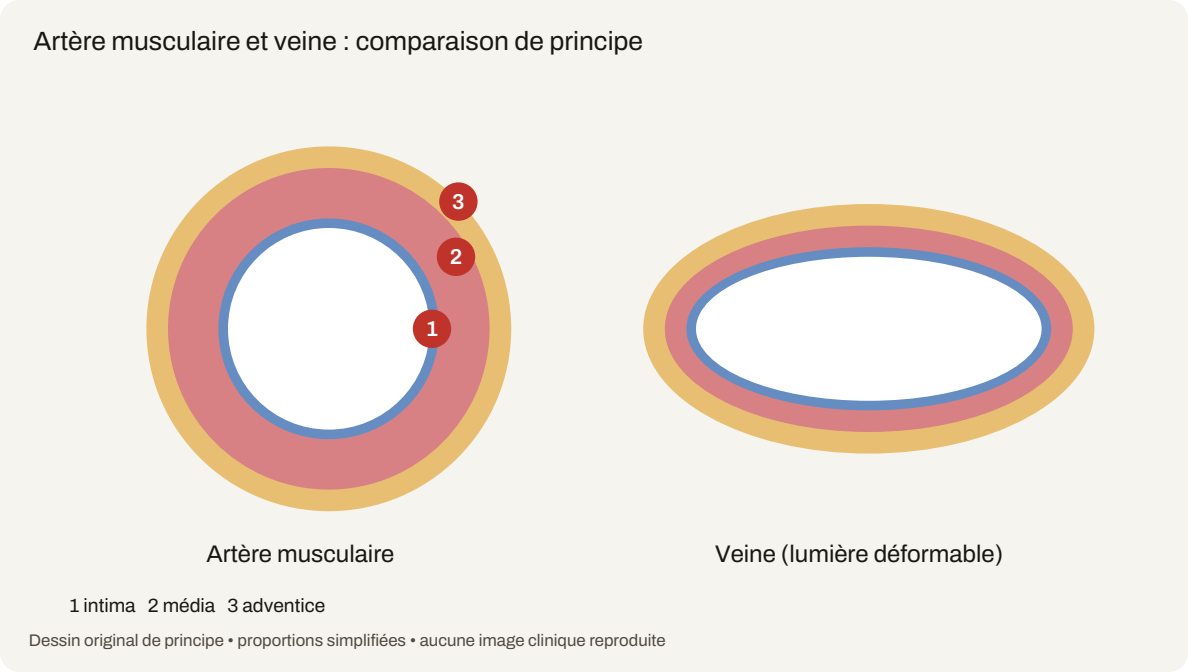
Légende du dessin
1. Intima au contact de la lumière.
2. Média : couche relativement développée dans l’artère musculaire représentée.
3. Adventice périphérique.
Lecture et limites
Les deux dessins comparent des organisations de principe, pas deux vaisseaux de diamètre exactement identique prélevés chez une personne. L’artère musculaire présente une média relativement épaisse. La veine possède une lumière plus déformable et une organisation différente des tuniques. Une coupe réelle peut être aplatie ou oblique ; la forme seule n’identifie pas toujours le vaisseau.
L’intima comprend l’endothélium et des structures associées ; le trait bleu amplifié ne représente pas une épaisseur réelle. La média et l’adventice varient selon le calibre et le territoire. Une artère élastique ne doit pas être décrite exactement comme l’artère musculaire du dessin.
Les valvules de certaines veines sont des replis orientés dans le sens longitudinal. Elles ne sont pas dessinées comme une cloison transversale permanente. Il ne faut pas en conclure que toutes les veines possèdent des valvules, ni que toutes les artères transportent du sang riche en oxygène. Les circuits pulmonaires rappellent la différence entre sens de circulation et oxygénation.
Le dessin figure également dans la planche autonome 24-01, partie 3, avec un exercice de restitution.
Identifier une petite voie aérienne avec des critères convergents
Observation. Un conduit possède un épithélium, du muscle lisse et aucun cartilage visible. Est-ce nécessairement une bronchiole ?
Correction. Non : un petit champ peut manquer une plaque cartilagineuse de bronche. Il faut suivre une portion suffisante de circonférence, rechercher des glandes sous-muqueuses et situer le conduit dans le parenchyme. Une bronchiole terminale conserve une paroi de conduction continue ; des alvéoles ouvrant directement dans sa paroi orientent vers une bronchiole respiratoire. Une alvéole simplement voisine n'est pas une ouverture pariétale. La distinction repose donc sur une continuité anatomique, et pas uniquement sur la proximité de zones aérées. Les limites de résolution doivent être indiquées quand l'image ne permet pas de suivre cette continuité.
Exercices progressifs
Exercice 1. Quel critère différencie surtout artère élastique et musculaire ?
Exercice 2. L’absence d’hématies suffit-elle à identifier un lymphatique ?
Exercice 3. Quels deux éléments pariétaux disparaissent dans les bronchioles ?
Exercice 4. Quelle cellule produit le surfactant et laquelle couvre le plus de surface ?
Exercice 5. Une petite voie aérienne possède des alvéoles dans sa paroi. À quelle catégorie appartient-elle ?
Corrections argumentées
Correction 1. La composition de la média : nombreuses lames élastiques dans la première, prédominance de muscle lisse dans la seconde. La forme de la lumière seule est moins fiable.
Correction 2. Non. Un vaisseau sanguin peut être vide dans le plan observé. Architecture, contexte et marqueurs peuvent être requis.
Correction 3. Le cartilage et les glandes sous-muqueuses. Le muscle lisse demeure, et l’épithélium se modifie progressivement.
Correction 4. Le pneumocyte II produit le surfactant ; le pneumocyte I couvre la majorité de la surface d’échange. Nombre de cellules et surface occupée ne sont pas synonymes.
Correction 5. Une bronchiole respiratoire est compatible avec cette description. Une bronchiole terminale n’a pas d’alvéoles ouvrant directement dans sa paroi.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 2 · Histologie digestive, foie et pancréas
Prérequis et objectifs
Prérequis : épithéliums glandulaires, muscle lisse et organisation vasculaire.
À la fin de ce cours : lire les couches digestives ; distinguer segments ; relier organisation hépatique et pancréatique aux flux.
Le plan commun du tube digestif
La muqueuse comprend l’épithélium, le chorion et la musculaire muqueuse. La sous-muqueuse contient tissu conjonctif, vaisseaux et plexus nerveux ; elle peut contenir des glandes selon le segment. La musculeuse externe possède généralement une couche circulaire interne et une longitudinale externe, entre lesquelles se situe le plexus myentérique. La séreuse comporte un mésothélium ; l’adventice fixe l’organe sans ce revêtement séreux.
Ces couches ne sont pas identiques partout. L’estomac ajoute une organisation musculaire plus complexe ; l’œsophage comporte des proportions variables de muscle strié et lisse selon le niveau. La présence d’un muscle ne permet donc pas de choisir immédiatement entre musculaire muqueuse et musculeuse externe : leur position relative est décisive.
Œsophage et estomac
L’œsophage possède un épithélium pavimenteux stratifié non kératinisé adapté aux frottements. Des glandes sous-muqueuses lubrifient le passage. La transition vers l’estomac change brutalement de type épithélial. Une coupe de jonction doit être interprétée en suivant la continuité, car les deux épithéliums peuvent être présents dans le même prélèvement.
L’estomac possède un épithélium cylindrique simple sécrétant du mucus, des fovéoles et des glandes. Dans le fundus et le corps, les cellules pariétales sont volumineuses et éosinophiles ; elles produisent notamment l’acide chlorhydrique et le facteur intrinsèque. Les cellules principales, plus basophiles à leur base, produisent des précurseurs enzymatiques comme le pepsinogène. Des cellules endocrines disséminées complètent l’organisation.
Dans la région pylorique, les fovéoles sont relativement profondes et les glandes ont une composition différente. Il faut donc distinguer région et organe : toutes les glandes gastriques ne présentent pas les mêmes proportions cellulaires. Le mucus de surface et les bicarbonates contribuent à protéger la muqueuse ; l’acidité luminale ne signifie pas que les cellules vivent sans système de barrière.
Intestin grêle et côlon
Les plis circulaires incluent muqueuse et sous-muqueuse ; les villosités sont des projections de muqueuse ; les microvillosités sont des expansions de chaque entérocyte. Ces trois échelles augmentent la surface mais ne sont pas des synonymes. Les cryptes descendent entre les villosités et abritent notamment des populations de renouvellement.
Les entérocytes portent un plateau strié ; les cellules caliciformes sécrètent du mucus. Les cellules de Paneth, au fond de nombreuses cryptes du grêle, possèdent des granules éosinophiles contenant des molécules de défense. Des cellules endocrines et d’autres populations spécialisées participent à la régulation et à la surveillance.
Le duodénum se reconnaît notamment à ses glandes sous-muqueuses de Brunner. Le jéjunum présente souvent des plis et villosités développés sans ces glandes caractéristiques. L’iléon peut montrer de grands agrégats lymphoïdes, les plaques de Peyer. Aucun de ces signes n’est présent avec la même visibilité dans toute coupe ; il faut combiner architecture et contexte.
Le côlon ne possède normalement pas de villosités. Il présente de longues cryptes et de nombreuses cellules caliciformes. Une crypte coupée transversalement peut ressembler à une petite glande ronde ; les coupes longitudinales révèlent leur organisation parallèle. L’appendice associe une organisation colique à une abondance de tissu lymphoïde, selon l’âge et l’état.
| Segment | Indice majeur | Piège |
|---|---|---|
| Œsophage | Pavimenteux stratifié non kératinisé | Confondre avec toute autre muqueuse de protection |
| Estomac fundique | Fovéoles et glandes à cellules pariétales/principales | Chercher des villosités |
| Duodénum | Glandes de Brunner | Examiner une coupe sans sous-muqueuse |
| Iléon | Plaques lymphoïdes fréquentes | Les considérer obligatoires dans chaque champ |
| Côlon | Cryptes sans villosités | Confondre profils de cryptes et villosités coupées |
Foie : deux flux en sens opposés
Le lobule classique est organisé autour d’une veine centrale. Des travées hépatocytaires sont séparées par des sinusoïdes. Aux espaces portes se trouvent branches de veine porte, d’artère hépatique et de conduit biliaire, accompagnées d’autres éléments comme lymphatiques et nerfs. La « triade » décrit trois structures majeures, pas nécessairement seulement trois profils visibles.
Le sang portal et artériel se mélange dans les sinusoïdes puis gagne les veines centrales et les veines hépatiques. La bile est produite par les hépatocytes et circule dans des canalicules entre cellules vers les conduits biliaires des espaces portes. Le flux biliaire est donc globalement opposé au flux sanguin à l’échelle du lobule classique.
L’espace de Disse se situe entre endothélium sinusoïdal et hépatocytes. Il facilite les échanges ; des cellules étoilées y stockent notamment la vitamine A et peuvent contribuer à la fibrose lorsqu’elles sont activées. Les cellules de Kupffer sont des macrophages associés aux sinusoïdes. Elles ne doivent pas être confondues avec les cellules étoilées.
L’acinus hépatique décrit des territoires selon leur position par rapport aux apports sanguins. Les zones proches de l’arrivée reçoivent en premier les substrats et l’oxygène ; les zones plus distales ont un environnement différent. Cette organisation aide à comprendre une vulnérabilité zonale, sans signifier que tous les métabolismes ont une frontière géométrique parfaitement nette.
- Branches porte et artérielle
- Sinusoïdes
- Veine centrale
- Veines hépatiques
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il ne représente pas la bile, dont le trajet va vers les espaces portes, ni les variations microvasculaires.
Pancréas exocrine et endocrine
Les acini exocrines contiennent des cellules à base basophile et pôle apical granulaire. Les cellules centroacinaires marquent le début de petits conduits ; elles constituent un indice utile pour distinguer le pancréas de certaines glandes salivaires. Le système canalaire participe à la sécrétion hydroélectrolytique et bicarbonatée, tandis que les acini produisent des enzymes ou précurseurs.
Les îlots endocrines apparaissent plus pâles en coloration standard et sont très vascularisés. Les différents types de cellules hormonales ne sont pas tous distinguables fiablement sur H&E ; un immunomarquage est nécessaire pour attribuer une cellule à l’insuline ou au glucagon. Le contraste pâle/foncé identifie des territoires, pas une hormone précise.
Pour identifier un organe digestif, on combine donc plan de paroi, type de surface, forme des glandes et organisation vasculaire. Le fonctionnement découle de cette architecture : barrière et absorption à la muqueuse, propulsion par les muscles, échanges métaboliques au foie, séparation endocrine/exocrine au pancréas.
Figure intégrée : atlas 24-02
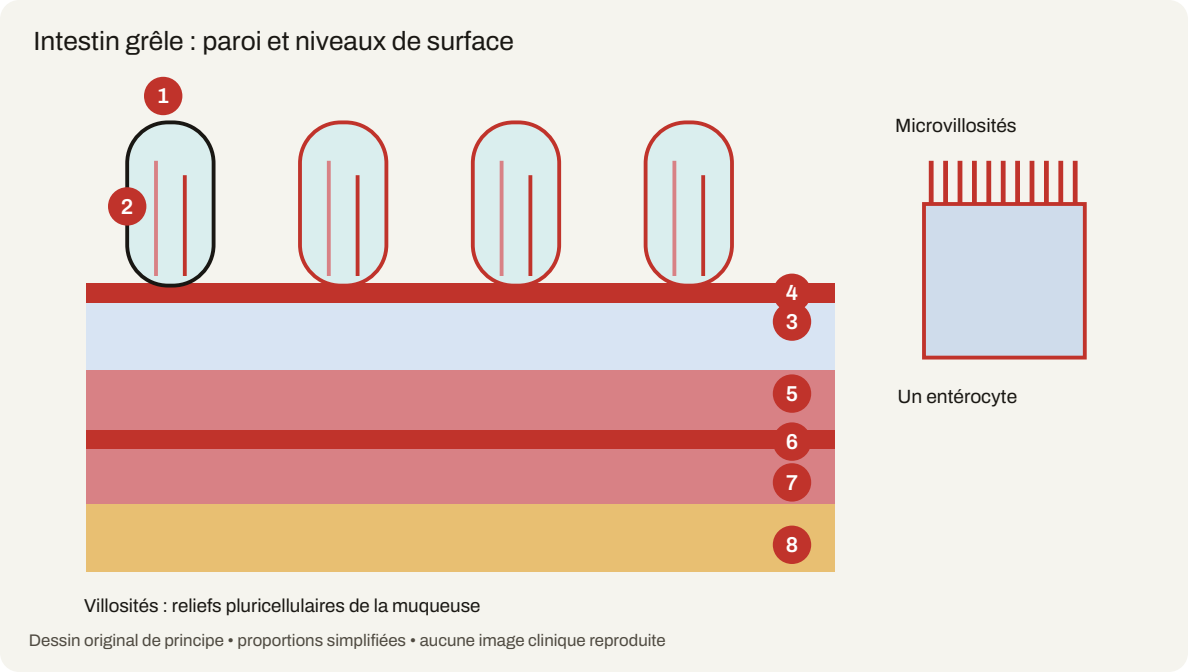
Légende du dessin
1. Lumière intestinale au-dessus des villosités.
2. Villosité : relief pluricellulaire de la muqueuse, avec axe conjonctif.
3. Sous-muqueuse.
4. Musculaire muqueuse, limite profonde de la muqueuse.
5. Couche circulaire interne de la musculeuse.
6. Région du plexus myentérique entre les couches musculaires.
7. Couche longitudinale externe.
8. Revêtement externe schématisé en séreuse.
Lecture et limites
La villosité ne correspond pas à une seule cellule. Son épithélium entoure un axe de chorion qui contient notamment des voies vasculaires et lymphatiques. Les deux traits dans l’axe des villosités indiquent seulement leur présence ; ils ne reproduisent pas leur réseau complet. Les cryptes, situées entre les villosités, ne sont pas détaillées sur ce dessin et doivent être ajoutées à la lecture du cours.
L’encart de droite représente un entérocyte dont la surface apicale porte des microvillosités. Le changement d’échelle est majeur : une microvillosité est un prolongement cellulaire, tandis qu’une villosité est un relief tissulaire. Un pli circulaire est encore un autre niveau d’organisation, impliquant muqueuse et sous-muqueuse ; il n’est pas dessiné ici.
La musculaire muqueuse ne se confond pas avec la musculeuse responsable d’une grande partie des mouvements de paroi. La position du plexus myentérique permet de le distinguer du plexus sous-muqueux, non représenté. Les couches sont aplaties pour être comparables et leurs épaisseurs ne sont pas à l’échelle.
Le dessin figure également dans la planche autonome 24-01, partie 2, avec un exercice de restitution.
Plis, villosités et microvillosités : dessiner à trois échelles
Consigne. Associer chaque structure à son contenu : pli circulaire, villosité intestinale, microvillosité entérocytaire. Où placer la sous-muqueuse et les capillaires ?
Correction. Le pli circulaire contient muqueuse et sous-muqueuse. La villosité est une projection de muqueuse : son axe de chorion contient notamment des capillaires et un vaisseau lymphatique central. La microvillosité est une expansion membranaire apicale d'un seul entérocyte, soutenue par l'actine ; elle ne contient aucun capillaire. Les trois niveaux augmentent la surface à des échelles différentes. Dessiner un vaisseau dans une microvillosité confond donc organe, tissu et cellule. Une bordure striée en microscopie optique correspond à l'ensemble des microvillosités, dont chaque élément n'est généralement pas résolu séparément.
Exercices progressifs
Exercice 1. Distinguer pli circulaire, villosité et microvillosité.
Exercice 2. Quel signe soutient une identification duodénale ?
Exercice 3. La bile rejoint-elle la veine centrale ?
Exercice 4. Distinguer cellule de Kupffer et cellule étoilée hépatique.
Exercice 5. Peut-on identifier toutes les cellules bêta pancréatiques sur H&E ?
Corrections argumentées
Correction 1. Le pli inclut muqueuse et sous-muqueuse ; la villosité est une projection de muqueuse avec chorion ; la microvillosité est une expansion apicale d’une cellule. Il s’agit de trois niveaux d’organisation.
Correction 2. La présence de glandes de Brunner dans la sous-muqueuse, associée à la muqueuse du grêle. Une coupe ne montrant pas la sous-muqueuse ne permet pas d’exclure le duodénum.
Correction 3. Non. Elle circule dans les canalicules vers les conduits des espaces portes, alors que le sang gagne la veine centrale. Les deux circuits doivent être suivis séparément.
Correction 4. Kupffer est un macrophage sinusoïdal ; la cellule étoilée se situe dans l’espace de Disse, stocke notamment la vitamine A et peut produire de la matrice lors de son activation.
Correction 5. Non. L’îlot peut être reconnu, mais l’identité hormonale précise demande un marquage adapté. La coloration standard ne suffit pas à toutes les attributions cellulaires.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 3 · Histologie du rein, des glandes endocrines et des téguments
Prérequis et objectifs
Prérequis : épithéliums, capillaires et glandes.
À la fin de ce cours : reconnaître les segments rénaux ; distinguer glandes endocrines ; appliquer une grille morphologique à la peau et aux gonades.
Rein : lire cortex et médulla
Le cortex contient des corpuscules rénaux et des tubules contournés ; la médulla contient surtout des segments droits, des anses et des conduits collecteurs. Les rayons médullaires se projettent dans le cortex sans contenir eux-mêmes de corpuscules. Une zone striée dans le cortex ne doit donc pas être automatiquement appelée médulla entière.
Le corpuscule rénal associe un glomérule capillaire et la capsule de Bowman. Le feuillet pariétal est pavimenteux simple ; le feuillet viscéral est constitué de podocytes. L’espace urinaire reçoit l’ultrafiltrat. Au pôle vasculaire entrent et sortent les artérioles ; au pôle urinaire débute le tubule proximal.
La barrière de filtration comprend endothélium fenestré, membrane basale glomérulaire et fentes entre prolongements podocytaires munies d’un diaphragme. Les cellules mésangiales soutiennent les anses et participent à la régulation et au nettoyage de la matrice. Elles ne forment pas le revêtement épithélial principal de l’espace urinaire.
Segments tubulaires
Le tubule proximal possède des cellules cubiques riches en mitochondries et une bordure en brosse apicale, souvent responsable d’une lumière peu nette. Le tubule distal présente généralement une lumière plus claire, sans bordure en brosse développée. Ces critères dépendent de la coupe ; un profil isolé mal conservé ne permet pas toujours une attribution certaine.
Les segments fins de l’anse sont pavimenteux simples. Les conduits collecteurs possèdent des limites cellulaires souvent plus visibles et un épithélium devenant plus haut vers la papille. Ils comprennent notamment des cellules principales et intercalaires, mais leur distinction fine peut demander des méthodes supplémentaires.
L’appareil juxtaglomérulaire associe macula densa, cellules granulaires et mésangium extraglomérulaire. La macula densa correspond à une zone spécialisée du segment distal au voisinage du pôle vasculaire. Les cellules granulaires, principalement dans la paroi de l’artériole afférente, sécrètent la rénine. Cette proximité spatiale permet des communications entre contenu tubulaire et circulation glomérulaire.
| Structure | Indice de coupe | Fonction liée |
|---|---|---|
| Corpuscule | Peloton capillaire dans une capsule | Filtration |
| Proximal | Bordure en brosse, cytoplasme abondant | Réabsorption importante |
| Distal | Lumière plus nette, peu de microvillosités | Ajustement des transports |
| Collecteur | Limites cellulaires visibles | Réglage final eau, ions et acidité |
Thyroïde, parathyroïde et surrénale
La thyroïde est organisée en follicules entourés d’un épithélium simple et remplis de colloïde. Le colloïde contient notamment de la thyroglobuline, support de stockage de précurseurs hormonaux. Une lumière remplie de substance protéique entourée de cellules endocrines est une organisation particulière : la plupart des glandes endocrines ne stockent pas leurs produits dans un grand espace folliculaire extracellulaire.
La hauteur des cellules folliculaires varie avec l’activité. Les cellules parafolliculaires produisent la calcitonine et ne sont pas toujours identifiables sans marquage. Les parathyroïdes s’organisent plutôt en cordons cellulaires avec capillaires et tissu adipeux variable. La présence de follicules colloïdaux aide donc à distinguer thyroïde et parathyroïde.
La surrénale comporte un cortex et une médulla. Le cortex se subdivise en zones glomérulée, fasciculée et réticulée, dont l’organisation des cellules diffère. La fasciculée contient souvent des cellules claires riches en lipides extraits lors de la préparation. La médulla contient des cellules chromaffines et une vascularisation importante. Une cellule claire n’est pas vide : son aspect peut refléter un contenu lipidique dissous.
Peau et annexes
L’épiderme est un épithélium pavimenteux stratifié kératinisé. Les couches basale, épineuse, granuleuse et cornée traduisent la différenciation des kératinocytes. Une couche claire est particulièrement identifiable dans la peau épaisse. Le derme contient tissu conjonctif, vaisseaux, nerfs et annexes ; l’hypoderme est riche en tissu adipeux selon la région.
La peau épaisse des régions palmaires et plantaires possède une couche cornée importante et ne présente pas de follicules pileux. La peau fine peut contenir follicules et glandes sébacées. « Épaisse » qualifie ici surtout l’organisation épidermique typique, pas nécessairement toute l’épaisseur jusqu’aux plans profonds.
Les glandes sébacées se reconnaissent à leurs cellules chargées en lipides et à leur sécrétion holocrine. Les glandes sudoripares présentent des portions sécrétrices contournées et des conduits. Les conduits peuvent avoir un épithélium cubique stratifié plus sombre. Un ensemble de profils tubulaires voisins peut appartenir à une même glande pelotonnée.
Gonades : reconnaître une organisation dynamique
Le testicule contient des tubes séminifères avec cellules germinales et cellules de Sertoli. Les cellules germinales progressent globalement de la base vers la lumière au cours de leur maturation, mais toutes les générations ne sont pas identiques dans chaque coupe. Les cellules de Leydig se situent dans l’interstitium et produisent des androgènes. Les jonctions entre Sertoli contribuent à la barrière hématotesticulaire.
L’ovaire possède des follicules à différents stades. Un follicule primordial associe un ovocyte et une couche de cellules aplaties. Les follicules en croissance développent des cellules de granulosa, une zone pellucide et, plus tard, une cavité antrale et des thèques. Le corps jaune résulte de la transformation du follicule après ovulation. Il ne faut pas confondre un follicule atrétique avec une simple étape obligatoire de croissance normale vers l’ovulation : de nombreux follicules régressent.
L’endomètre comporte un épithélium et des glandes dans un stroma dont l’aspect varie au cours du cycle. Une interprétation exige de relier morphologie glandulaire, stroma et contexte temporel. Une seule glande contournée ne suffit pas à dater précisément un cycle biologique.
- Tubes rénaux et glomérules
- Follicules thyroïdiens
- Cordons surrénaliens
- Annexes cutanées
- Follicules ou tubes gonadiques
Repères complémentaires, sans ordre ni lien de cause.
Limite du schéma : les ressemblances géométriques imposent de rechercher le tissu environnant ; un cercle épithélial n’a pas une identité unique.
Comparaison pratique
Le follicule thyroïdien contient une lumière colloïdale ; un follicule ovarien contient un ovocyte entouré de cellules, puis éventuellement un antrum. Le tube séminifère montre plusieurs générations germinales ; le tubule rénal possède un épithélium de transport. Ces différences de contenu et de relation aux vaisseaux permettent de dépasser une reconnaissance superficielle fondée sur la forme ronde.
Figure intégrée : atlas 24-01
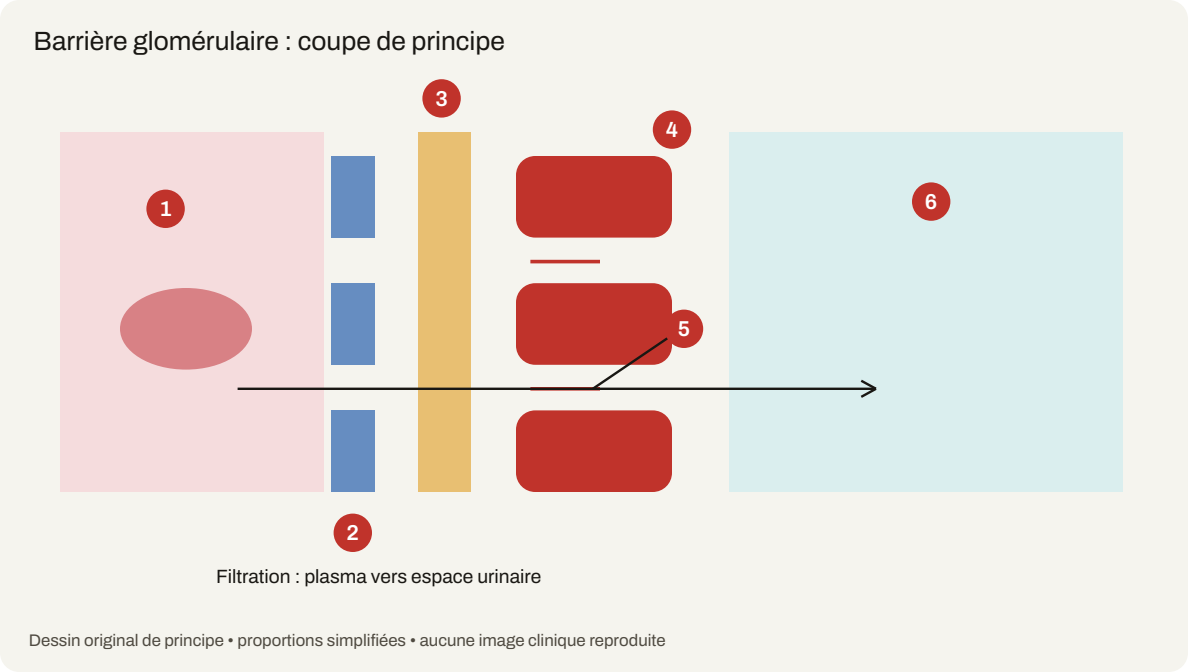
Légende du dessin
1. Lumière capillaire contenant une hématie.
2. Endothélium fenestré, représenté de façon discontinue.
3. Membrane basale glomérulaire.
4. Pédicelles de podocyte du côté urinaire.
5. Région du diaphragme de fente entre pédicelles.
6. Espace urinaire recevant l’ultrafiltrat.
Lecture et limites
La lecture va du compartiment sanguin vers l’espace urinaire. Le trajet traverse successivement plusieurs structures ; les fenestrations endothéliales ne constituent donc pas un passage direct vers l’urine. L’hématie reste dans la lumière sur ce dessin. Les podocytes sont des cellules épithéliales spécialisées, et leurs pédicelles ne doivent pas être confondus avec des cellules endothéliales.
La filtration dépend d’un bilan de pressions et des propriétés de la barrière. Une membrane perméable n’est pas une absence de sélection. La taille, les interactions et l’intégrité des structures interviennent ; le dessin ne permet pas de fixer un seuil universel pour toutes les molécules. Une protéine et un ion ne peuvent pas être traités comme deux particules équivalentes simplement parce qu’ils sont dans le plasma.
La filtration est distincte de la réabsorption et de la sécrétion tubulaires. Le dessin s’arrête au corpuscule et ne montre pas le devenir final de chaque substance. Une molécule présente dans l’ultrafiltrat n’est pas nécessairement excrétée en totalité.
Le dessin figure également dans la planche autonome 24-01, partie 1, avec un exercice de restitution.
Suivre séparément le sang et l’ultrafiltrat
Restitution. Sur un corpuscule rénal, tracer deux parcours de couleurs différentes. Le sang suit artériole afférente, capillaires glomérulaires, puis artériole efférente. L'ultrafiltrat franchit la barrière vers l'espace urinaire et rejoint le tubule proximal au pôle urinaire.
Piège à corriger. L'artériole efférente n'emporte pas l'urine ; le sang qui en sort alimentera encore un réseau capillaire péritubulaire ou les vasa recta selon le néphron. Inversement, l'espace de Bowman ne reçoit pas normalement des cellules sanguines intactes en quantité. Les deux pôles sont des repères d'entrée/sortie de structures différentes. Une section qui ne traverse pas les pôles peut montrer un corpuscule fermé en apparence ; cela n'abolit pas ses continuités tridimensionnelles.
Exercices progressifs
Exercice 1. Quel segment rénal possède une bordure en brosse développée ?
Exercice 2. La macula densa est-elle une cellule du glomérule capillaire ?
Exercice 3. Quel organe endocrine stocke un matériel colloïdal dans des follicules ?
Exercice 4. Pourquoi une cellule surrénalienne peut-elle paraître claire ?
Exercice 5. Distinguer localisation des cellules de Sertoli et de Leydig.
Corrections argumentées
Correction 1. Le tubule proximal. Sa bordure augmente la surface d’échange et rend souvent sa lumière moins nette que celle du distal en coloration standard.
Correction 2. Non. Il s’agit d’un groupe spécialisé de cellules tubulaires au voisinage du pôle vasculaire, appartenant à l’appareil juxtaglomérulaire.
Correction 3. La thyroïde. Le colloïde contient notamment de la thyroglobuline ; cette organisation ne se retrouve pas dans toutes les glandes endocrines.
Correction 4. Ses lipides peuvent être extraits par les solvants. L’aspect clair ne prouve pas une absence de contenu ou une faible activité métabolique.
Correction 5. Les Sertoli se trouvent dans l’épithélium séminifère et soutiennent les cellules germinales. Les Leydig se trouvent dans l’interstitium entre les tubes et assurent une fonction endocrine.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 4 · Histologie endocrine et gonadique : architectures, cellules et cycles
Prérequis et objectifs
Prérequis : épithéliums, tissu conjonctif, capillaires et principes de sécrétion hormonale.
Objectifs : identifier les architectures glandulaires ; relier aspect et fonction ; distinguer compartiments endocrine et germinal.
Reconnaître une organisation endocrine
Une glande endocrine libère ses produits dans le milieu interstitiel, puis ceux-ci atteignent la circulation. Elle ne possède pas de canal excréteur conduisant l’hormone vers une surface épithéliale. Les cellules s’organisent souvent en cordons ou en amas proches d’un réseau capillaire abondant. La thyroïde présente une architecture folliculaire particulière, avec un stockage extracellulaire de précurseurs hormonaux.
La proximité des capillaires facilite les échanges mais ne suffit pas à identifier une glande : de nombreux organes sont très vascularisés. Une analyse histologique combine architecture, types cellulaires, stroma et contexte. Les capillaires endocrines sont fréquemment fenêtrés ; ces fenestrations ne sont pas reconnaissables sur une simple coloration standard en microscopie optique.
Une cellule sécrétrice de peptides peut présenter un réticulum endoplasmique granuleux développé et des granules de sécrétion. Une cellule stéroïdogène possède davantage de réticulum lisse, de mitochondries spécialisées et de réserves lipidiques. Ces caractéristiques ultrastructurales orientent une interprétation. Une vacuolisation optique peut correspondre à l’extraction des lipides pendant la préparation et ne prouve pas une absence de contenu dans la cellule vivante.
Hypophyse : deux tissus d’origines différentes
L’adénohypophyse comporte notamment la pars distalis, riche en cellules endocrines disposées autour de capillaires. Dans les colorations classiques, certaines cellules sont acidophiles, d’autres basophiles, d’autres peu colorées. Cette classification tinctoriale ne remplace pas l’identification d’une hormone. Plusieurs populations peuvent partager un aspect voisin et la coloration dépend de leur état sécrétoire.
Les cellules somatotropes produisent l’hormone de croissance ; les lactotropes la prolactine ; les corticotropes des peptides issus de la POMC, dont l’ACTH ; les thyréotropes la TSH ; les gonadotropes la LH et la FSH. Une immunohistochimie adaptée permet de relier une population à des produits précis. L’absence de forte coloration sur une coupe ordinaire ne suffit pas à déclarer une cellule inactive.
La neurohypophyse contient principalement des axones hypothalamiques, leurs terminaisons et des cellules gliales spécialisées, les pituicytes. L’ocytocine et la vasopressine sont synthétisées dans des neurones de l’hypothalamus, puis transportées et libérées au niveau neurohypophysaire. Les dilatations axonales contenant des produits de neurosécrétion peuvent former des corps de Herring. Il faut distinguer site de synthèse et site de libération.
Le système porte hypothalamo-hypophysaire apporte à l’adénohypophyse les facteurs hypothalamiques par une succession de lits capillaires. La neurohypophyse utilise au contraire des projections axonales directes. Le contraste anatomique explique deux modes de commande différents au sein d’un même organe macroscopique.
- Commande venue de l’hypothalamus
- Adénohypophyse : système porte, lits capillaires successifs
- Neurohypophyse : projections axonales directes
Deux branches distinctes.
Thyroïde et parathyroïdes
La thyroïde est formée de follicules entourés d’un épithélium simple reposant sur une lame basale. Leur lumière contient de la colloïde, riche en thyroglobuline. Les thyréocytes sont polarisés : leur pôle basal échange avec l’interstitium et les capillaires ; leur pôle apical borde la colloïde. La synthèse et la récupération des précurseurs mobilisent ces deux faces.
Un épithélium plus haut et des signes de résorption de colloïde peuvent accompagner une activité accrue, mais une coupe isolée ne mesure pas une sécrétion hormonale. La taille des follicules varie naturellement. Des cellules parafolliculaires, ou cellules C, sécrètent la calcitonine ; elles ne constituent pas le revêtement fonctionnel principal de la lumière colloïdale et ne sont pas toujours identifiables avec certitude en coloration courante.
Les parathyroïdes montrent des cordons de cellules principales au voisinage des capillaires. Elles produisent la PTH. Des cellules oxyphiles, plus grandes et éosinophiles, sont riches en mitochondries. Du tissu adipeux apparaît normalement dans la glande adulte, avec une proportion variable. Contrairement à la thyroïde, il n’existe pas d’organisation générale en follicules remplis de colloïde. Un fragment voisin de thyroïde ne doit donc pas être reconnu seulement par sa localisation.
Surrénale : cortex zoné et médulla
Une capsule conjonctive entoure la surrénale. Le cortex est classiquement divisé, de la périphérie vers la profondeur, en zones glomérulée, fasciculée et réticulée. La première forme des amas ou arcs cellulaires et participe surtout à la production de minéralocorticoïdes. La zone fasciculée, généralement la plus large, présente des cordons de cellules riches en lipides ; elle produit principalement des glucocorticoïdes. La zone réticulée comporte un réseau de cordons et contribue à la production d’androgènes surrénaliens.
La médulla contient des cellules chromaffines associées à des vaisseaux. Ces cellules apparentées aux neurones sympathiques postganglionnaires libèrent des catécholamines dans le sang. Elles reçoivent une commande par des fibres sympathiques préganglionnaires. Le cortex stéroïdogène et la médulla neuroendocrine diffèrent ainsi par leurs produits, leur organisation et leur commande.
- Capsule conjonctive
- Zone glomérulée : minéralocorticoïdes
- Zone fasciculée : glucocorticoïdes
- Zone réticulée : androgènes surrénaliens
- Médulla : cellules chromaffines, catécholamines
Schéma de principe : lire les conditions et les limites dans le texte.
Les frontières entre zones ne sont pas des cloisons étanches. La vascularisation assure des relations entre cortex et médulla. Une coupe partielle peut manquer la capsule ou le centre et rendre la zonation difficile à reconnaître. Il faut orienter l’image avant d’attribuer un nom à une bande cellulaire.
Pancréas endocrine dans un organe mixte
Les îlots pancréatiques apparaissent souvent plus clairs que les acini exocrines environnants. Ils contiennent des cellules endocrines associées à un réseau capillaire. Les cellules bêta sécrètent l’insuline, les alpha le glucagon, les delta la somatostatine ; d’autres populations produisent notamment le polypeptide pancréatique. Les îlots humains n’obéissent pas à une séparation universelle en centre exclusivement bêta et périphérie exclusivement alpha.
Sur une coloration habituelle, une attribution fiable de chaque cellule à une hormone est limitée. L’immunomarquage permet de montrer une distribution qui peut varier selon l’îlot et la région pancréatique. Les acini exocrines, au contraire, sont reliés à un système canalaire et présentent une polarité adaptée à la sécrétion digestive. Une petite lumière dans le tissu exocrine ne correspond pas à un follicule endocrine.
Testicule : compartiments germinal et interstitiel
Les tubes séminifères contournés sont entourés d’une lame basale et de cellules péritubulaires, dont des cellules myoïdes. Leur épithélium associe cellules germinales et cellules de Sertoli. De la périphérie vers la lumière, on rencontre globalement les stades progressifs de la spermatogenèse, mais tous ne sont pas visibles dans chaque section et leur distribution varie selon le stade du cycle épithélial.
Les spermatogonies se situent près de la base. Les spermatocytes primaires sont souvent reconnaissables à leur taille et à leur chromatine ; les spermatocytes secondaires sont peu nombreux sur les coupes, car leur durée de vie avant la deuxième division est courte. Les spermatides deviennent progressivement plus petites et allongées. Les spermatozoïdes peuvent être observés vers la lumière. Cette organisation spatiale ne doit pas être lue comme une migration passive indépendante des cellules de soutien.
Les cellules de Sertoli s’étendent de la base vers la lumière. Leurs jonctions serrées établissent une barrière entre compartiments basal et adluminal. Elles contribuent au soutien, à la régulation du milieu et à la phagocytose de résidus cytoplasmiques. Les cellules de Leydig occupent l’interstitium entre les tubes et produisent la testostérone sous l’influence de la LH. Confondre Leydig et Sertoli mélange production endocrine interstitielle et soutien de l’épithélium germinal.
L’épididyme présente un canal très contourné tapissé d’un épithélium pseudostratifié à longs stéréocils, qui sont des expansions non motiles apparentées à des microvillosités. Le canal déférent possède une paroi musculaire épaisse. Ces voies ne reproduisent pas l’épithélium pluricellulaire de la spermatogenèse.
Ovaire : lire un tissu qui change
Le cortex ovarien contient des follicules à divers stades dans un stroma. Un follicule primordial associe un ovocyte et une couche de cellules folliculaires aplaties. La croissance s’accompagne de cellules cubiques, d’une multiplication des couches de granulosa et de l’apparition de la zone pellucide autour de l’ovocyte. Les dénominations « primaire » et « secondaire » varient selon les conventions : il est plus sûr de décrire couches et présence d’un antrum.
Le follicule antral possède une cavité liquidienne. La granulosa est séparée de la thèque vascularisée par une lame basale et reste avasculaire avant l’ovulation. La thèque interne fournit des précurseurs androgéniques ; la granulosa peut les aromatiser en œstrogènes sous contrôle hormonal. Le cumulus entoure et relie l’ovocyte à la paroi ; la corona radiata correspond aux cellules les plus proches de l’ovocyte.
Après l’ovulation, les cellules folliculaires se transforment et la vascularisation pénètre l’ancien compartiment de granulosa : le corps jaune devient une structure endocrine transitoire. Sa régression laisse un corps blanc fibreux. L’atrésie peut atteindre des follicules à plusieurs stades ; tous les follicules engagés dans la croissance n’ovulent pas. Un corps jaune et un follicule atrétique ne sont pas deux noms pour la même structure.
- Follicule primordial : cellules folliculaires aplaties
- Croissance : couches de granulosa, zone pellucide
- Follicule antral : cavité liquidienne
- Après l’ovulation : corps jaune endocrine transitoire
- Régression : corps blanc fibreux
Schéma de principe : lire les conditions et les limites dans le texte.
Une comparaison pour orienter une coupe
| Structure | Architecture dominante | Indice utile | Limite d’identification |
|---|---|---|---|
| Thyroïde | Follicules à colloïde | Lumières bordées d’un épithélium simple | Activité non quantifiable sur un seul follicule |
| Surrénale | Cortex zoné, médulla centrale | Ordre des zones et aspect lipidique | Orientation de la coupe indispensable |
| Pancréas | Îlots parmi les acini | Contraste endocrine-exocrine | Hormone cellulaire non certaine sans marquage |
| Testicule | Tubes et interstitium | Stades germinaux, Sertoli, Leydig | Plusieurs stades absents d’une section donnée |
| Ovaire | Follicules et structures cycliques | Antrum, granulosa, thèque, corps jaune | Une coupe ne donne pas l’histoire complète du cycle |
La méthode commune consiste à décrire d’abord, identifier ensuite et limiter enfin la conclusion à ce qui est visible. Une image histologique n’est ni un dosage hormonal ni une chronologie complète.
Localiser une barrière dans le bon compartiment
Question. Dans le testicule, placer successivement capillaire interstitiel, cellule de Leydig, lame basale du tube, spermatogonie et compartiment adluminal. Où se situe la barrière hématotesticulaire décrite ici ?
Correction. Ses jonctions spécialisées unissent des cellules de Sertoli à l'intérieur de l'épithélium séminifère, séparant compartiments basal et adluminal. Elle ne se confond ni avec la lame basale ni avec le seul endothélium capillaire. Les spermatogonies occupent le compartiment basal ; les stades plus avancés se trouvent majoritairement du côté adluminal. La progression nécessite un remaniement coordonné des jonctions pour préserver la séparation fonctionnelle. Les Leydig restent dans l'interstitium : leur fonction endocrine ne les transforme pas en cellules de soutien intratubulaires.
Exercices progressifs
Exercice 1. Un organe contient des follicules remplis de colloïde. Quelle identification est la plus compatible ?
Exercice 2. La neurohypophyse synthétise-t-elle dans ses pituicytes la vasopressine qu’elle libère ?
Exercice 3. Des cellules riches en lipides forment une large zone de cordons sous une zone périphérique en amas. Quelle zone surrénalienne évoquer ?
Exercice 4. Où se trouvent les cellules de Leydig par rapport aux tubes séminifères ?
Exercice 5. Pourquoi la vascularisation distingue-t-elle granulosa folliculaire et tissu lutéal ?
Corrections argumentées
Correction 1. La thyroïde. L’association colloïde-épithélium simple folliculaire est déterminante ; la seule vascularisation serait insuffisante.
Correction 2. Non. La synthèse a lieu dans des neurones hypothalamiques, puis le produit est transporté dans leurs axones. Les pituicytes sont des cellules gliales de soutien.
Correction 3. La zone fasciculée, à confronter à l’orientation complète de la coupe. L’aspect clair peut résulter de l’extraction des lipides.
Correction 4. Dans l’interstitium entre les tubes. Les Sertoli sont dans l’épithélium séminifère et ne sont pas leurs équivalents topographiques.
Correction 5. La granulosa du follicule préovulatoire est avasculaire, séparée de la thèque par une lame basale. Après ovulation, la réorganisation et l’invasion vasculaire participent à la formation du corps jaune.
Références et portée
Rédaction originale et exemples construits. Ressources universitaires et institutionnelles consultées le 1 octobre 2026 pour recoupement ciblé ; elles ne certifient pas le programme local.
Partie 5 · Peau et annexes : barrière, renouvellement et interfaces
Objectifs et carte des compartiments
La peau associe un épithélium de surface, l'épiderme, à un tissu conjonctif vascularisé, le derme. L'hypoderme sous-jacent contient notamment des lobules adipeux et des septa conjonctifs ; selon les conventions, il est décrit avec la peau sans appartenir à la peau au sens strict. Fixer cette convention évite de confondre une différence de vocabulaire avec une différence anatomique. L'épaisseur cutanée totale et celle de l'épiderme sont deux mesures distinctes.
Les objectifs sont de reconnaître une peau épaisse ou fine sur une coupe, expliquer comment une surface avasculaire reste vivante, attribuer chaque annexe à son système de sécrétion et relier la barrière à ses mécanismes de renouvellement. La physiologie des récepteurs sensoriels est développée en 10-01, partie 4 ; le présent cours se concentre sur leur implantation tissulaire. Une image histologique fixe une architecture après préparation : elle ne mesure directement ni la vitesse de renouvellement ni la perméabilité de la barrière.
Kératinocytes : une différenciation orientée
De la profondeur vers la surface, on distingue les couches basale, épineuse, granuleuse et cornée. La couche claire est particulièrement visible dans la peau épaisse palmoplantaire. Cette série décrit des états de différenciation ; elle ne représente pas cinq types cellulaires produits indépendamment. Des cellules basales proliférantes entretiennent des populations qui se différencient et migrent vers la surface, jusqu'aux cornéocytes anucléés qui sont finalement éliminés.
Les kératinocytes sont liés entre eux par des jonctions, notamment des desmosomes connectés aux filaments intermédiaires de kératine. Les ponts apparents de la couche épineuse sont accentués par la préparation histologique. Les hémidesmosomes basaux relient, par des protéines transmembranaires, le cytosquelette à la lame basale. Confondre desmosome et hémidesmosome conduit à relier deux cellules là où il faut relier une cellule à la matrice.
Les grains de kératohyaline interviennent dans l'organisation de la différenciation cornée ; les corps lamellaires libèrent des lipides dans l'espace extracellulaire. Ce sont deux structures différentes. La barrière ne se réduit donc pas à « beaucoup de kératine » : elle dépend aussi de l'enveloppe des cornéocytes, des lipides intercellulaires et de l'organisation des jonctions dans l'épiderme vivant. Une augmentation du nombre de couches ne garantit pas, à elle seule, une barrière efficace.
Interface dermo-épidermique et nutrition
L'épiderme ne contient pas de vaisseaux sanguins. Les nutriments et les gaz diffusent depuis les capillaires du derme, à travers le milieu extracellulaire et l'interface basale. Les papilles dermiques et les crêtes épidermiques augmentent la surface de contact et contribuent à la résistance mécanique. Une projection de derme dans l'épiderme conserve sa nature conjonctive ; elle ne devient pas un vaisseau intraépithélial parce qu'elle apparaît très proche de la surface.
Sur une coupe, il faut distinguer une véritable rupture de continuité d'un décollement créé pendant la préparation. La lame basale est une matrice spécialisée ; sa localisation et ses composants ne sont pas intégralement résolus sur toute coloration courante. Une ligne visible n'identifie pas à elle seule chaque molécule d'ancrage. La relation structure-fonction se construit avec la topologie, les colorations et, si nécessaire, un marquage spécifique.
Un épithélium stratifié peut nourrir ses couches vivantes sans circulation propre parce que les distances de diffusion restent limitées. La couche cornée terminale n'a pas les mêmes besoins métaboliques qu'une couche basale active. Il est donc faux d'attribuer la survie de toutes les couches à des capillaires qui monteraient jusqu'aux cornéocytes.
Cellules minoritaires et pigmentation
Les mélanocytes, situés principalement dans la couche basale, synthétisent la mélanine dans des mélanosomes. Ils transfèrent ces organites aux kératinocytes. La présence de pigment dans un kératinocyte ne fait donc pas de celui-ci un mélanocyte. La répartition, le type et le devenir des mélanosomes contribuent aux différences de pigmentation ; compter seulement les mélanocytes ne suffit pas à prévoir la couleur cutanée.
Les cellules de Langerhans participent à la surveillance immunitaire épidermique. Elles peuvent capter des antigènes et contribuer aux réponses immunes, avec un comportement dépendant du contexte. Les cellules de Merkel sont associées à des terminaisons sensitives et participent à la mécanoréception. Ce ne sont ni des cellules pigmentaires ni des cellules sécrétrices de sébum. Une cellule claire sur une lame standard ne peut pas être attribuée avec certitude à l'une de ces populations sans critères supplémentaires.
Derme, hypoderme et propriétés mécaniques
Le derme papillaire superficiel est relativement lâche ; le derme réticulaire profond comporte des faisceaux conjonctifs plus denses, orientés dans plusieurs directions. Collagènes, fibres élastiques, substance fondamentale, fibroblastes et cellules immunitaires composent un matériau vivant. Le collagène contribue à la résistance à la traction ; les fibres élastiques participent au retour après déformation. La peau n'est pas un ressort parfaitement linéaire : son comportement dépend de la direction, de la vitesse et de l'amplitude de sollicitation.
L'hypoderme amortit et permet une mobilité relative entre plans tout en contribuant au stockage énergétique et à l'isolation. Les vaisseaux et nerfs y cheminent avant de rejoindre les plans plus superficiels. Une coupe contenant des adipocytes n'est pas nécessairement une coupe de glande sébacée : les adipocytes uniloculaires et les lobules sébacés ont des organisations, des noyaux et des relations au follicule différents.
La vascularisation dermique participe à la thermorégulation. Une vasodilatation modifie les échanges de chaleur entre compartiment central et surface, mais la dissipation finale dépend aussi de l'environnement. Si la température extérieure dépasse celle de la peau, les transferts secs ne refroidissent plus nécessairement l'organisme. L'évaporation et les gradients doivent être distingués de la simple présence d'un débit sanguin cutané.
Follicule pileux et glande sébacée
Le follicule est une invagination épithéliale entourée de tissus conjonctifs. Sa portion profonde comporte une matrice proliférante organisée autour d'une papille dermique. La tige pilaire est une structure kératinisée ; sa croissance dépend de cellules vivantes situées à sa base. Couper la tige n'équivaut donc pas à retirer la matrice. La profondeur observée d'un follicule varie avec le site, la phase du cycle et le plan de coupe.
Le cycle pilaire comporte croissance, régression puis repos ; tous les follicules ne sont pas synchronisés. Une coupe instantanée ne permet pas d'estimer directement une vitesse moyenne de croissance sans autre information. Le muscle arrecteur du poil est un muscle lisse sous contrôle autonome, distinct des muscles squelettiques qui mobilisent un membre.
Les glandes sébacées sont habituellement associées au follicule. Elles produisent une sécrétion lipidique par un mécanisme holocrine : la cellule sécrétrice se charge puis se désintègre. Leur renouvellement cellulaire est donc indissociable de la sécrétion. Cela ne signifie pas que tout tissu qui perd des cellules constitue une glande holocrine : il faut une organisation glandulaire et un produit sécrété identifiable.
Glandes sudoripares et ongle
Les glandes eccrines comportent une portion sécrétrice tubuleuse pelotonnée et un canal excréteur. Celui-ci s'ouvre directement à la surface. Le canal modifie la composition du liquide primaire ; le produit final ne correspond pas simplement à un ultrafiltrat inchangé du plasma. Des cellules myoépithéliales entourent la portion sécrétrice et participent à l'expulsion du produit sans constituer une paroi musculaire identique à celle d'une artère.
Les glandes dites apocrines sont situées dans des régions déterminées et s'abouchent généralement dans un follicule. Le nom de cette famille anatomique ne suffit pas à décrire chaque étape ultrastructurale de sécrétion ; il faut éviter de déduire une décapitation cellulaire obligatoire de chaque cellule observée. Leur lumière est souvent plus large que celle des glandes eccrines. Cette différence doit être confrontée aux autres critères et au site.
L'ongle est une production épithéliale kératinisée. La matrice produit l'essentiel de la tablette ; le lit unguéal et les replis participent à son support et à ses interfaces. La tablette n'est pas un os miniature. Une lésion de la matrice n'a pas la même conséquence architecturale qu'une simple altération de son bord libre déjà formé.
Lecture comparative et renouvellement
La peau épaisse palmoplantaire présente un épiderme et une couche cornée développés, sans follicules pileux ni glandes sébacées, mais avec des glandes eccrines. La peau fine recouvre la majeure partie du corps et peut comporter des follicules et des glandes sébacées. Le terme « fine » ne veut pas dire que le derme ou l'ensemble de la pièce est nécessairement mince. L'absence d'un follicule dans une petite coupe ne prouve pas une peau glabre : le plan peut passer entre les follicules.
Lors d'une réparation, les cellules épithéliales doivent proliférer, migrer et rétablir une continuité ; le compartiment conjonctif se remodèle parallèlement. Une surface redevenue continue n'est pas nécessairement une restauration parfaite des annexes, de la résistance ou de l'innervation initiales. Inflammation, vascularisation et matrice ont des évolutions différentes. Ce cours décrit des mécanismes fondamentaux et ne constitue pas une conduite de soin.
- Identifier la surface cornée
- Repérer l'interface dermo-épidermique
- Distinguer derme et hypoderme
- Chercher les annexes et leur abouchement
- Confronter les critères au site et au plan de coupe
Repères complémentaires, sans ordre ni lien de cause.
Le schéma est une séquence de lecture, sans proportions anatomiques. Une conclusion doit citer plusieurs critères positifs plutôt que l'absence d'une structure sur un champ limité.
Lecture visuelle : Peau : relier les couches à la vascularisation
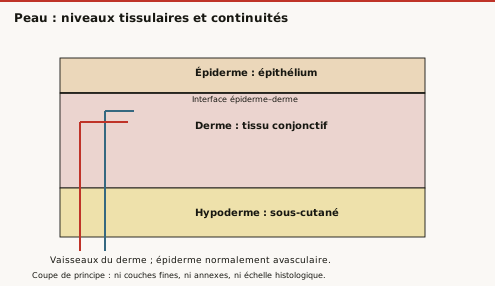
Question de lecture
Comment les cellules de l’épiderme reçoivent-elles des nutriments sans capillaires intraépidermiques ?
Correction de lecture
Les nutriments diffusent depuis les capillaires du tissu conjonctif dermique à travers le milieu interstitiel et l’interface basale. L’absence de vaisseaux dans l’épiderme ne signifie donc pas absence de nutrition.
Exercices discriminants
Exercice 1. Une papille dermique contient un capillaire entouré presque de tous côtés par des crêtes épidermiques. L'épiderme est-il vascularisé ?
Exercice 2. Une cellule de la couche épineuse contient des mélanosomes. Peut-on conclure qu'elle synthétise la mélanine ?
Exercice 3. Opposer desmosome et hémidesmosome en nommant les deux partenaires reliés.
Exercice 4. Une pièce présente une couche cornée très épaisse, de nombreux canaux sudoripares et aucun follicule sur plusieurs niveaux. Proposer une identification et sa limite.
Exercice 5. Comparer les conséquences d'une interruption de prolifération de la matrice pilaire et de la section d'une tige déjà formée.
Exercice 6. Pourquoi une production abondante de sueur ne garantit-elle pas une forte perte de chaleur ?
Exercice 7. Une image montre un amas clair dans le derme : quelles relations rechercher avant de l'appeler glande sébacée ?
Exercice 8. Une surface épithéliale restaurée prouve-t-elle que la réparation a restitué toutes les fonctions initiales ?
Corrections développées
Correction 1. Non. Le capillaire reste dans une projection conjonctive du derme. La frontière est l'interface basale, pas une ligne horizontale arbitraire sur la photographie. Les échanges vers les kératinocytes nécessitent encore une diffusion ; la vascularisation appartient au tissu conjonctif.
Correction 2. Non. Les mélanosomes peuvent être transférés depuis un mélanocyte. Il faut distinguer lieu de production et lieu de stockage ou d'action. La morphologie, la position et un marquage adapté peuvent aider à identifier la cellule, sans déduire son identité du pigment seul.
Correction 3. Le desmosome unit deux cellules épithéliales ; leurs filaments intermédiaires sont reliés par un ensemble de plaques et de protéines d'adhérence. L'hémidesmosome relie une cellule basale à la matrice spécialisée sous-jacente. Une interruption n'affecte donc pas la même interface.
Correction 4. L'ensemble est compatible avec une peau épaisse palmoplantaire. La répétition des observations et les canaux eccrines renforcent cette interprétation. Une couche cornée épaisse isolée ne suffit pas à identifier une région ; il faut le contexte et l'architecture complète.
Correction 5. La matrice contient les cellules qui produisent la tige ; son arrêt peut modifier la formation future. La tige déjà formée est kératinisée et sa section raccourcit un produit sans retirer automatiquement ses cellules formatrices. Les deux opérations ne portent pas sur le même compartiment temporel.
Correction 6. Le refroidissement dépend principalement de l'évaporation effective. Une sueur qui ruisselle sans s'évaporer emporte moins de chaleur latente ; l'humidité et les mouvements d'air modifient ce processus. Débit de sécrétion et efficacité thermique ne sont donc pas synonymes.
Correction 7. Rechercher des lobules, une périphérie de cellules moins chargées, une maturation vers des cellules lipidiques et une relation à un conduit puis au follicule. Les adipocytes appartiennent à une autre architecture. Un seul profil clair sans contexte reste insuffisant.
Correction 8. Non. La continuité de surface renseigne sur la fermeture épithéliale. L'organisation du collagène, les annexes, les vaisseaux et les nerfs peuvent rester différents. Une preuve sur un compartiment ne doit pas être étendue à toutes les fonctions de l'organe.
Sources et limites documentaires
Rédaction originale et exercices de raisonnement. Ressources ouvertes consultées le 2 octobre 2026 ; les images de ces ressources ne sont pas reproduites. Les durées individuelles de renouvellement ne sont pas traitées comme des constantes universelles.
- Université de Leeds : Skin et lames commentées
- Université de Leeds : Skin layers
- OpenStax : Layers of the Skin
Renvois : 07-01, partie 2 pour les épithéliums ; 07-01, partie 3 pour la matrice ; 10-01, partie 4 pour la transduction sensorielle. Cette sélection n'établit pas l'exhaustivité du programme local.
Partie 6 · Organes des sens : architectures de l'œil, de l'oreille et des interfaces chimiques
Objectifs et niveaux d'observation
Une fonction sensorielle suppose un dispositif qui amène le stimulus, une cellule qui le transforme et des circuits qui transportent et traitent l'information. Ces trois niveaux ne sont pas interchangeables. Une cornée transparente contribue à la vision sans être un photorécepteur ; un osselet transmet une vibration sans la convertir en signal nerveux. Le cours 10-01, partie 4 développe le codage et la transduction. Ici, l'objectif est de localiser les tissus, reconnaître leurs interfaces et expliquer les contraintes qu'impose leur arrangement.
Les coupes doivent être orientées. « Interne » peut désigner le côté du globe, le côté du labyrinthe ou le côté de l'axe cochléaire selon l'objet. Une description valable nomme ses repères. Une séparation blanche sur une lame peut correspondre à une cavité réelle, à un milieu liquide éliminé pendant la préparation ou à un décollement artificiel. Avant de mémoriser un espace, il faut comprendre sa continuité et son contenu in vivo.
Tuniques du globe et milieux transparents
La tunique fibreuse comporte la sclère, résistante et opaque, et la cornée, transparente. La tunique vasculaire ou uvée associe choroïde, corps ciliaire et iris. La rétine constitue la tunique interne spécialisée dans la partie postérieure. Cette organisation en tuniques ne décrit pas une homogénéité : l'épaisseur, la vascularisation et la fonction changent fortement selon la région.
La cornée possède un épithélium antérieur stratifié non kératinisé, un stroma organisé et une couche postérieure appelée endothélium cornéen, avec leurs interfaces basales spécialisées. Cet endothélium n'est pas la paroi d'un vaisseau : son nom ne doit pas conduire à inventer une lumière sanguine. La transparence dépend de l'organisation stromale et du contrôle de l'hydratation. La cornée normale est avasculaire ; cela ne signifie ni absence d'innervation ni absence de besoins nutritifs.
Le cristallin possède une capsule, un épithélium antérieur et des fibres allongées. Les fibres matures perdent leurs noyaux et de nombreux organites, ce qui participe à la transparence. Il n'existe pas un épithélium identique sur toute sa face postérieure. Le vitré occupe la grande cavité postérieure ; il n'est pas de l'humeur aqueuse et ne suit pas son circuit de renouvellement.
Corps ciliaire, iris et circulation de l'humeur aqueuse
L'humeur aqueuse est produite par les procès ciliaires, traverse la chambre postérieure, puis la pupille, avant la chambre antérieure et ses voies de drainage. La chambre postérieure est située entre iris et cristallin : elle ne correspond pas à toute la partie du globe située derrière le cristallin. Une erreur de vocabulaire déplace donc tout un circuit.
- Production par les procès ciliaires
- Chambre postérieure, entre iris et cristallin
- Passage par la pupille
- Chambre antérieure
- Voies de drainage
Schéma de principe : lire les conditions et les limites dans le texte.
Le muscle ciliaire agit sur la tension de l'appareil zonulaire et permet l'accommodation. Il ne presse pas directement le cristallin comme une pince. Lors de l'accommodation de près, sa contraction réduit la tension zonulaire et permet une forme plus bombée du cristallin. Avec l'âge, les propriétés du cristallin limitent cette adaptation ; une diminution d'accommodation n'implique donc pas nécessairement une absence de commande nerveuse.
L'iris règle l'ouverture pupillaire par deux systèmes musculaires distincts. La pupille est une ouverture, non une lentille noire. Elle module la quantité de lumière et contribue aux conditions optiques. Le corps ciliaire et l'iris portent des prolongements épithéliaux de la rétine embryologique, mais ces territoires ne sont pas équivalents à la rétine photosensible postérieure.
Rétine : sens de la lumière et sens de l'information
La lumière entre du côté du vitré et traverse plusieurs couches avant d'atteindre les segments photosensibles des cônes et des bâtonnets, situés du côté de l'épithélium pigmentaire. L'information rejoint ensuite, par des circuits intermédiaires, les cellules ganglionnaires dont les axones forment le nerf optique. La direction de propagation du stimulus lumineux n'est donc pas la direction de transmission de l'information nerveuse.
Sur une coupe, les couches nucléaires regroupent principalement des corps cellulaires, alors que les couches plexiformes correspondent à des zones riches en prolongements et synapses. La couche nucléaire externe contient les noyaux des photorécepteurs ; l'interne comporte notamment ceux des cellules bipolaires, horizontales et amacrines ainsi que des cellules de Müller. Cette distinction permet de lire une densité de noyaux sans appeler chaque strate « couche de neurones sensoriels ».
Les cellules de Müller sont des cellules gliales qui traversent une grande partie de l'épaisseur rétinienne et contribuent à son organisation et à son homéostasie. L'épithélium pigmentaire participe au soutien métabolique, au cycle des pigments visuels et au renouvellement des segments externes. Il n'est pas un simple écran passif. Les photorécepteurs, malgré leur position éloignée du vitré, restent en relation étroite avec ce compartiment.
Régions rétiniennes et voies de sortie
La fovéa présente une spécialisation favorable à la haute acuité, avec une forte représentation des cônes et un déplacement des couches internes. L'organisation périphérique favorise d'autres performances, notamment dans des conditions de faible éclairement. La densité de récepteurs, la convergence des circuits et les propriétés optiques interviennent conjointement : une performance ne se déduit pas uniquement d'un nombre de cellules.
La papille optique est le site de convergence et de sortie des axones ganglionnaires et de passage des vaisseaux. Elle ne contient pas la mosaïque habituelle de photorécepteurs et correspond au point aveugle physiologique. Elle ne doit pas être confondue avec la fovéa, région d'acuité élevée. La rétine bénéficie de circulations complémentaires ; parler globalement d'une « rétine avasculaire » serait faux, même si certaines régions ou couches ont une organisation particulière.
Oreille externe et moyenne : une transmission mécanique
Le conduit auditif externe amène les variations de pression au tympan. Le pavillon contient du cartilage élastique, alors que le lobule en est dépourvu. La membrane tympanique possède des faces de nature épithéliale différente et une armature conjonctive. Une fine membrane observée entre air et cavité n'est donc pas nécessairement un épithélium simple isolé.
Marteau, enclume et étrier forment une chaîne mécanique entre tympan et fenêtre ovale. Leur géométrie contribue au transfert de l'énergie du milieu aérien vers les liquides de l'oreille interne. Les osselets ne créent pas l'énergie acoustique : ils modifient les relations force, déplacement et pression. La fenêtre ronde permet une déformation complémentaire du système liquidien ; les liquides sont très peu compressibles.
- Conduit auditif externe : variations de pression
- Membrane tympanique
- Marteau, enclume et étrier
- Fenêtre ovale
- Liquides de l'oreille interne
Schéma de principe : lire les conditions et les limites dans le texte.
La trompe auditive relie l'oreille moyenne au rhinopharynx et participe à l'équilibrage des pressions. Elle ne relie pas la cochlée à la cavité nasale. Un raisonnement topologique doit conserver séparés l'espace aérien moyen et les compartiments liquidiens du labyrinthe. Des muscles de l'oreille moyenne modulent la transmission, mais ils ne constituent pas le transducteur sensoriel principal.
Cochlée : trois compartiments et un épithélium sensoriel
Une coupe de tour cochléaire montre classiquement la rampe vestibulaire, le canal cochléaire et la rampe tympanique. Les rampes contiennent de la périlymphe ; le canal cochléaire contient de l'endolymphe. La membrane vestibulaire et la membrane basilaire délimitent ce dernier. La strie vasculaire de sa paroi latérale contribue au milieu ionique spécialisé. L'endolymphe riche en potassium n'est pas un liquide extracellulaire banal interchangeable avec le plasma.
- Rampe vestibulaire : périlymphe
- Canal cochléaire : endolymphe riche en potassium
- Rampe tympanique : périlymphe
Repères complémentaires, sans ordre ni lien de cause.
L'organe de Corti repose sur la membrane basilaire. Il associe cellules ciliées internes et externes, cellules de soutien et rapports particuliers avec la membrane tectoriale. Les « cils » apicaux des cellules ciliées cochléaires matures correspondent à des stéréocils constitués d'actine ; ce ne sont pas des cils vibratiles dotés d'un axonème moteur classique. Leur déflexion modifie des canaux mécanosensibles.
Les cellules ciliées internes assurent l'essentiel de la transmission afférente vers le nerf cochléaire. Les externes participent activement à l'amplification et à la sélectivité mécanique. Ces rôles complémentaires interdisent de compter les deux populations comme des transducteurs parfaitement équivalents. Les corps cellulaires des neurones afférents se trouvent dans le ganglion spiral ; une cellule ciliée est une cellule épithéliale sensorielle, pas ce neurone afférent lui-même.
Vestibule, olfaction et goût : comparer les interfaces
Les macules de l'utricule et du saccule associent cellules ciliées, membrane otolithique et otoconies. Elles renseignent sur les accélérations linéaires et l'orientation par rapport à la gravité. Les crêtes ampullaires des canaux semi-circulaires comportent une cupule et participent à la détection des mouvements angulaires. Les otoconies appartiennent au dispositif maculaire ; il ne faut pas les placer dans chaque cupule par simple analogie de dessin.
L'épithélium olfactif contient des neurones récepteurs bipolaires, des cellules de soutien et des cellules basales. Ici, la cellule réceptrice est elle-même neuronale. Ses prolongements apicaux portent la machinerie de réception ; ses axones rejoignent les circuits du bulbe olfactif. Ce dispositif diffère de la cellule ciliée auditive qui communique par synapse avec un neurone distinct.
Les bourgeons gustatifs sont des ensembles de cellules spécialisées ouverts vers la surface par un pore. Toutes les papilles linguales n'ont pas la même fonction : les papilles filiformes ont principalement un rôle mécanique et ne constituent pas un ensemble de bourgeons gustatifs. Un relief de langue et un bourgeon sensoriel sont donc deux niveaux d'organisation. Les substances doivent accéder au milieu apical pour rencontrer les dispositifs de transduction.
Exercices discriminants
Exercice 1. Placer, dans l'ordre, le trajet de l'humeur aqueuse depuis sa production jusqu'à la chambre antérieure.
Exercice 2. Pourquoi l'expression « endothélium cornéen » ne prouve-t-elle pas une vascularisation cornéenne ?
Exercice 3. Une flèche va du vitré vers les segments externes des photorécepteurs. Représente-t-elle nécessairement un influx nerveux ?
Exercice 4. Une zone rétinienne contient les axones qui sortent du globe et aucun photorécepteur habituel. Fovéa ou papille ?
Exercice 5. Peut-on perfuser le canal cochléaire avec un liquide de composition identique à la périlymphe en supposant une fonction inchangée ?
Exercice 6. Opposer cellule ciliée interne et neurone du ganglion spiral.
Exercice 7. Un dessin place des otoconies dans une cupule ampullaire. Identifier l'amalgame.
Exercice 8. Comparer la nature cellulaire du récepteur olfactif, du photorécepteur et de la cellule ciliée cochléaire.
Corrections développées
Correction 1. Procès ciliaires, chambre postérieure, pupille, chambre antérieure, puis voies de drainage. Le vitré n'appartient pas à ce trajet. L'ordre contraint la position des espaces : une chambre postérieure représentée derrière tout le cristallin serait mal nommée.
Correction 2. Il s'agit du nom d'une couche postérieure spécialisée, pas de l'endothélium d'une lumière sanguine. La cornée normale reste avasculaire. L'identification d'un vaisseau exige une lumière et une organisation vasculaire, pas seulement un terme partagé.
Correction 3. Non. Elle correspond ici au trajet lumineux entrant. La transmission vers les cellules ganglionnaires emprunte un autre sens et plusieurs relais. Distinguer stimulus et signal empêche de retourner les couches lors d'une reconstruction.
Correction 4. C'est la papille optique. La fovéa est spécialisée pour la haute acuité et possède des cônes ; le site de sortie du nerf ne doit pas lui être substitué. Une dépression ou une rupture de couche sur une préparation ne suffit toutefois pas sans les autres critères.
Correction 5. Non. Le milieu apical endolymphatique et les différences électrochimiques participent au courant de transduction. Remplacer sa composition modifie les forces qui déplacent les ions, même si l'architecture des cellules semble intacte. Structure conservée et fonction conservée sont deux propositions distinctes.
Correction 6. La cellule ciliée est une cellule sensorielle épithéliale qui convertit la déformation en variation électrique et en libération synaptique. Le neurone afférent possède son corps cellulaire dans le ganglion spiral et conduit des potentiels d'action vers le système central. Les deux participent à une chaîne, mais ne sont pas une seule cellule.
Correction 7. Le dessin mélange macule otolithique et crête ampullaire. Les premières portent une membrane lestée d'otoconies ; les secondes une cupule. Elles partagent des cellules ciliées mais les dispositifs mécaniques et les types de mouvement renseignés diffèrent.
Correction 8. Le récepteur olfactif et le photorécepteur sont des neurones spécialisés, avec des organisations très différentes. La cellule ciliée cochléaire est une cellule épithéliale sensorielle connectée à un neurone afférent. Être « récepteur sensoriel » décrit une fonction, pas une identité histologique unique.
Références et limites
- Histology Guide : Organs of Special Sense, lames et parcours
- Histology Guide : Eye, MHS 302
- OpenStax : Sensory Perception
Consultation documentaire le 2 octobre 2026. Cours de structure et raisonnement ; aucune image de ressource externe reproduite, aucun protocole de prise en charge. Les dimensions et numérotations détaillées des couches sont à rapprocher de la convention pédagogique locale.
Ce cours, en cartes de révision
Lire un cours ne suffit pas à le retenir. Dépose ce cours, ou le poly de ta fac, dans Ossik : il en sort des cartes sourcées à la page, qu’il te ressort au bon moment.