Ce cours réunit 3 parties : 1. Structure et reconnaissance des glucides ; 2. Lipides et organisation des membranes ; 3. Nucléotides, vitamines et coenzymes.
Partie 1 · Structure et reconnaissance des glucides
Prérequis et objectifs
Connaître carbonyles, alcools et stéréochimie. Le cours vise à lire un ose linéaire ou cyclique, distinguer D/L et alpha/bêta, reconnaître une liaison osidique et expliquer le pouvoir réducteur. La géométrie du glucide influence directement la reconnaissance enzymatique.
1. Oses et familles
Un ose possède plusieurs groupes hydroxyle et un carbonyle sous forme ouverte. Un aldose porte un aldéhyde ; un cétose porte une cétone. Le nombre de carbones donne triose, pentose, hexose. Le glucose est un aldohexose ; le fructose un cétohexose.
Deux oses peuvent avoir la même formule brute mais une fonction carbonylée différente ou une configuration différente. Des épimères diffèrent par la configuration d’un seul centre stéréogène, hors comparaison spécifique des anomères. Glucose et galactose sont notamment épimères en C4 dans la série usuelle.
La série D ou L se définit par la configuration du centre de référence le plus éloigné du carbonyle dans la projection de Fischer conventionnelle. Elle ne donne pas le signe de rotation optique. Un sucre D peut être lévogyre.
2. Cyclisation
Un OH de la molécule peut attaquer son propre carbonyle et former un hémiacétal ou hémicétal cyclique. Le nouveau cycle contient un oxygène. Un cycle à six atomes est appelé pyranose ; à cinq, furanose. Le nombre d’atomes du cycle n’est pas le nombre total de carbones du sucre.
Le carbone anciennement carbonylé devient le carbone anomérique : C1 pour un aldose comme le glucose, C2 pour un cétose comme le fructose. La cyclisation peut créer deux configurations à ce centre, alpha et bêta.
Les conventions alpha/bêta expriment une relation relative avec le groupe de référence, souvent le CH2OH dans les dessins usuels des D-oses. Il faut éviter d’apprendre simplement « alpha vers le bas » sans préciser la série et la convention de projection.
3. Mutarotation et formes présentes
Si le carbone anomérique porte un OH hémiacétal libre, le cycle peut s’ouvrir puis se refermer. Les anomères s’interconvertissent par l’intermédiaire d’une forme ouverte : cela modifie progressivement la rotation optique mesurée, phénomène de mutarotation.
La forme ouverte peut être très minoritaire et néanmoins permettre une réactivité. Une faible fraction ne signifie pas absence de participation : l’équilibre la régénère au fur et à mesure de sa consommation.
Une représentation de Haworth simplifie un cycle ; elle ne montre pas sa conformation tridimensionnelle exacte. Pour un pyranose, les conformations en chaise expliquent les positions axiales et équatoriales et les différences d’encombrement.
4. Liaison osidique et pouvoir réducteur
Une liaison glycosidique engage le carbone anomérique avec un autre groupe, souvent un OH. Lorsque le centre devient un acétal, il ne peut plus s’ouvrir par le même équilibre simple sans hydrolyse de la liaison.
Un disaccharide reste réducteur si au moins un carbone anomérique pertinent demeure libre. Le maltose et le lactose possèdent une extrémité réductrice. Dans le saccharose, les deux centres anomériques sont engagés : il est non réducteur dans les tests usuels.
La notation alpha(1→4) précise configuration du centre donneur et positions reliées. Elle ne signifie pas que tous les centres du polymère sont alpha ni que quatre carbones ont été supprimés.
Le terme « réducteur » décrit la capacité de certaines formes à réduire un réactif dans un test défini. Les cétoses peuvent donner des tests positifs dans certaines conditions via des transformations en milieu alcalin ; la présence initiale d’une cétone n’interdit donc pas automatiquement tout pouvoir réducteur.
5. Polysaccharides et fonction
Le glycogène possède des liaisons alpha(1→4) et des branches alpha(1→6). Les nombreuses extrémités non réductrices permettent une mobilisation simultanée par plusieurs enzymes. La ramification améliore aussi l’organisation du stockage.
L’amidon comprend amylose et amylopectine ; la cellulose possède des liaisons bêta(1→4) entre unités de glucose. La différence alpha/bêta change la géométrie et la reconnaissance enzymatique. L’organisme humain ne possède pas les mêmes capacités de digestion de ces polymères.
Les glycosaminoglycanes comportent des unités répétées souvent chargées. Leur hydratation contribue aux propriétés des matrices extracellulaires. Les glucides ne servent donc pas seulement de réserve énergétique : ils participent aussi à structure, reconnaissance et signalisation.
6. Exemple de lecture
Un disaccharide contient un glucose dont C1 alpha est relié à O du C4 d’un second glucose. Le premier centre anomérique est engagé ; le C1 du second reste libre. Le composé possède une extrémité réductrice et peut subir une mutarotation à ce second centre.
Si une liaison implique au contraire les deux centres anomériques, aucun des deux ne reste hémiacétal libre. Le pouvoir réducteur et la mutarotation correspondante disparaissent jusqu’à une éventuelle hydrolyse.
- Identifier aldose ou cétose
- Repérer le carbone anomérique
- Lire la configuration
- Localiser les liaisons osidiques
- Chercher une extrémité libre
Schéma de principe : lire les conditions et les limites dans le texte.
Le schéma suppose une structure suffisamment renseignée ; une formule brute ne permet pas ces conclusions.
Développement : projections, extrémités et reconnaissance
Passer de Fischer à une forme cyclique
La cyclisation conserve les configurations des centres préexistants si aucune réaction ne les modifie. Le seul nouveau centre concerné par l’anomérie est le carbone anciennement carbonylé, lorsqu’il devient stéréogène.
Pour dessiner une Haworth, il faut annoncer l’orientation du cycle et appliquer une convention cohérente. Mémoriser « droite devient bas » sans conserver l’orientation standard peut produire une inversion involontaire. La vérification consiste à revenir aux configurations relatives des substituants.
Une Haworth est une projection, pas une photographie plane. Les cycles pyranose adoptent des conformations non planes ; la disposition axiale ou équatoriale de chaque substituant influence la stabilité. Un changement de chaise ne change pas l’anomère tant que la configuration du carbone anomérique est conservée.
Extrémité réductrice et polymère ramifié
Un polysaccharide peut comporter une seule extrémité réductrice et de nombreuses extrémités non réductrices. La ramification crée de nouvelles chaînes accessibles sans créer automatiquement un nouveau carbone anomérique libre à chaque branche.
Dans le glycogène, la plupart des enzymes d’allongement et de mobilisation travaillent aux extrémités non réductrices. Une réserve compacte peut ainsi être utilisée rapidement sur plusieurs points. Le nombre d’extrémités a une conséquence cinétique et organisationnelle.
Un test réducteur appliqué à une grande chaîne ne mesure donc pas directement le nombre total de résidus glucose. Une molécule contenant des milliers de résidus peut ne posséder qu’une extrémité réductrice disponible.
Hydrolyse et spécificité
Une enzyme reconnaissant une liaison alpha(1→4) ne coupe pas nécessairement une liaison bêta(1→4), même si les deux relient les mêmes types d’atomes. Le site actif reconnaît une géométrie tridimensionnelle et stabilise un état de transition particulier.
La digestibilité d’un polymère dépend donc de sa stéréochimie, de son accessibilité et des enzymes présentes. Une formule globale ressemblant à celle d’un autre glucide ne suffit pas à prévoir son utilisation biologique.
Une hydrolyse complète d’un disaccharide libère ses oses constitutifs mais détruit l’information de liaison. Pour distinguer deux disaccharides composés des mêmes oses, il faut déterminer positions et configuration osidique.
Glycoprotéines et glycolipides
Des chaînes glucidiques peuvent être liées à des protéines ou à des lipides. Dans les N-glycosylations usuelles, le glucide est attaché à l’azote amidé d’une asparagine dans un contexte de séquence et de structure approprié. Dans de nombreuses O-glycosylations, il est attaché à l’oxygène d’une sérine ou thréonine.
Ces modifications participent au repliement, à la stabilité, au trafic et à la reconnaissance. Un même squelette protéique peut porter plusieurs formes de glycosylation ; la masse et les propriétés peuvent varier sans changement de séquence d’acides aminés.
La glycosylation enzymatique doit être distinguée de la glycation non enzymatique, où des sucres réagissent avec certains groupes de biomolécules. Les termes proches désignent des mécanismes différents.
Charges et hydratation
Les oses simples sont souvent neutres aux pH usuels, mais des dérivés comme acides uroniques, sucres phosphorylés ou sulfates portent des charges. Ces charges augmentent les interactions avec l’eau et les ions, tout en imposant des contraintes de transport membranaire.
Les glycosaminoglycanes peuvent retenir un milieu hydraté et contribuer à la résistance à la compression des matrices. Leur fonction ne s’explique pas par un stockage de glucose : elle découle de leur organisation, de leurs charges et de leurs interactions avec les protéines.
Cas d’intégration : compter les extrémités d’un polymère
Deux polymères fictifs contiennent chacun mille résidus de glucose liés en chaînes. Le premier est linéaire ; le second est ramifié et possède vingt extrémités non réductrices. Pourquoi leur masse similaire ne garantit-elle pas la même vitesse de mobilisation par une enzyme qui attaque les extrémités non réductrices ?
Résolution et discussion
Une enzyme reconnaissant une extrémité n’accède pas indifféremment à tous les résidus internes. La multiplication des extrémités peut permettre plusieurs attaques simultanées si des enzymes et des substrats auxiliaires sont disponibles. L’architecture du polymère influence donc sa mobilisation indépendamment du nombre total de glucoses.
Dans une molécule ramifiée de glycogène, on distingue de nombreuses extrémités non réductrices et une extrémité réductrice associée au cœur de la particule. Ajouter une branche ne crée pas nécessairement une nouvelle molécule indépendante. Le vocabulaire d’extrémité décrit une connectivité chimique, pas simplement un bout visible sur le dessin.
La glycogène phosphorylase ne franchit pas librement toutes les liaisons de branchement. Des activités de débranchement sont nécessaires à une dégradation complète. L’avantage d’un grand nombre de points d’attaque s’accompagne donc de contraintes enzymatiques spécifiques. Une vitesse vingt fois plus élevée ne peut pas être affirmée sur le seul comptage des extrémités : saturation enzymatique, accessibilité et régulation interviennent.
Ce stockage polymérique limite également le nombre de particules osmotiquement actives par rapport au même nombre de monomères libres. Le bénéfice osmotique et le bénéfice cinétique relèvent cependant de mécanismes différents. Une ramification modifie surtout l’organisation et l’accessibilité ; la polymérisation réduit le nombre de molécules indépendantes. Distinguer ces deux explications évite d’attribuer toute propriété du glycogène à sa seule forme arborescente.
Application : estimer une composition anomérique
Dans un modèle fictif limité à deux anomères A et B, leurs rotations spécifiques sont données comme +100 et +20 dans les mêmes conditions. Le mélange à l’équilibre donne +52. En supposant l’additivité, +52 = 100fA + 20(1 − fA), donc fA = 0,40 et fB = 0,60.
La grandeur mesurée est une moyenne de population. Elle ne signifie pas que chaque molécule possède une « configuration intermédiaire ». L’interconversion passe par l’ouverture puis la fermeture du cycle pour un hémiacétal libre ; l’appareil mesure l’évolution de la composition.
Les nombres choisis ne sont pas des constantes du glucose. Pour un ose réel, la présence d’autres formes cycliques ou ouvertes et les conditions de mesure limiteraient le modèle à deux états. Enfin, le signe positif de rotation n’établit ni la série D, ni l’anomérie alpha : ces conventions décrivent d’autres propriétés.
Approfondissement v0.4 : reconstruire un ose et compter ses extrémités
Une Fischer de référence explicite
Dans la Fischer conventionnelle du D-glucose, CHO est en haut ; les OH de C2, C3, C4 et C5 sont respectivement à droite, gauche, droite, droite. Le D vient du centre C5, le plus éloigné du carbonyle, et ne décrit pas séparément les quatre centres. Inverser seulement C2 donne le D-mannose ; inverser seulement C4 donne le D-galactose. Inverser tous les centres donne le L-glucose.
La cyclisation pyranose implique l’oxygène du OH de C5 et le carbonyle C1. Le cycle contient O5 puis C1 à C5, soit six atomes, tandis que C6 reste hors du cycle. Dans la Haworth standard avec O du cycle en haut à droite et C1 à droite, les OH à droite en Fischer deviennent orientés vers le bas et ceux à gauche vers le haut. Le CH2OH de C6 est vers le haut pour ce D-ose.
Alpha et bêta portent une relation
Dans cette convention du D-glucopyranose, l’OH anomérique alpha est opposé au CH2OH de référence, donc vers le bas ; bêta est du même côté, donc vers le haut. La règle relative est plus robuste que la direction sur la feuille. Une autre orientation du dessin ne transforme pas la configuration.
La fermeture du cycle ne change pas les configurations de C2 à C5. Une proposition de cyclisation qui inverse aussi C4 ne donne pas seulement « l’autre anomère » : elle a changé une information héritée de la forme ouverte. Pour vérifier un dessin, isoler le nouveau centre C1 et contrôler les quatre centres préexistants séparément.
Arbre ramifié et nombre de bouts
Pour un polymère glucidique unique, connecté et sans cycle, n résidus sont unis par n − 1 liaisons interrésidus. Si chaque branche supplémentaire est un embranchement simple créant un nouveau bout, le nombre d’extrémités non réductrices est b + 1 pour b branchements. Avec 99 résidus et 9 branchements simples, il existe donc 98 liaisons et 10 extrémités non réductrices.
Ce comptage ne crée pas dix extrémités réductrices : les centres anomériques des branches sont engagés dans leur attache. Une seule extrémité réductrice structurale subsiste dans cet arbre modèle ; elle peut elle-même être liée à un support comme dans la particule de glycogène. Le test chimique d’un bout réducteur disponible demande de vérifier cette liaison au cœur.
Après hydrolyse totale, on obtient 99 molécules séparées et autant de centres anomériques potentiellement libres. L’information de ramification a disparu ; le comptage avant et après hydrolyse répond à des questions différentes.
Exercices progressifs
1. D signifie-t-il dextrogyre ?
2. Quel est le carbone anomérique du glucose ?
3. Un pyranose possède-t-il forcément six carbones dans son cycle ?
4. Pourquoi le saccharose est-il non réducteur ?
5. Quel avantage fonctionnel donnent les branches du glycogène ?
6. Dans ce modèle, une rotation mesurée de +110 peut-elle correspondre à un mélange pur de A et B ?
7. Un glucane modèle sans cycle contient 50 résidus et 6 branchements simples. Combien a-t-il de liaisons interrésidus et d’extrémités non réductrices ?
Corrections argumentées
1. Non. D est une convention configurative ; le signe optique se mesure.
2. C1, ancien carbone de l’aldéhyde.
3. Non. Le cycle à six atomes contient notamment un oxygène ; il n’est pas formé de six carbones.
4. Les deux centres anomériques participent à la liaison osidique et ne sont pas libres pour l’ouverture habituelle.
5. Elles multiplient les extrémités non réductrices accessibles à la synthèse et à la dégradation enzymatiques.
6. Non, une moyenne pondérée de +20 et +100 est comprise entre ces deux valeurs. Il faudrait vérifier les conditions, la concentration, l’étalonnage ou la présence d’autres espèces, plutôt que calculer une fraction supérieure à un.
7. Un arbre connecté de 50 résidus comporte 49 liaisons. Chaque branchement simple ajoute une extrémité non réductrice à celle de la chaîne linéaire : 6 + 1 = 7. Ce résultat suppose une seule molécule connectée et la topologie annoncée.
Référence et périmètre
NCBI Bookshelf, How Cells Obtain Energy from Food pour le rôle des réserves glucidiques. Les développements structuraux et exercices sont originaux ; conventions locales à conserver dans les dessins.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, cyclisation et anomères. Exemples et calculs originaux.
Partie 2 · Lipides et organisation des membranes
Prérequis et objectifs
Connaître ester, amide, polarité et interactions hydrophobes. Le cours distingue les grandes familles lipidiques, explique l’assemblage en bicouche et relie composition, fluidité et perméabilité. Le mot « lipide » regroupe des structures variées, pas un polymère unique.
1. Acides gras
Un acide gras comporte une chaîne hydrocarbonée et un carboxyle. Un acide gras saturé ne possède pas de double liaison carbone-carbone ; un insaturé en possède une ou plusieurs. Les doubles liaisons cis introduisent généralement des coudes qui gênent l’empilement régulier.
La notation 18:1 indique dix-huit carbones et une double liaison, sans toujours préciser sa position ou sa géométrie. Une notation delta compte depuis le carboxyle ; une notation oméga compte depuis l’extrémité méthyle. Il faut conserver la convention pour comparer des molécules.
Des chaînes plus longues et plus saturées tendent à accroître les interactions de dispersion et la température de fusion. Ce sont des tendances de séries comparables ; une membrane complexe ne se résume pas à la température de fusion d’un seul lipide pur.
2. Réserve et membrane
Un triacylglycérol est un glycérol estérifié par trois acides gras. Globalement apolaire, il forme des réserves peu hydratées. Il n’est pas un constituant typique de la bicouche de la même façon qu’un phospholipide amphiphile.
Un glycérophospholipide comprend généralement deux chaînes acyles, un glycérol, un phosphate et une tête polaire. La phosphatidylcholine, la phosphatidyléthanolamine et la phosphatidylsérine diffèrent par cette tête et par leur charge nette selon le milieu.
Un sphingolipide repose sur une base sphingoïde. Le céramide associe cette base à un acide gras par une liaison amide. Ajouter différentes têtes donne sphingomyéline ou glycosphingolipides. Tous les lipides membranaires ne possèdent donc pas un squelette glycérol.
3. Cholestérol
Le cholestérol possède plusieurs cycles fusionnés, un OH et une courte chaîne hydrocarbonée. Il est amphiphile, avec une petite partie polaire par rapport à sa surface hydrophobe. Dans une membrane, son OH se situe près des têtes polaires et son noyau rigide s’insère parmi les chaînes.
Il modifie l’ordre et les mouvements des lipides. Son effet sur la fluidité dépend de la température et de la composition : il peut limiter certains mouvements à température élevée et empêcher un empilement trop ordonné à basse température. Dire qu’il « rigidifie toujours » serait incomplet.
Le cholestérol sert aussi de précurseur à d’autres molécules. Cette fonction métabolique ne doit pas être confondue avec son rôle physique dans la membrane.
4. Auto-assemblage et bicouche
Les molécules amphiphiles exposent leurs parties polaires à l’eau et limitent l’exposition de leurs parties apolaires. Selon leur géométrie et leurs conditions de concentration, elles peuvent former micelles, bicouches ou autres assemblages.
Les lipides à deux chaînes favorisent souvent des bicouches ; ceux dont la forme est plus conique peuvent favoriser des micelles ou des courbures. Une bicouche peut se refermer en vésicule pour éviter des bords exposant les chaînes à l’eau.
Les liaisons entre lipides voisins ne sont pas des liaisons covalentes fixes. La membrane reste dynamique : diffusion latérale et rotations sont possibles. Le passage spontané d’un phospholipide d’un feuillet à l’autre est généralement beaucoup plus lent et peut nécessiter des protéines.
5. Asymétrie et protéines
Les deux feuillets ne possèdent pas la même composition. Des enzymes et transporteurs maintiennent ou modifient cette asymétrie. L’exposition externe de certains lipides peut servir de signal, mais son interprétation dépend du contexte cellulaire.
Les protéines transmembranaires exposent des surfaces adaptées au cœur hydrophobe. Des segments en hélice alpha ou des tonneaux bêta peuvent traverser la membrane selon les familles. Les régions polaires doivent être satisfaites par leurs partenaires ou par un environnement aqueux, comme dans un canal.
Une membrane biologique n’est pas une solution uniforme de lipides et protéines libres. Cytosquelette, complexes et domaines transitoires limitent certains déplacements. Le modèle de mosaïque fluide est utile, mais ses composants ne diffusent pas tous de la même manière.
6. Perméabilité et expérience
Les petites molécules apolaires traversent plus facilement le cœur lipidique que les ions. Un ion fortement hydraté doit payer un coût énergétique élevé pour entrer dans ce milieu apolaire ; les canaux et transporteurs offrent des voies adaptées.
Une bicouche intacte peut donc séparer des compositions ioniques, à condition que les flux par protéines et les mécanismes de maintien soient pris en compte. La membrane n’est ni imperméable à tout ni perméable à tout.
Dans une expérience de fluorescence, un marquage lipidique peut renseigner sur diffusion ou organisation. Le fluorophore lui-même peut modifier le comportement ; un résultat dépend aussi de la température, de la composition et de l’échelle de temps.
| Molécule | Structure dominante | Fonction usuelle |
|---|---|---|
| Triacylglycérol | Trois chaînes acyles | Réserve |
| Phospholipide | Tête polaire et queues | Bicouche |
| Cholestérol | Noyau stéroïde et OH | Organisation membranaire |
| Glycosphingolipide | Céramide et glucide | Membrane et reconnaissance |
- Disposer les têtes dans l’eau
- Enfouir les chaînes
- Fermer les bords
- Insérer les protéines adaptées
- Maintenir l’asymétrie
Repères complémentaires, sans ordre ni lien de cause.
Le schéma simplifie l’assemblage ; dans la cellule, synthèse, trafic et remodelage ajoutent des mécanismes actifs.
Développement : nomenclature lipidique et mouvement dans la membrane
Lire delta et oméga
Pour un acide gras 18:1 delta9, la double liaison se trouve entre les carbones 9 et 10 en comptant le carbone carboxylique comme numéro 1. Depuis l’extrémité méthyle, sa première insaturation est à neuf carbones : il appartient à la famille oméga-9.
Dans un polyinsaturé, l’indication oméga identifie la première double liaison depuis l’extrémité méthyle, mais ne détaille pas toutes les positions. Une notation complète reste nécessaire pour reconstruire la structure.
La géométrie cis ou trans doit aussi être précisée. Une chaîne trans peut s’empiler plus régulièrement qu’une chaîne cis comparable. Le nombre de doubles liaisons ne suffit donc pas à prédire toutes les propriétés physiques.
Température de transition
Une bicouche peut passer d’un état plus ordonné à un état plus fluide sur une plage dépendant de sa composition. Les chaînes saturées longues favorisent souvent l’ordre ; les insaturations cis réduisent généralement l’empilement.
Dans un mélange complexe, les transitions sont élargies et les interactions entre lipides deviennent importantes. Une membrane cellulaire n’a pas nécessairement une unique température de fusion nette comparable à celle d’un corps pur.
Le cholestérol peut atténuer certaines variations abruptes et modifier perméabilité et ordre. Son effet ne se résume pas à accélérer ou ralentir toutes les diffusions de la même façon.
Diffusion latérale et FRAP
Dans une expérience de récupération de fluorescence après photoblanchiment, on marque des molécules, on blanchit une petite zone puis on observe le retour du signal. Des molécules fluorescentes non blanchies diffusent vers la zone, ce qui renseigne sur mobilité et fraction mobile.
Une récupération rapide suggère une mobilité importante dans les conditions observées. Une récupération incomplète peut refléter une fraction immobilisée ou des échanges trop lents sur la durée de mesure. Elle ne prouve pas que la membrane entière soit solide.
Le marquage, la taille de la zone, le cytosquelette et les interactions spécifiques influencent le résultat. Comparer deux courbes exige des protocoles compatibles.
Asymétrie entretenue
Le passage d’une tête polaire à travers le cœur hydrophobe coûte de l’énergie ; le flip-flop spontané de nombreux phospholipides est donc lent. Des flippases, floppases ou scramblases modifient cette répartition selon leur mécanisme.
Certaines utilisent de l’énergie pour entretenir une asymétrie, tandis que d’autres facilitent un rééquilibrage moins directionnel. Dire « toutes les protéines de redistribution consomment ATP » serait faux.
L’exposition d’un lipide normalement enrichi du côté interne peut servir de signal de reconnaissance. Pour l’interpréter, il faut connaître le type cellulaire et les autres observations : un marqueur isolé ne résume pas toute l’histoire de la cellule.
Protéines périphériques et intégrales
Une protéine intégrale possède des interactions fortes avec la région hydrophobe ou des ancrages adaptés ; son extraction nécessite souvent un détergent. Une protéine périphérique peut être associée à une tête lipidique ou à une autre protéine sans traverser la bicouche.
Un ancrage lipidique covalent relie une protéine à une membrane sans exiger qu’une longue hélice traverse le cœur. Plusieurs modes d’association coexistent donc.
Le choix d’un détergent pour purifier une protéine membranaire peut changer sa conformation et son activité. La micelle obtenue ne reproduit pas toutes les contraintes de la bicouche native, notamment courbure, pression latérale et composition spécifique. Une activité conservée dans un extrait doit être confirmée dans un système pertinent pour la question.
Cas d’intégration : suivre la mobilité dans une membrane
Une petite région d’une membrane portant des lipides fluorescents est photoblanchie. La fluorescence réapparaît progressivement dans cette région, sans synthèse de nouvelles molécules pendant l’expérience. Quelle propriété cette récupération explore-t-elle ? Peut-elle démontrer un passage rapide d’un feuillet à l’autre ?
Résolution et discussion
Des molécules fluorescentes non blanchies peuvent diffuser latéralement depuis les régions voisines vers la zone observée. La récupération soutient donc une mobilité dans le plan de la membrane. Les molécules blanchies ne redeviennent pas nécessairement fluorescentes : elles sont remplacées localement dans le champ observé par des molécules encore détectables.
Le temps et l’amplitude de récupération renseignent sur une mobilité apparente et une fraction mobile, sous les hypothèses du modèle expérimental. Des interactions avec le cytosquelette, des domaines membranaires ou des obstacles peuvent ralentir certains constituants. Une membrane fluide ne signifie pas que tous ses composants possèdent la même mobilité ni que son organisation soit parfaitement homogène.
La diffusion latérale ne démontre pas un mouvement transversal entre feuillets. Le passage spontané d’une tête polaire à travers le cœur hydrophobe est généralement défavorable pour de nombreux phospholipides. Des protéines spécialisées participent à la redistribution ou au maintien de l’asymétrie. Il faut une expérience distinguant les deux faces pour étudier ce déplacement.
La température et la composition lipidique peuvent modifier le résultat. Des chaînes insaturées cis perturbent l’empilement régulier, tandis que le cholestérol possède des effets dépendant du régime physique. Résumer son rôle par « fluidifie toujours » serait inexact. L’expérience de mobilité relie ainsi une structure moléculaire à une mesure, mais elle exige de préciser le constituant marqué, la durée, la température et la géométrie analysée avant de généraliser à toute la membrane.
Application : calculer une fraction mobile en FRAP
Après correction du fond et du photoblanchiment pendant l’acquisition, une zone membranaire présente une fluorescence de 100 avant blanchiment, de 20 immédiatement après, puis atteint un plateau à 68. La récupération possible perdue au blanchiment vaut 100 − 20 = 80 unités. La récupération observée vaut 68 − 20 = 48 unités.
La fraction mobile apparente vaut donc 48/80 = 0,60, soit 60 %. Diviser 68 par 100 oublierait la fluorescence qui n’avait pas été blanchie. Le plateau informe sur la part capable de renouveler le signal dans les conditions de l’expérience ; le temps de récupération renseigne sur sa mobilité avec un modèle géométrique adapté.
Un plateau bas peut résulter d’immobilisation, de confinement ou d’un temps d’observation trop court. Le nombre calculé est donc une fraction mobile apparente du marqueur étudié, pas une mesure de la fluidité de tous les composants ni une preuve de passage entre feuillets.
Lecture visuelle : FRAP : distinguer vitesse de récupération et fraction mobile
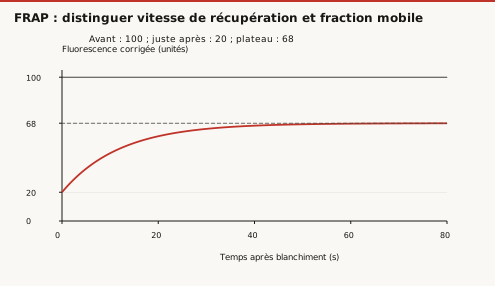
Question de lecture. Une récupération plus rapide prouve-t-elle une fraction mobile plus grande ?
Correction. Non : la constante de temps décrit la cinétique, le plateau décrit une amplitude de récupération. Les deux paramètres répondent à des questions différentes.
Approfondissement v0.4 : diffusion, géométrie et identité lipidique
Lire les liaisons avant de compter les chaînes
Deux chaînes hydrophobes ne suffisent pas à définir un glycérophospholipide. Dans une phosphatidylcholine classique, les chaînes acyles sont liées au glycérol par deux esters. Dans la sphingomyéline, l’une des longues chaînes appartient à la base sphingoïde, l’autre est apportée par un acide gras lié par une amide. Une même tête phosphocholine peut donc surmonter deux architectures différentes.
Une hydrolyse sélective d’esters ne traite pas nécessairement de la même façon une liaison amide. En raisonnant sur les produits, distinguer l’acide gras libéré, le squelette restant et la tête polaire. Un classement « phospholipide = deux esters » efface les sphingophospholipides et conduit à de faux bilans de dégradation.
Diffuser dans un plan
Pour une diffusion brownienne isotrope libre en deux dimensions, le déplacement quadratique moyen vérifie ⟨r²⟩ = 4Dt. Le déplacement typique croît comme la racine du temps, pas proportionnellement au temps. Avec D = 0,50 µm²/s et t = 2,0 s, ⟨r²⟩ = 4,0 µm², donc sa racine vaut 2,0 µm.
Ce chiffre ne signifie pas que toutes les molécules parcourent exactement 2 µm. Il décrit une statistique de trajectoires. Une molécule peut parcourir un chemin tortueux très long tout en finissant près de son point de départ ; déplacement et longueur totale du chemin sont différents.
Taille de zone et FRAP
Un temps caractéristique de récupération dominé par diffusion varie comme L²/D à géométrie comparable. Doubler le rayon d’une zone blanchie multiplie donc approximativement par quatre le temps nécessaire, si D reste identique. Deux courbes de FRAP ne peuvent être comparées comme deux fluidités si les tailles de zones diffèrent sans correction.
Le coefficient numérique dépend de la forme de la zone et du modèle de blanchiment. Employer directement t1/2 = L²/(4D) comme identité universelle de FRAP serait injustifié : la relation du déplacement libre n’est pas automatiquement la solution complète de la récupération d’une région.
Reconnaître un confinement
Si ⟨r²⟩ augmente d’abord puis atteint un plateau, un confinement dans un domaine devient une hypothèse plausible. Si la fluorescence récupère partiellement, cela peut aussi refléter des liaisons transitoires ou une réserve extérieure limitée. Il faut relier temps d’observation, espace exploré et nature du marqueur avant de qualifier une fraction d’immobile.
La membrane reste un matériau organisé : diffusion latérale, rotation et passage entre feuillets possèdent des barrières différentes. Une mobilité élevée dans le plan ne rend pas une tête chargée spontanément soluble dans le cœur apolaire.
Exercices progressifs
1. Un triacylglycérol possède-t-il une grande tête polaire chargée ?
2. Une double liaison cis favorise-t-elle l’empilement régulier de chaînes ?
3. Le céramide contient-il une liaison amide ?
4. Le cholestérol rigidifie-t-il toujours une membrane ?
5. Pourquoi un ion traverse-t-il difficilement une bicouche lipidique seule ?
6. Deux membranes ont la même fraction mobile mais des demi-temps de récupération différents. Ont-elles nécessairement la même mobilité ?
7. Pour une molécule diffusant librement en 2D à D = 0,20 µm²/s, quel temps donne un déplacement quadratique moyen de 16 µm² ? Que devient ce temps si la distance typique double ?
Corrections argumentées
1. Non. Sa structure est largement hydrophobe et adaptée au stockage.
2. Généralement non. Le coude gêne l’empilement et favorise la fluidité dans les comparaisons usuelles.
3. Oui, entre un acide gras et la base sphingoïde.
4. Non. Son effet dépend du régime de température et de la composition.
5. Il doit quitter une hydratation favorable et pénétrer un milieu apolaire, ce qui coûte beaucoup d’énergie.
6. Non. Une même proportion peut récupérer avec des vitesses différentes. La fraction mobile décrit l’amplitude accessible, tandis que le temps de récupération dépend notamment de la diffusion et de la géométrie de la zone blanchie.
7. t = 16/(4 × 0,20) = 20 s. Doubler la racine de ⟨r²⟩ multiplie ⟨r²⟩ par quatre : le temps devient 80 s. Cette relation suppose une diffusion libre de D constant, sans confinement.
Références et périmètre
Structure of lipid bilayers, NCBI PMC et lipid bilayer membrane and protein constituents, NCBI PMC. Cours original ; pas d’inférence clinique à partir de ces seules propriétés.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, composants et structure membranaire. Exemples et calculs originaux.
Partie 3 · Nucléotides, vitamines et coenzymes
Prérequis et objectifs
Connaître glucides, phosphates et oxydoréduction. Ce cours organise les petites molécules qui portent information, énergie, électrons ou groupes chimiques. L’objectif est de distinguer leur structure et leur fonction, sans assimiler toutes les vitamines à des carburants.
1. Base, nucléoside et nucléotide
Une base azotée associée à un pentose forme un nucléoside. L’ajout d’un ou plusieurs phosphates forme un nucléotide. Adénine et adénosine ne sont donc pas synonymes : l’adénosine comprend le sucre.
Les purines comprennent adénine et guanine ; les pyrimidines comprennent cytosine, thymine et uracile. Le ribose possède un OH en position 2′ ; le désoxyribose de l’ADN ne le possède pas. Les positions du sucre portent un prime pour les distinguer des positions de la base.
Dans les acides nucléiques, des liaisons phosphodiester relient les positions 3′ et 5′. La chaîne possède une polarité ; sa séquence se lit conventionnellement 5′ vers 3′. Les phosphates contribuent à sa charge négative.
2. ATP et transfert de groupes
L’ATP comprend adénine, ribose et trois phosphates. Les deux liaisons entre phosphates sont des liaisons phosphoanhydride ; la liaison au ribose est un phosphoester. L’hydrolyse ATP → ADP + phosphate et celle ATP → AMP + pyrophosphate n’ont pas le même bilan.
L’ATP peut participer au transfert d’un groupe phosphoryle ou d’un groupe adénylyle. Son utilité dépend du couplage mécanistique : une réaction utilise un intermédiaire activé, une conformation ou un transport lié au cycle nucléotidique.
La variation de Gibbs réelle dépend des concentrations et du milieu, notamment des interactions avec Mg2+. La valeur standard n’est pas une énergie fixe contenue dans une liaison isolée. Une hydrolyse favorable résulte de la comparaison complète entre réactifs et produits.
GTP, UTP et CTP remplissent également des fonctions spécialisées : traduction et commutateurs moléculaires pour GTP, activation de sucres pour UTP, certaines synthèses lipidiques pour CTP. Les nucléotides ne servent donc pas uniquement à fabriquer ADN et ARN.
3. Cofacteur et coenzyme
Un cofacteur est une composante non protéique nécessaire à l’activité de certaines enzymes. Il peut s’agir d’un ion métallique ou d’une molécule organique. Un coenzyme est organique ; certains diffusent comme cosubstrats, d’autres restent étroitement associés comme groupes prosthétiques.
L’apoenzyme désigne la partie protéique privée du cofacteur nécessaire ; l’holoenzyme correspond à l’ensemble fonctionnel dans cette terminologie. Un métal peut stabiliser une charge, orienter un substrat ou participer à une réaction redox.
Une vitamine est un composé organique nécessaire en petites quantités que l’organisme ne synthétise pas suffisamment dans les conditions considérées. Plusieurs vitamines deviennent des coenzymes ; toutes n’agissent pas de la même manière.
4. Transporteurs d’électrons
NAD+ accepte un hydrure lors de nombreuses oxydations et devient NADH. NADP+ possède un phosphate supplémentaire qui modifie surtout la reconnaissance enzymatique. Il n’apporte pas un électron de plus que NAD+.
Les pools NAD+/NADH et NADP+/NADPH sont maintenus dans des états adaptés à leurs usages. Dans une description générale, NAD+ intervient beaucoup dans les oxydations cataboliques, NADPH dans les réductions biosynthétiques et les défenses réductrices. Il existe des exceptions et des compartiments distincts.
FAD, issu de la riboflavine, peut participer à des transferts d’un ou deux électrons selon le contexte. Il est souvent étroitement associé à l’enzyme. Le potentiel dépend de l’environnement protéique : FAD n’est pas un transporteur libre universel avec un comportement identique dans toute enzyme.
5. Transporteurs de groupes
| Précurseur ou coenzyme | Groupe ou fonction majeure | Exemple de raisonnement |
|---|---|---|
| Thiamine, TPP | Stabilisation d’intermédiaires carbonés | Décarboxylation d’alpha-cétoacides |
| Riboflavine, FAD/FMN | Transferts redox | Oxydoréductases |
| Niacine, NAD(P) | Transferts redox | Oxydation ou réduction de substrats |
| Pantothénate, CoA | Groupes acyle | Acétyl-CoA |
| Vitamine B6, PLP | Chimie des acides aminés | Transamination |
| Biotine | CO2 activé | Carboxylation |
| Folates | Unités à un carbone | Synthèse de nucléotides |
| Vitamine B12 | Réactions spécifiques | Méthionine synthase, méthylmalonyl-CoA mutase |
Ce tableau relie molécules et mécanismes. Il n’est pas un guide de supplémentation et ne remplace pas les caractéristiques détaillées des voies.
La CoA porte un thiol permettant la formation de thioesters. Le phosphate de l’ATP peut aider à activer un substrat ; le groupe acyle n’est pas pour autant devenu un phosphate. Suivre le groupe effectivement transféré est plus instructif que mémoriser seulement le nom du coenzyme.
6. Déficit et interprétation mécanistique
Si un coenzyme manque, plusieurs enzymes qui l’utilisent peuvent être affectées. La conséquence ne se réduit pas toujours à l’accumulation d’un seul substrat : les voies sont connectées, compartimentées et régulées.
Une activité diminuée peut venir d’un déficit en cofacteur, d’une baisse de quantité d’enzyme, d’une inhibition ou d’une altération de structure. Une expérience ajoutant le cofacteur peut tester une hypothèse, mais un retour d’activité doit être interprété avec les témoins et les conditions.
- Identifier sa structure
- Repérer le groupe réactif
- Déterminer ce qu’il transporte
- Localiser les enzymes utilisatrices
- Relier au bilan de voie
Schéma de principe : lire les conditions et les limites dans le texte.
Le schéma évite d’associer une vitamine à une seule réaction ou d’assimiler toutes les petites molécules énergétiques.
Développement : suivre un coenzyme au cours d’un cycle catalytique
Cosubstrat ou groupe prosthétique
Lorsqu’une déshydrogénase utilise NAD+, celui-ci peut se fixer, recevoir un hydrure puis quitter l’enzyme sous forme NADH. Il est chimiquement modifié et doit être régénéré ailleurs ; on le traite comme un cosubstrat dans ce cycle.
Un FAD étroitement lié peut rester sur la même enzyme pendant sa réduction puis sa réoxydation. Le bilan de voie parle parfois d’un FADH2 produit, mais le mécanisme réel transfère ensuite les électrons à un autre accepteur sans nécessairement libérer FADH2.
Cette distinction explique pourquoi ajouter du NAD+ à un milieu peut modifier directement certaines vitesses, tandis qu’un cofacteur lié ne se comporte pas toujours comme un substrat diffusible à concentration variable.
Mécanisme du PLP
Le PLP forme une liaison de type imine avec un groupe amino dans plusieurs enzymes. Son système conjugué stabilise des intermédiaires lors de transformations au voisinage du carbone alpha.
Selon l’orientation imposée par l’enzyme, des réactions différentes deviennent possibles : transamination, décarboxylation ou autres transformations d’acides aminés. Le même coenzyme n’impose donc pas une seule réaction ; le site actif oriente quel lien est rompu ou formé.
Dans une transamination, le groupe amino est transféré via une forme aminée du coenzyme, puis donné à un cétoacide. Le PLP est régénéré et n’est pas consommé en quantité équimolaire au produit à chaque tour.
Biotine et CO2 activé
La biotine est souvent liée de manière covalente à une lysine enzymatique et agit comme bras mobile. Une carboxylation utilise l’énergie d’ATP pour activer le bicarbonate et charger la biotine, puis transférer le groupe carboxyle au substrat.
La présence de biotine explique un type de chimie, mais le bilan exact dépend de l’enzyme : pyruvate carboxylase et acétyl-CoA carboxylase n’ont ni le même substrat ni la même fonction métabolique.
Le CO2 peut être incorporé transitoirement puis libéré dans une étape suivante. Il faut suivre les carbones pour savoir s’il appartient au produit net, comme dans la différence entre anaplérose et certaines condensations lipidiques.
Folates et niveaux d’oxydation
Les dérivés du tétrahydrofolate transportent des unités à un carbone sous plusieurs états d’oxydation. Méthyle, méthylène et formyle ne sont pas des groupes équivalents ; ils servent à des réactions différentes.
La synthèse des purines et celle du thymidylate utilisent ainsi des formes spécifiques. Une voie doit pouvoir régénérer les formes nécessaires ; la quantité totale de folate ne décrit pas à elle seule toutes les interconversions.
La vitamine B12 intervient dans certaines réactions liées au transfert de méthyle et au métabolisme du méthylmalonyl-CoA. Son rôle ne se réduit donc pas à la production d’ADN, même si certains effets de déficit peuvent concerner les cellules proliférantes.
Vitamines non assimilables à des coenzymes énergétiques
La vitamine C participe notamment au maintien d’états redox dans certaines hydroxylations ; les vitamines A, D, E et K remplissent des fonctions variées de signalisation, protection ou modification de protéines. Les classer toutes comme fournisseurs d’ATP serait incorrect.
Liposolubilité et hydrosolubilité influencent absorption, transport et stockage, mais ne donnent pas une permission de supplémentation sans limite. Dans ce cours, ces catégories servent seulement à comprendre la biochimie.
Contrôle expérimental
Si l’ajout d’un cofacteur restaure l’activité d’un extrait, cela soutient une limitation du système dans ces conditions. Il faut vérifier que l’ajout ne modifie pas aussi pH, force ionique ou signal de détection. Un effet dans un tube ne suffit pas à conclure à un déficit nutritionnel de l’organisme.
Cas d’intégration : suivre des électrons avec un signal optique
Une réaction enzymatique transforme un substrat oxydable en produit en réduisant une molécule de NAD+ en NADH par événement. L’absorbance à 340 nm augmente. Dans une cuve de 1 cm, sa pente vaut 0,0622 par minute. En utilisant un coefficient d’extinction du NADH de 6 220 L·mol-1·cm-1 pour l’exercice, calculer la vitesse de formation et discuter les contrôles.
Résolution et discussion
Beer-Lambert donne dA/dt = ε l dc/dt. La vitesse vaut 0,0622/6 220 = 10-5 mol·L-1·min-1, soit 10 µmol·L-1·min-1. La stœchiométrie une pour une relie cette vitesse à celle de consommation du substrat, à condition qu’aucune autre réaction ne produise ou ne consomme du NADH dans le mélange.
Dans un volume réactionnel de 2,00 mL, la production vaut 0,0200 µmol/min. La vitesse exprimée par litre et la quantité transformée par minute sont donc différentes ; le volume ne doit intervenir qu’au moment de passer de l’une à l’autre.
Le NADH n’est pas une réserve d’électrons isolée de son contexte : son oxydation doit être couplée à la réduction d’un accepteur. Une absence d’accepteur ou une accumulation de produits peut modifier le flux. Le coenzyme participe à un cycle de formes oxydée et réduite ; il n’est pas nécessairement consommé définitivement dans le bilan global de toutes les voies associées.
Un blanc sans enzyme explore un changement spontané du signal. Un témoin sans substrat recherche d’autres réactions du mélange. Il faut aussi vérifier que l’enzyme étudiée, plutôt qu’une réaction auxiliaire trop lente, contrôle le signal. Une mesure couplée ne devient interprétable qu’après cette vérification de la chaîne de détection.
Application : bilan d’une activation par adénylation
L’activation d’un acide gras peut se décomposer en deux étapes comptables : acide gras + ATP → acyl-AMP + PPi, puis acyl-AMP + CoA-SH → acyl-CoA + AMP. L’AMP transitoirement associé au groupe acyle joue un rôle d’activation ; il ne reste pas dans le produit acyl-CoA.
Le bilan est acide gras + CoA-SH + ATP → acyl-CoA + AMP + PPi, avec les protons selon la convention d’ionisation. L’hydrolyse ultérieure de PPi en deux Pi favorise la progression globale. Une molécule d’ATP a disparu, mais la régénération d’ATP depuis AMP représente deux équivalents de phosphorylation.
La CoA transporte ensuite le groupe acyle ; lorsqu’il est transféré à un autre accepteur, CoA-SH est libérée et peut être réutilisée. Dire qu’un coenzyme participe au bilan d’une étape ne signifie donc pas qu’il soit détruit définitivement à chaque tour du réseau.
Approfondissement v0.4 : coenzymes catalytiques et bilans de matière
Une petite quantité peut porter un grand flux
Dans un montage où S + NAD+ → P + NADH est couplé à NADH + X → NAD+ + XH, le NAD+ se régénère. Le bilan global est S + X → P + XH. La somme [NAD+] + [NADH] reste constante si aucune synthèse, dégradation ou sortie n’intervient, mais la quantité cumulée de produit peut dépasser largement ce stock.
Avec un pool total de 0,10 mmol/L de coenzyme, produire 5,0 mmol/L de P exige cinquante cycles moyens par molécule de coenzyme. Sans réaction de régénération, une quantité initiale de 0,10 mmol/L de NAD+ ne pourrait pas accepter les électrons de plus de 0,10 mmol/L de S dans le bilan un pour un. La distinction stock/flux explique le rôle des coenzymes sans les traiter comme une source illimitée d’électrons.
Décomposer une transamination
Dans une transamination modèle, alanine + alpha-cétoglutarate ⇌ pyruvate + glutamate. Le carbone de l’alanine devient le squelette du pyruvate, tandis que le groupe amino est transféré vers l’alpha-cétoglutarate. Aucun ammonium libre n’apparaît dans ce bilan net.
Le PLP participe via une forme aminée, puis retrouve son état initial au second demi-cycle. Il n’est pas transformé irréversiblement en glutamate. Une expérience au marqueur azoté peut donc suivre l’azote d’alanine vers glutamate sans que le coenzyme apparaisse comme produit final. Une désamination libérant de l’ammonium répond à un autre bilan.
Reconnaissance et fonction redox
NADH et NADPH portent la même transformation redox principale du noyau nicotinamide. Le phosphate supplémentaire ne représente pas un électron supplémentaire ; il fournit un déterminant de reconnaissance. Une enzyme peut utiliser préférentiellement l’un des deux, ce qui permet de maintenir des pools aux rôles distincts.
Remplacer expérimentalement NADH par NADPH à même concentration ne garantit donc pas une activité identique. Une absence de réaction peut indiquer une mauvaise reconnaissance plutôt qu’une impossibilité thermodynamique du transfert d’électrons. Il faut séparer identité du coenzyme, état oxydé/réduit et spécificité de l’enzyme.
Activer ne signifie pas oxyder
L’activation d’un acide gras en acyl-CoA change le groupe lié au carbonyle sans diminuer ni augmenter le nombre de carbones. Elle ne réduit pas directement NAD+ ou FAD. À l’inverse, une déshydrogénation transfère des équivalents réducteurs sans nécessairement consommer ATP. Pour chaque flèche métabolique, écrire séparément bilan carboné, bilan redox et bilan nucléotidique : les trois comptes évitent d’attribuer tous les changements à une vague dépense d’énergie.
Exercices progressifs
1. Quelle différence entre adénine et adénosine ?
2. Un nucléoside contient-il nécessairement un phosphate ?
3. Le phosphate supplémentaire de NADP+ augmente-t-il le nombre d’électrons transférés ?
4. Quel coenzyme transporte des groupes acyle via un thiol ?
5. Une diminution d’activité enzymatique prouve-t-elle un déficit vitaminique ?
6. Activer 3 mmol d’acides gras par cette voie consomme combien de molécules-moles d’ATP et d’équivalents ATP ?
7. Un système fermé contient 0,20 mmol/L de NAD total, dont 0,15 mmol/L oxydé. Sans régénération, quelle quantité supplémentaire maximale de produit une déshydrogénase un pour un peut-elle former ?
Corrections argumentées
1. L’adénine est une base ; l’adénosine associe cette base au ribose.
2. Non. Le phosphate définit le passage au nucléotide.
3. Non. Il participe surtout à la reconnaissance par les enzymes et à la séparation fonctionnelle des pools.
4. La coenzyme A, sous forme de thioesters comme l’acétyl-CoA.
5. Non. Quantité d’enzyme, inhibiteurs, milieu ou structure peuvent aussi expliquer le résultat.
6. 3 mmol d’ATP sont transformées en AMP ; le coût conventionnel est 6 mmol d’équivalents ATP. Le comptage des molécules consommées et celui des phosphorylations nécessaires à leur régénération répondent à deux questions distinctes.
7. Au plus 0,15 mmol/L dans ce bilan, car seule la fraction NAD+ peut accepter de nouveaux électrons. Le stock de 0,05 mmol/L de NADH est déjà réduit. L’équilibre ou d’autres limitations peuvent encore réduire ce maximum stœchiométrique.
Référence et périmètre
NCBI Bookshelf, énergie cellulaire et transporteurs activés. Les liens vitamine-réaction sont présentés comme fondements biochimiques, sans prescription ni diagnostic.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, glycolyse et coenzymes. Exemples et calculs originaux.
Ce cours, en cartes de révision
Lire un cours ne suffit pas à le retenir. Dépose ce cours, ou le poly de ta fac, dans Ossik : il en sort des cartes sourcées à la page, qu’il te ressort au bon moment.