Ce cours réunit 6 parties : 1. Du fonctionnement à la mesure : raisonner sans réduire la personne à une lésion ; 2. Forces, moments et énergie dans le mouvement humain ; 3. Muscle, tendon, cartilage et os : mécanique et adaptation ; 4. Commande motrice, proprioception, posture et apprentissage ; 5. Marche, transferts et préhension : analyse de tâches ; 6. Effort et limitation fonctionnelle : une physiologie intégrée.
Partie 1 · Du fonctionnement à la mesure : raisonner sans réduire la personne à une lésion
Prérequis et objectifs
Prérequis : anatomie descriptive, physiologie et statistiques élémentaires.
Objectifs : distinguer observation et explication ; choisir une mesure ; relier corps, tâche et environnement.
Une fonction se manifeste dans une situation
La capacité d’un muscle à produire une force ne suffit pas à décrire ce qu’une personne accomplit. Une tâche exige une coordination entre structures, commande, énergie, informations sensorielles et environnement. Monter une marche nécessite une force des membres inférieurs, mais aussi un déplacement du centre de masse, un équilibre, une perception de la hauteur et une stratégie adaptée. Le résultat ne peut être attribué automatiquement au muscle le plus visible.
Le raisonnement fonctionnel commence donc par une question concrète : quelle tâche, dans quelles conditions, avec quelle difficulté observable ? Il distingue ensuite les mécanismes possibles. « La montée est lente » décrit une observation. « La montée est lente à cause d’une faiblesse du quadriceps » est une hypothèse exigeant d’autres données. Confondre les deux rend le raisonnement circulaire.
Corps, activité et participation
La Classification internationale du fonctionnement de l’OMS fournit un vocabulaire distinguant fonctions et structures corporelles, activités, participation et facteurs contextuels. Une déficience porte sur une fonction ou une structure ; une limitation d’activité concerne l’exécution d’une tâche ; une restriction de participation concerne l’implication dans une situation de vie. L’environnement peut faciliter ou entraver le fonctionnement. Ce cadre descriptif ne remplace pas une explication mécanistique de chaque difficulté.
Une amplitude articulaire réduite relève du niveau corporel. Une difficulté à saisir un objet relève de l’activité. Renoncer à un rôle professionnel parce que les outils sont inaccessibles concerne la participation. Un manche adapté peut améliorer l’activité sans modifier immédiatement l’amplitude. Inversement, une amplitude améliorée ne garantit pas une participation accrue si l’environnement reste inaccessible.
Ces distinctions évitent deux raccourcis : tout expliquer par la lésion et tout expliquer par le contexte. Une structure peut limiter réellement une action ; un contexte peut rendre cette même limitation plus ou moins importante. Le modèle doit conserver les deux niveaux et examiner leurs interactions.
Capacité et performance
Une capacité est évaluée dans des conditions définies, parfois standardisées. La performance décrit ce qui se passe dans l’environnement réel. Une personne peut réussir une tâche dans une salle calme avec un matériel connu mais rencontrer une difficulté dans un lieu encombré, sous contrainte de temps ou avec une double tâche. L’écart ne prouve pas un manque d’effort : les exigences ont changé.
Un test standardisé est utile parce qu’il réduit certaines variations et permet des comparaisons. Il perd parfois une partie de la complexité quotidienne. Une observation écologique conserve cette complexité mais isole moins facilement une cause. Les deux approches répondent à des questions complémentaires.
Mesurer un construit
Un construit est une propriété que l’on cherche à connaître, comme force, endurance, équilibre ou dextérité. Le test n’est qu’un indicateur. Tenir debout longtemps peut dépendre d’équilibre, de fatigue, de douleur, de motivation et de compréhension. Il faut préciser pourquoi la mesure représente le construit ciblé et quels facteurs peuvent la modifier.
La validité examine si les interprétations tirées de la mesure sont justifiées. La fidélité décrit la reproductibilité dans des conditions comparables. Un appareil peut donner toujours le même chiffre mais mesurer systématiquement autre chose que ce qui est attendu. À l’inverse, une mesure pertinente mais très variable peut être difficile à utiliser pour suivre une petite évolution.
La sensibilité au changement est la capacité à détecter une évolution pertinente. Elle n’est pas la sensibilité diagnostique d’un test binaire. Un instrument présentant un effet plafond ne distingue plus les progrès des personnes déjà proches du maximum ; un effet plancher empêche de différencier des situations très limitées.
| Propriété | Question | Exemple de problème |
|---|---|---|
| Validité | Mesure-t-on ce qu’on prétend ? | Vitesse influencée surtout par une consigne différente |
| Fidélité | Le résultat est-il reproductible ? | Position de départ instable |
| Sensibilité au changement | Une évolution est-elle détectable ? | Score déjà au maximum |
| Interprétabilité | Que signifie l’écart ? | Unité ou seuil de pertinence absent |
Erreur, variation et changement réel
Une différence entre deux mesures peut venir d’un changement réel, d’une variation biologique ou d’une erreur. Pour la réduire, on standardise instrument, position, consigne, moment, répétitions et conditions de repos. La standardisation ne doit toutefois pas rendre la tâche si artificielle qu’elle ne répond plus à la question.
La moyenne de répétitions peut réduire certaines erreurs aléatoires, mais pas un biais systématique. Si une balance ajoute toujours deux kilogrammes, multiplier les mesures ne corrige pas le défaut. Une calibration et une vérification de méthode sont nécessaires. Le même principe vaut pour une mesure d’angle dont le repère anatomique est mal choisi.
Si l’erreur standard de mesure est SEM, une formule usuelle de changement minimal détectable à 95 % est 1,96 × √2 × SEM, sous hypothèses d’erreurs indépendantes et d’un modèle adapté. Avec SEM = 2 unités, le seuil vaut environ 5,54 unités. Un changement de trois unités peut être réel, mais il n’est pas clairement distinguable de l’erreur selon ce modèle. Un changement détectable n’est pas automatiquement important pour la personne.
Comparer correctement
Une comparaison doit conserver les unités et le dénominateur. Une force absolue en newtons, une force rapportée à la masse et un couple en N·m ne sont pas interchangeables. Normaliser peut faciliter certaines comparaisons mais introduit ses propres hypothèses. Diviser systématiquement par la masse ne corrige pas toutes les différences de taille, géométrie ou composition corporelle.
Le côté opposé peut servir de référence dans certains exercices, mais il n’est pas nécessairement normal ou identique avant toute modification. Une symétrie parfaite ne garantit pas une bonne fonction si les deux côtés sont faibles. Une asymétrie n’est pas automatiquement pathologique si la tâche et l’histoire créent des spécialisations.
Les valeurs de référence décrivent une distribution dans une population. Elles ne fixent pas à elles seules une frontière universelle entre fonctionnement acceptable et maladie. L’âge, les habitudes, la méthode et la population de référence doivent être compatibles avec l’interprétation.
Construire et tester des hypothèses
Face à une difficulté de lever de chaise, on peut proposer une limitation de force, une amplitude insuffisante, une stratégie de tronc, une peur de déséquilibre ou une contrainte liée à la hauteur du siège. On recherche ensuite une observation qui distingue les hypothèses. Modifier la hauteur du siège change les exigences mécaniques ; comparer une mesure de force indépendante apporte une autre information.
Une amélioration après modification de consigne montre que la performance dépend de cette consigne. Elle ne prouve pas que la structure était parfaitement intacte ni que la difficulté était uniquement psychologique. Plusieurs mécanismes peuvent coexister. Un modèle utile explique à la fois les difficultés et les capacités préservées.
- Décrire la tâche
- Mesurer avec méthode
- Formuler plusieurs mécanismes
- Chercher une donnée discriminante
- Réviser l’explication
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il représente une démarche d’apprentissage, non un algorithme de diagnostic ou un protocole thérapeutique.
Exemple intégré
Deux personnes mettent le même temps pour parcourir dix mètres. L’une utilise des pas courts et une cadence élevée ; l’autre des pas plus longs et une cadence moindre. Leur vitesse moyenne identique masque des stratégies différentes. Une mesure de temps seule ne permet pas de conclure à une mécanique identique, une dépense énergétique identique ou un risque identique.
On peut ajouter cadence, longueur de pas, variabilité, contexte et perception d’effort. Chaque variable doit répondre à une question. Accumuler des mesures sans hypothèse n’améliore pas automatiquement le raisonnement ; cela augmente aussi les occasions de trouver des différences fortuites. Le choix doit rester parcimonieux et relié au mécanisme envisagé.
Le résultat final doit distinguer observation, calcul, hypothèse et incertitude. Cette discipline rend les échanges entre médecine et kinésithérapie plus clairs : les mêmes données peuvent être discutées sans attribuer à une mesure une certitude qu’elle n’a pas.
Détectable et important ne répondent pas à la même question
Exercice. Une mesure a une SEM de 2 points. On adopte MDC95 = 1,96 × √2 × SEM. Un score s'améliore de 4 points ; un seuil d'importance de 3 points a été proposé dans la population étudiée.
Correction. MDC95 ≈ 5,54 points. Le changement de 4 dépasse le seuil d'importance proposé, mais reste inférieur au seuil de détection individuelle retenu : on ne peut pas le séparer avec ce critère de l'erreur de mesure. Cela ne prouve pas qu'aucun progrès n'a eu lieu. Inversement, un changement détectable peut rester trop petit pour avoir de l'importance dans l'activité. Les seuils dépendent du test, de la population et du protocole ; ils ne sont pas transportables automatiquement.
Exercices progressifs
Exercice 1. Classer une baisse de force, une difficulté à monter des escaliers et l’impossibilité d’accéder à un lieu de travail.
Exercice 2. Un test très reproductible est-il nécessairement valide ?
Exercice 3. SEM = 3 unités : calculer le changement minimal détectable avec la formule fournie.
Exercice 4. Deux côtés également faibles sont-ils rassurants parce qu’ils sont symétriques ?
Exercice 5. Une consigne différente améliore une tâche. Que peut-on conclure sans excès ?
Corrections argumentées
Correction 1. La baisse de force relève d’une fonction corporelle ; la montée d’escaliers est une activité ; l’accès au travail touche la participation, avec une influence environnementale. Les niveaux interagissent sans être identiques.
Correction 2. Non. Il peut reproduire un biais ou mesurer une autre propriété. La fidélité est nécessaire pour certaines interprétations mais ne suffit pas à établir la validité.
Correction 3. 1,96 × 1,414 × 3 ≈ 8,32 unités. Ce seuil dépend du modèle d’erreur et ne représente pas automatiquement une différence importante pour la vie quotidienne.
Correction 4. Non. La symétrie ne renseigne pas sur le niveau absolu. Il faut une référence appropriée et une analyse de tâche.
Correction 5. La performance dépend au moins en partie de la consigne dans ces conditions. Cela n’exclut pas une limitation structurale ou physiologique concomitante.
Références et portée
Rédaction originale et exemples construits pour l’apprentissage. Ressource de recoupement consultée le 1 octobre 2026 ; elle ne certifie pas le programme local.
Partie 2 · Forces, moments et énergie dans le mouvement humain
Prérequis et objectifs
Prérequis : vecteurs, trigonométrie et anatomie des articulations.
Objectifs : construire un bilan mécanique ; calculer moments et énergie ; distinguer modèle et charge tissulaire réelle.
Choisir le système avant les équations
Une analyse mécanique commence par isoler un système : avant-bras, corps entier, pied ou ensemble de segments. On identifie les forces extérieures à ce système. Une force musculaire peut être extérieure au segment osseux isolé mais interne au corps entier. Changer de système sans réviser la liste des forces conduit à compter certaines actions deux fois ou à les oublier.
Un diagramme de corps libre indique poids, forces de contact, forces musculaires et éventuelles contraintes. Les axes et signes doivent être choisis avant le calcul. Un résultat négatif signifie souvent que le sens réel est opposé à l’hypothèse, pas que la force serait physiquement impossible.
Force, moment et bras de levier
Une force possède intensité, direction, sens et point d’application. Son moment par rapport à un axe mesure son effet rotatoire. Dans un plan, sa valeur est F × d, où d est la distance perpendiculaire entre l’axe et la ligne d’action. Cette distance n’est pas nécessairement la longueur du segment ni la distance entre insertion et articulation.
Si un tendon s’insère à une distance r mais tire avec un angle θ, le bras de levier vaut r sinθ. Avec r = 4 cm et θ = 30°, d = 2 cm. Une force de 300 N produit alors 6 N·m, pas 12. La position articulaire modifie l’angle et donc l’efficacité mécanique même si la force musculaire est identique.
Le moment s’exprime en N·m. Le travail s’exprime en joules, bien que leurs dimensions physiques soient liées. Les noms différents évitent de confondre un effet rotatoire instantané avec un transfert d’énergie au cours d’un déplacement.
Équilibre statique
Pour un solide au repos dans un modèle plan, la somme des forces horizontales, verticales et des moments doit être nulle. Annuler seulement la résultante des forces ne suffit pas : deux forces opposées séparées peuvent former un couple. Annuler seulement les moments ne garantit pas l’absence de translation.
Prenons un avant-bras horizontal portant 30 N à 0,30 m du coude et dont le poids propre est 15 N à 0,15 m. Le moment total des poids est 30 × 0,30 + 15 × 0,15 = 11,25 N·m. Avec un bras de levier musculaire de 0,03 m, une force de 375 N est nécessaire dans le modèle simplifié. Elle est bien supérieure au poids externe total de 45 N.
Si cette force est verticale vers le haut, le bilan vertical donne une réaction articulaire de 330 N vers le bas sur le segment isolé. Cette réaction est une résultante de modèle. Elle ne décrit pas la répartition de pression sur chaque surface ni les contributions de plusieurs muscles réels. L’équilibre permet un calcul cohérent, pas une image complète des contacts.
Leviers et compromis
Un court bras de levier musculaire exige une force élevée mais permet un déplacement distal important pour un raccourcissement musculaire limité. La mécanique biologique ne vise donc pas toujours l’économie de force. Vitesse, amplitude, précision et encombrement constituent d’autres contraintes.
Les catégories de leviers décrivent l’ordre relatif de l’axe, de l’effort et de la résistance. Dans le corps réel, les lignes d’action et les contacts changent avec la posture ; plusieurs muscles agissent simultanément. La classification est utile pour un modèle local mais ne remplace pas une analyse quantitative.
La cocontraction de muscles antagonistes peut augmenter la stabilité et la raideur apparente sans produire un grand moment net. Un moment articulaire faible ne signifie donc pas que toutes les forces musculaires sont faibles. Cette indétermination est centrale dans l’analyse du mouvement.
Cinématique et cinétique
La cinématique décrit position, vitesse et accélération sans identifier les forces. La cinétique relie mouvement et actions mécaniques. Une vidéo peut donner des angles, mais une force de contact nécessite généralement des données supplémentaires ou des hypothèses. Deux mouvements semblables peuvent être produits par des répartitions musculaires différentes.
La vitesse moyenne est déplacement/durée ; la vitesse instantanée décrit un moment précis. L’accélération correspond à la variation de vitesse, y compris un changement de direction à vitesse scalaire constante. Un mouvement circulaire uniforme possède donc une accélération dirigée vers le centre.
La deuxième loi de Newton s’écrit somme des forces = masse × accélération pour un système approprié. En rotation autour d’un axe fixe simple, moment résultant = moment d’inertie × accélération angulaire. Le moment d’inertie dépend de la distribution de masse : rapprocher une masse de l’axe modifie la difficulté à accélérer la rotation sans modifier nécessairement la masse totale.
Travail, puissance et énergie
Pour une force constante, le travail vaut F × déplacement × cosθ. Une force perpendiculaire au déplacement ne fournit pas de travail dans ce modèle. Le travail du poids dépend de la différence de hauteur. Soulever 10 kg de 0,5 m exige une augmentation d’énergie potentielle d’environ 49 J si g = 9,8 m/s², hors autres dépenses.
La puissance est l’énergie transférée par temps. Effectuer 49 J en une seconde correspond à 49 W ; en deux secondes, 24,5 W de puissance moyenne. L’énergie mécanique totale peut être identique alors que la puissance et les contraintes temporelles diffèrent. Une tâche rapide n’est donc pas seulement une tâche lente terminée plus tôt : elle impose aussi des accélérations et une commande différentes.
Une contraction isométrique peut consommer de l’énergie métabolique sans travail externe visible. Une contraction excentrique absorbe de l’énergie mécanique tout en exigeant une activité biologique. Le signe du travail externe ne donne pas directement le coût métabolique. Il faut distinguer énergie chimique, chaleur et travail utile.
| Quantité | Expression simple | Unité |
|---|---|---|
| Force | m × a | N |
| Moment | F × distance perpendiculaire | N·m |
| Travail | F × déplacement parallèle | J |
| Puissance | Travail/temps | W |
| Énergie potentielle | m × g × hauteur | J |
Dynamique inverse et indétermination
La dynamique inverse part du mouvement, des propriétés segmentaires et des forces externes pour estimer des moments articulaires nets. Elle ne fournit pas directement la force de chaque muscle, car plusieurs combinaisons peuvent produire le même moment. Des modèles d’optimisation ou mesures supplémentaires introduisent alors des hypothèses.
Les paramètres anthropométriques, positions de marqueurs et forces de contact comportent des erreurs. Une erreur de centre articulaire modifie le bras de levier et donc le moment estimé. Une valeur affichée avec plusieurs décimales ne signifie pas une précision équivalente du modèle.
- Isoler le système
- Dessiner les forces
- Choisir axes et hypothèses
- Écrire forces et moments
- Vérifier unités et limites
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : les tissus ne sont pas parfaitement rigides et les articulations n’ont pas toujours un axe fixe ; le modèle doit rester adapté à la question.
Exemple de comparaison de stratégies
Porter la même charge près du tronc réduit souvent son bras de levier externe par rapport à certaines articulations. Cela diminue le moment correspondant, mais ne supprime ni le poids ni toutes les charges internes. Une stratégie peut déplacer la demande vers une autre articulation ou changer l’équilibre global.
Pour comparer deux postures, on garde la même tâche externe puis examine les distances perpendiculaires et les contacts. On évite de déclarer une posture universellement « bonne » à partir d’un seul moment. Durée, variabilité, tolérance et possibilité de changer de position comptent aussi. La mécanique fournit une partie de l’explication fonctionnelle, pas un jugement complet sur une personne.
Même moment net, forces internes différentes
Exercice. Deux muscles antagonistes ont chacun un bras de levier de 0,04 m. Dans A, l'agoniste développe 500 N et l'antagoniste 0 N. Dans B, ils développent respectivement 750 N et 250 N. Comparer les moments nets.
Correction. A : 500 × 0,04 = 20 N·m. B : (750 − 250) × 0,04 = 20 N·m. La dynamique inverse peut donc donner le même moment net pour des forces musculaires différentes. La co-contraction peut modifier les sollicitations articulaires sans changer ce résultat net. On ne peut pas additionner directement ces forces pour obtenir une réaction articulaire exacte : leurs directions, insertions et autres forces doivent être incluses dans le bilan vectoriel.
Lecture visuelle : Élasticité linéaire : la pente dépend du matériau
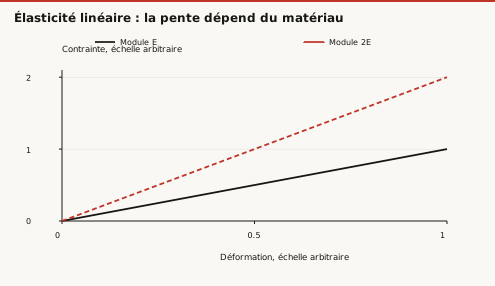
Question de lecture. Le matériau de module 2E s’allonge-t-il davantage sous la même contrainte ?
Correction. Non : sa déformation est divisée par deux dans ce modèle. La rigidité d’une structure dépend aussi de sa géométrie ; E est une propriété du matériau.
Exercices progressifs
Exercice 1. Une force de 200 N possède un bras de levier perpendiculaire de 25 mm. Calculer son moment.
Exercice 2. Deux forces opposées égales appliquées sur des lignes parallèles différentes garantissent-elles le repos ?
Exercice 3. Recalculer la force musculaire de l’exemple si le bras de levier devient 5 cm.
Exercice 4. Une charge de 20 kg monte de 0,40 m en deux secondes. Calculer énergie potentielle et puissance moyenne, avec g = 9,8.
Exercice 5. Un moment net nul prouve-t-il l’absence de contraction musculaire ?
Corrections argumentées
Correction 1. 25 mm = 0,025 m ; moment = 200 × 0,025 = 5 N·m. La conversion d’unité précède le calcul.
Correction 2. Non. Elles peuvent former un couple non nul et provoquer une rotation malgré une résultante des forces nulle.
Correction 3. Le moment externe reste 11,25 N·m ; force = 11,25/0,05 = 225 N. La réaction articulaire doit ensuite être recalculée séparément.
Correction 4. Énergie = 20 × 9,8 × 0,40 = 78,4 J ; puissance moyenne = 39,2 W. Le coût métabolique total n’est pas fourni par ce seul calcul.
Correction 5. Non. Des agonistes et antagonistes peuvent produire des moments opposés élevés, augmentant notamment la compression et la raideur sans moment résultant.
Références et portée
Rédaction originale et exemples construits pour l’apprentissage. Ressource de recoupement consultée le 1 octobre 2026 ; elle ne certifie pas le programme local.
Partie 3 · Muscle, tendon, cartilage et os : mécanique et adaptation
Prérequis et objectifs
Prérequis : histologie du muscle, du tendon, du cartilage et de l’os.
Objectifs : distinguer propriétés de matériau et géométrie ; expliquer viscoélasticité et adaptation ; relier charge et temps.
Une force ne décrit pas seule une sollicitation
La même force appliquée à deux tendons de sections différentes ne produit pas la même contrainte moyenne. La contrainte normale est approximativement force/aire de section. Elle s’exprime en pascals, souvent en MPa pour les tissus. La déformation relative est variation de longueur/longueur initiale et n’a pas d’unité. Une force et un allongement décrivent l’objet ; contrainte et déformation permettent de comparer davantage ses propriétés de matériau.
La raideur d’une structure est pente force-allongement ; le module décrit une pente contrainte-déformation dans un domaine défini. Pour une barre homogène idéale, raideur ≈ module × section/longueur. Un tendon plus épais peut donc être plus raide même si son matériau possède le même module. Confondre raideur et qualité intrinsèque du collagène efface la géométrie.
Courbes non linéaires
De nombreux tissus biologiques présentent une région initiale peu raide puis une augmentation de pente. Dans un tendon, le redressement progressif des ondulations et le recrutement des fibres contribuent à cette forme. La relation n’est donc pas une droite unique pour toutes les déformations. Un module doit être rapporté au domaine où il est calculé.
Au-delà de certaines sollicitations, des dommages microscopiques et une déformation résiduelle peuvent apparaître. La rupture macroscopique est l’aboutissement d’un processus dépendant de la structure, de la vitesse, de l’état du tissu et de son histoire. Il n’existe pas un seuil unique valable pour tous les tendons et toutes les personnes.
L’anisotropie signifie que les propriétés dépendent de la direction. Un tendon est particulièrement organisé pour la traction suivant ses fibres ; il répond autrement à une sollicitation transversale. L’os et le cartilage possèdent aussi des architectures directionnelles. Un échantillon coupé dans une direction ne représente pas toutes les propriétés de l’organe.
Viscoélasticité
Un matériau viscoélastique dépend du temps et de la vitesse. Le fluage est l’augmentation progressive de déformation sous charge maintenue. La relaxation de contrainte est la diminution de force nécessaire pour maintenir une déformation constante. Ces phénomènes sont distincts et ne doivent pas être nommés indifféremment « étirement ».
L’hystérésis est la différence entre trajet de chargement et de déchargement sur une courbe. L’aire entre les deux correspond à une énergie dissipée sur un diagramme force-allongement, et à une énergie dissipée par unité de volume sur un diagramme contrainte-déformation. Les axes déterminent donc l’unité de cette aire. Un tissu peut restituer une partie de l’énergie sans être un ressort parfait. Sa réponse dépend du nombre de cycles précédents, de l’hydratation et de la température.
| Phénomène | Grandeur maintenue | Grandeur qui évolue |
|---|---|---|
| Fluage | Force ou contrainte | Allongement ou déformation augmente |
| Relaxation | Longueur ou déformation | Force ou contrainte diminue |
| Hystérésis | Cycle de charge-décharge | Énergie dissipée entre les trajets |
| Déformation plastique | Sollicitation au-delà d’un domaine | Déformation résiduelle après décharge |
Unité muscle-tendon
Le muscle contient des éléments contractiles et des éléments élastiques en série et en parallèle. Le tendon transmet la force et peut stocker de l’énergie. Un changement de longueur de l’ensemble n’est pas identique à un changement de longueur des fascicules musculaires : le tendon peut s’allonger pendant que les fibres changent peu de longueur.
La pennation permet d’insérer davantage de fibres dans un volume, augmentant la section physiologique disponible, mais seule une composante de leur force est transmise selon l’axe du tendon. L’angle évolue avec la contraction. La longueur des fibres influence la capacité de raccourcissement et la vitesse ; la section physiologique influence la force potentielle. Un muscle volumineux n’est donc pas décrit complètement par son diamètre visible.
La relation longueur-tension active dépend du chevauchement des filaments ; la tension passive vient notamment de titine et tissus conjonctifs. La force mesurée à l’extrémité dépend aussi des bras de levier articulaires. Une différence de couple entre deux angles ne prouve pas une variation de la seule force intrinsèque des fibres.
Tendon : stockage et transmission
Pendant certains mouvements, le tendon se charge puis restitue une partie de l’énergie. Cette propriété peut réduire le travail actif nécessaire des fascicules, mais elle exige une coordination temporelle. Une structure très compliante stocke de l’énergie pour une force donnée en s’allongeant davantage ; une structure trop compliante pour la tâche peut ralentir la transmission. Il n’existe donc pas une raideur idéale universelle.
Les cellules tendineuses répondent aux signaux mécaniques et modifient la matrice. L’adaptation dépend de la répétition, de la récupération et de l’état biologique. Les changements de commande musculaire peuvent être plus rapides que le remodelage collagénique ; les différentes composantes ne s’adaptent pas au même rythme.
Cartilage : solide hydraté
Le cartilage articulaire combine réseau collagénique et gel riche en protéoglycanes. L’eau et les charges fixes participent à la résistance à la compression. Lors d’une charge rapide, la pressurisation du fluide contribue au support ; avec le temps, des déplacements de liquide modifient la réponse. La porosité et la perméabilité font donc partie de la mécanique.
Le cartilage est avasculaire et les échanges dépendent de diffusion et de mouvements de fluide. Cela ne signifie pas qu’il doit être soumis à une charge maximale pour être nourri ; la relation entre charge et fonction dépend de son amplitude et de sa durée. Une compression prolongée et une charge intermittente ne produisent pas exactement les mêmes conditions.
La surface, la profondeur et l’interface osseuse ont des organisations différentes. Un échantillon moyen ne décrit pas toutes les zones. Le cartilage et l’os sous-chondral forment une unité mécanique : modifier l’un change les contraintes de l’autre.
Os : rigidité et remodelage
L’os associe matrice organique et minéral. Sa géométrie, notamment la distribution de matière loin de l’axe, influence fortement la résistance en flexion. Deux os de même masse peuvent avoir des résistances différentes si leur architecture diffère. Le tissu trabéculaire distribue les charges dans un réseau, tandis que le cortical participe fortement aux propriétés de coque.
Les ostéocytes perçoivent des conséquences des sollicitations et participent aux signaux qui règlent formation et résorption. Une adaptation résulte de cycles cellulaires et prend du temps. Une augmentation de charge ne garantit pas une formation immédiate suffisante ; si les dommages s’accumulent plus vite que la réparation, la résistance peut diminuer.
Adaptation, désadaptation et fatigue mécanique
La fatigue mécanique désigne l’accumulation de dommages sous sollicitations répétées, parfois inférieures à la charge de rupture d’un cycle unique. Elle diffère de la fatigue neuromusculaire, qui concerne une baisse de performance. Les deux peuvent interagir mais leurs mécanismes et mesures ne sont pas identiques.
L’absence prolongée de sollicitation peut réduire certaines capacités tissulaires ; une reprise soudaine change le rapport entre demande et capacité. Cette logique explique l’importance du temps biologique, sans fournir ici une prescription de charge individuelle. Les adaptations dépendent aussi de nutrition, hormones, âge et maladie.
- Déformation locale
- Signaux cellulaires
- Synthèse et dégradation
- Remodelage de structure
- Nouvelle réponse mécanique
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : une sollicitation peut aussi provoquer des dommages ; le remodelage n’est pas automatiquement bénéfique ni immédiat.
Exemple quantitatif
Un tendon modèle reçoit 600 N sur une section de 60 mm². La contrainte vaut 10 N/mm², soit 10 MPa. Si sa longueur initiale est 100 mm et son allongement 4 mm, la déformation est 4 %. Le rapport contrainte/déformation vaut 250 MPa seulement si l’on assimile ce domaine à une réponse linéaire depuis l’origine ; il ne constitue pas nécessairement le module tangent réel.
Cette distinction montre pourquoi les unités et le choix de pente comptent. Une mesure unique fournit un point sur une courbe, pas toute la loi de comportement. La mécanique des tissus exige de relier structure, temps et protocole.
Ce que l’on maintient constant définit l’expérience
Comparaison. Dans A, une éprouvette reste sous une force constante et s'allonge progressivement. Dans B, sa longueur est maintenue après un étirement initial et la force nécessaire diminue. Nommer les observations.
Correction. A montre un fluage ; B une relaxation de contrainte. La variable contrôlée diffère : force dans A, déformation dans B. Une courbe force-temps décroissante ne prouve une relaxation que si la longueur est effectivement maintenue. Une diminution de force liée à un raccourcissement imposé serait une autre expérience. Les tissus biologiques ajoutent hydratation, température, histoire de chargement et activité éventuelle ; il faut les préciser avant de comparer deux courbes ou d'extrapoler un résultat à une charge prolongée.
Lecture visuelle : Sarcomère : le glissement conserve la longueur des filaments
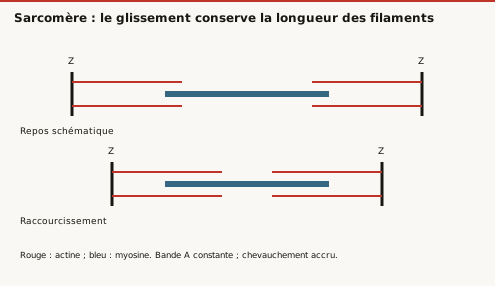
Question de lecture. Pourquoi réduire proportionnellement tout le dessin serait-il faux ?
Correction. Cela raccourcirait les filaments eux-mêmes. Le mécanisme étudié est leur glissement relatif ; une variation de longueur du sarcomère ne suffit pas à calculer sa force.
Exercices progressifs
Exercice 1. Une force de 400 N agit sur 20 mm². Calculer la contrainte en MPa.
Exercice 2. Une longueur passe de 80 à 84 mm. Calculer la déformation relative.
Exercice 3. Quel phénomène observe-t-on si la force diminue à longueur maintenue ?
Exercice 4. Deux tendons ont le même module mais des sections différentes. Ont-ils nécessairement la même raideur ?
Exercice 5. La fatigue mécanique est-elle identique à une baisse de commande musculaire ?
Corrections argumentées
Correction 1. 400/20 = 20 N/mm² = 20 MPa. La conversion utilise 1 N/mm² = 1 MPa.
Correction 2. (84 − 80)/80 = 0,05, soit 5 %. L’allongement absolu est de 4 mm.
Correction 3. Une relaxation de contrainte. Le fluage correspond à l’autre situation : charge maintenue et déformation croissante.
Correction 4. Non. Dans le modèle simple, la raideur dépend aussi de la section et de la longueur. Les propriétés du matériau ne déterminent pas seules celles de la structure.
Correction 5. Non. La fatigue mécanique concerne des dommages sous cycles répétés ; la fatigue neuromusculaire concerne la capacité de production de force et peut avoir plusieurs causes centrales ou périphériques.
Références et portée
Rédaction originale et exemples construits pour l’apprentissage. Ressource de recoupement consultée le 1 octobre 2026 ; elle ne certifie pas le programme local.
Partie 4 · Commande motrice, proprioception, posture et apprentissage
Prérequis et objectifs
Prérequis : neurone, synapse, muscle strié et organisation médullaire.
Objectifs : relier afférences, commande et tâche ; différencier anticipation et correction ; interpréter un apprentissage.
Une action combine anticipation et rétroaction
La commande motrice transforme un objectif en activité musculaire. Elle utilise une estimation de la position corporelle et des propriétés de l’environnement. Cette estimation reste imparfaite : les récepteurs ont du bruit, les informations arrivent avec des délais et le monde peut changer pendant l’action. Le système nerveux combine donc des commandes préparées avec des corrections sensorielles. Une action réussie ne demande pas une correction consciente de chaque articulation.
Attraper un gobelet illustre cette organisation. La vision fournit sa position et une estimation de sa taille. Les expériences antérieures contribuent à anticiper le poids. Les informations cutanées et proprioceptives précisent ensuite le contact et la prise. Si le gobelet est plus lourd que prévu, la commande est ajustée. La préparation explique la rapidité ; la rétroaction explique une partie de l’adaptation à l’imprévu.
Deux informations proprioceptives distinctes
Le fuseau neuromusculaire est un récepteur placé dans le muscle, en parallèle avec les fibres extrafusales qui produisent l’essentiel de sa force. Ses fibres intrafusales et leurs terminaisons sensorielles renseignent sur l’état d’allongement du muscle et sur ses variations. Les afférences primaires Ia sont particulièrement sensibles aux variations rapides ; les afférences secondaires II contribuent à l’information de longueur. Cette distinction est fonctionnelle et ne signifie pas que chaque afférence code exclusivement une seule grandeur.
Les motoneurones gamma règlent les régions contractiles des fibres intrafusales. Ils modifient la sensibilité du fuseau. Une coactivation alpha-gamma peut maintenir la détection pendant le raccourcissement du muscle. Sans adaptation du fuseau, le raccourcissement extrafusal pourrait détendre sa partie sensorielle. La commande gamma ne constitue pas la source principale de force du mouvement volontaire.
L’organe tendineux de Golgi est associé aux faisceaux tendineux, en série avec les fibres musculaires. Ses afférences Ib renseignent sur la tension. Le présenter comme un simple interrupteur protecteur contre toute force excessive est réducteur. Les effets des circuits Ib sont modulés par la tâche et par les commandes descendantes. Les récepteurs articulaires et cutanés complètent l’estimation corporelle ; la proprioception n’est donc pas un capteur unique localisé dans les tendons.
Le réflexe myotatique dans son contexte
L’étirement d’un muscle peut activer une afférence Ia qui excite directement les motoneurones alpha de ce muscle. Cette connexion centrale monosynaptique constitue le noyau du réflexe myotatique. Le circuit complet comporte aussi la conduction périphérique, la transmission neuromusculaire et la contraction. L’inhibition réciproque d’un antagoniste fait intervenir un interneurone : elle n’est pas monosynaptique.
Une percussion tendineuse étire brièvement le muscle correspondant. Le tendon n’est pas le récepteur principal de cette réponse. L’amplitude observée dépend de l’état du circuit, du contexte, de la posture et de l’activité descendante. Un réflexe ne démontre pas à lui seul l’état de toutes les voies motrices. Il renseigne sur un circuit défini et doit être interprété avec d’autres observations.
Le gain d’une boucle décrit l’ampleur de sa réponse à une perturbation. Un gain élevé peut mieux contrer certaines perturbations mais aussi favoriser des oscillations si les délais deviennent importants. Le contrôle biologique règle donc des compromis entre stabilité, rapidité et souplesse. La stabilité ne correspond pas à une absence absolue de mouvement.
Vision, vestibule et surfaces de contact
Les informations vestibulaires proviennent des canaux semi-circulaires et des organes otolithiques. Les premiers participent à la détection des mouvements de rotation de la tête ; les seconds renseignent sur les accélérations linéaires et l’orientation par rapport à la gravité. Les signaux vestibulaires contribuent à stabiliser le regard et à régler la posture. Ils doivent être interprétés avec la vision et les informations somatosensorielles.
Debout, la pression plantaire et les déformations cutanées informent sur les contacts. La vision fournit des repères externes mais peut être trompeuse si le décor bouge. Sur un support déformable, l’information issue des chevilles renseigne moins simplement sur l’orientation du corps par rapport au monde. Le système réajuste la confiance relative accordée aux différentes modalités : cette pondération sensorielle dépend du contexte.
Fermer les yeux retire une source d’information ; cela ne « teste » pas isolément un seul organe. Une modification de stabilité peut traduire plusieurs interactions entre modalités et commande. Pour interpréter une expérience, il faut préciser le support, la position, les perturbations et la variable mesurée.
Centre de masse et centre de pression
Le centre de masse représente la position moyenne de la masse corporelle. Le centre de pression correspond au point d’application résultant des forces de contact sur le support. Ils sont différents. En station debout, déplacer le centre de pression modifie les moments qui accélèrent le corps et influencent le centre de masse. Une plateforme de force ne mesure donc pas directement le déplacement du centre de masse.
Le polygone de sustentation décrit la région délimitée par les contacts pertinents avec le support. Dans une situation quasi statique, la projection du centre de masse est une information utile. Pendant un mouvement rapide, sa vitesse et les possibilités de créer de nouveaux appuis comptent aussi. Un corps peut momentanément dépasser les limites d’un appui et rester contrôlé en réalisant un pas.
Les stratégies dites de cheville, de hanche ou de pas décrivent des organisations dominantes. Elles ne sont pas des programmes exclusifs utilisés un à la fois. La taille et la direction d’une perturbation, la géométrie des appuis et la tâche orientent leur combinaison.
Anticipation et correction
Avant un mouvement volontaire qui perturbe l’équilibre, certaines activités posturales peuvent apparaître pour préparer le corps. Ces ajustements anticipateurs reposent sur une prédiction des conséquences de l’action. Les réponses déclenchées après une perturbation inattendue correspondent à des corrections réactives. Une chronologie précise permet de distinguer ces phénomènes mieux que le seul nom du muscle actif.
L’anticipation est utile parce que la rétroaction prend du temps. Elle peut cependant être erronée lorsque l’objet, le support ou la tâche diffère des attentes. La correction sensorielle fournit alors une erreur exploitable pour modifier les actions suivantes. Le contrôle utilise simultanément plusieurs échelles temporelles, depuis des circuits rapides jusqu’à des décisions conscientes plus lentes.
- Objectif et contexte
- Préparation de commande
- Mouvement et conséquences
- Informations sensorielles
- Ajustement de l’estimation
Schéma de principe : lire les conditions et les limites dans le texte.
Limite : le dessin déroule une boucle qui fonctionne en parallèle ; il ne représente ni tous les centres nerveux ni leurs délais respectifs.
Apprendre n’est pas seulement réussir une fois
La performance désigne ce qui est observé pendant une séance. L’apprentissage correspond à une modification relativement durable de la capacité à accomplir une tâche. Une réussite immédiate peut dépendre d’un guidage, d’une aide ou d’un effet transitoire. La rétention après un délai et le transfert vers une situation différente apportent des arguments complémentaires pour identifier un apprentissage.
Une rétroaction sur le résultat indique si le but a été atteint : l’objet est tombé ou la cible a été touchée. Une rétroaction sur l’exécution décrit comment l’action a été réalisée. Leur intérêt dépend de la tâche et de l’expérience. Donner continuellement une indication peut améliorer la réussite immédiate tout en rendant la personne dépendante de cette indication. Aucun dosage universel ne se déduit de ce principe.
La variabilité n’est pas nécessairement une erreur à éliminer. Plusieurs coordinations peuvent atteindre le même objectif. Une variabilité adaptée permet d’explorer des solutions ; une variabilité excessive peut rendre la tâche instable. On doit étudier la variabilité de la grandeur importante, comme la position de l’objet, et celle des mouvements articulaires qui y contribuent.
Interpréter des données sans attribuer une cause unique
Supposons qu’un sujet réduise ses oscillations après avoir fixé un repère visuel. L’observation indique que cette condition améliore le résultat mesuré. Elle ne prouve pas que toutes les difficultés initiales venaient de la vision. Une attention différente, une stratégie modifiée ou une interaction entre informations sont possibles. Une comparaison contrôlée doit maintenir les autres conditions aussi proches que possible.
De même, une augmentation de l’activité électromyographique ne mesure pas directement une augmentation proportionnelle de force. La relation dépend de l’architecture, de la longueur, de la vitesse et de la méthode d’enregistrement. Une cocontraction peut accroître l’activité des deux côtés d’une articulation sans augmenter le moment net. La bonne interprétation relie le signal à la mécanique et au protocole.
Tester la rétention et le transfert séparément
Cas. Une personne améliore une tâche avec guidage visuel pendant l'entraînement. Le lendemain, sans guidage, elle conserve ce progrès ; sur une variante de la tâche, elle revient au niveau initial. Que conclure ?
Correction. Le premier résultat soutient une rétention dans les conditions testées. Le second indique un transfert limité à cette variante. La réussite à l'entraînement, la rétention différée et le transfert ne sont pas trois synonymes d'apprentissage. Il faut contrôler familiarisation au test, fatigue et difficulté de la variante. Un protocole peut donc démontrer un acquis durable mais spécifique, sans permettre de conclure à une amélioration générale de toute fonction motrice. Les mesures doivent préciser la tâche et la situation de réalisation.
Exercices progressifs
Exercice 1. Quel récepteur est principalement sollicité dans le réflexe provoqué par une percussion tendineuse ?
Exercice 2. Pourquoi l’inhibition réciproque ne constitue-t-elle pas la composante monosynaptique du réflexe ?
Exercice 3. Une plateforme donne un centre de pression mobile. Mesure-t-elle directement le centre de masse ?
Exercice 4. Une amélioration disparaît dès que le guidage est retiré. Peut-on conclure à un apprentissage durable ?
Exercice 5. Une personne devient moins stable les yeux fermés sur mousse. Peut-on localiser une lésion à partir de cette seule observation ?
Corrections argumentées
Correction 1. Le fuseau neuromusculaire, activé par l’étirement bref du muscle. Le nom de la percussion ne désigne pas le récepteur principal.
Correction 2. Elle passe par un interneurone inhibiteur entre l’afférence et le motoneurone antagoniste. La connexion excitatrice Ia-motoneurone homonyme est le noyau monosynaptique.
Correction 3. Non. Le centre de pression décrit la résultante des contacts. Le centre de masse dépend de la distribution de masse ; leur relation nécessite un modèle mécanique.
Correction 4. Non. La performance assistée peut s’améliorer sans rétention. Il faut distinguer réussite immédiate, rétention et transfert.
Correction 5. Non. Deux sources d’information ont été modifiées et leur intégration est sollicitée. Cette observation ne fournit pas une localisation unique.
Références et portée
Rédaction originale et exemples construits pour l’apprentissage. Ressource de recoupement consultée le 1 octobre 2026 ; elle ne certifie pas le programme local.
Partie 5 · Marche, transferts et préhension : analyse de tâches
Prérequis et objectifs
Prérequis : anatomie des membres et notions de force, moment et centre de masse.
Objectifs : décomposer une tâche en phases ; calculer les paramètres de marche ; relier préhension, appuis et contraintes.
Décrire une tâche avant ses muscles
Une analyse du mouvement doit préciser le résultat demandé. Marcher à vitesse confortable, franchir un obstacle et marcher en portant un objet sont des tâches différentes. Leur réussite dépend d’un déplacement du corps, de la conservation des appuis nécessaires et d’une adaptation de trajectoire. Une liste de muscles ne suffit pas à expliquer pourquoi une stratégie convient à une situation.
La première description porte sur les événements observables : début du mouvement, contact, décollement, passage d’un segment, fin de la tâche. On mesure ensuite des grandeurs choisies : durée, distance, vitesse, angles ou forces. Enfin, on propose des mécanismes. Cet ordre évite d’attribuer immédiatement une observation à un déficit particulier.
Le cycle de marche
Un cycle de marche peut être défini entre deux contacts initiaux successifs du même pied. Il comprend une phase d’appui, durant laquelle ce pied touche le sol, et une phase oscillante, durant laquelle il avance sans contact. À vitesse habituelle chez l’adulte, l’appui représente approximativement 60 % du cycle et l’oscillation 40 %. Ces valeurs sont des repères, pas des constantes imposées à toutes les vitesses ou toutes les personnes.
La marche comporte normalement des périodes de double appui où les deux pieds touchent le sol. Le double appui diminue généralement lorsque la vitesse augmente. La course se distingue notamment par une organisation pouvant comporter une phase aérienne et par d’autres caractéristiques mécaniques ; il ne suffit pas de dépasser une fréquence arbitraire pour la définir.
Le pas relie le contact d’un pied au contact de l’autre. L’enjambée relie deux contacts successifs du même pied et correspond à un cycle complet. Une enjambée comporte habituellement deux pas. Le vocabulaire doit être défini car certaines traductions confondent longueur du pas et longueur de l’enjambée.
Les paramètres spatiotemporels
La cadence est le nombre de pas par unité de temps, souvent en pas par minute. Si la longueur moyenne du pas est L et la cadence C, la vitesse vaut approximativement L × C/60 lorsque L est exprimée en mètres et C en pas par minute. Avec L = 0,60 m et C = 100 pas/min, la vitesse est 1,0 m/s. Il faut utiliser la longueur de pas, et non doubler cette grandeur sans changer la fréquence correspondante.
Une même vitesse peut résulter de pas courts et fréquents ou de pas longs et moins fréquents. Deux marches identiques sur la seule vitesse peuvent donc différer dans leur organisation. Une asymétrie de temps d’appui, de longueur de pas ou d’angle articulaire décrit des dimensions différentes. Un indice symétrique ne signifie pas que les valeurs des deux côtés sont satisfaisantes.
La largeur du pas, la variabilité et le temps de double appui peuvent compléter l’analyse. Leur interprétation dépend de la vitesse, de la consigne, du terrain et de la précision de mesure. Comparer deux situations exige soit de contrôler ces conditions, soit de les intégrer explicitement à l’interprétation.
Accepter le poids et soutenir le corps
Après le contact initial, le membre accepte progressivement la charge. Des mouvements articulaires et une activité musculaire contrôlent cette transition. Le genou peut fléchir légèrement ; les muscles extenseurs contribuent au contrôle sans que toute activité soit obligatoirement concentrique. Une contraction active peut freiner un mouvement lorsque le muscle s’allonge.
Pendant l’appui unipodal, les abducteurs de la hanche du côté porteur participent au contrôle du bassin dans le plan frontal. Le poids du reste du corps crée un moment qui tend à abaisser le côté opposé. Une inclinaison du tronc vers le côté porteur peut réduire le bras de levier de cette charge. Cette stratégie change donc les exigences mécaniques ; elle ne permet pas, à elle seule, d’identifier son origine.
La cheville et le pied organisent les contacts avec le sol. Le pied combine une certaine adaptabilité avec une capacité à transmettre les forces. Les arches, les tissus plantaires et les muscles participent à cette fonction. Un pied ne doit pas être assimilé à un simple bloc rigide, même si un modèle simplifié peut l’utiliser pour un calcul donné.
Progresser et dégager le pied
En fin d’appui, les fléchisseurs plantaires contribuent au contrôle de l’avancée du tibia puis à la production mécanique associée à la progression. Les contributions précises dépendent de la vitesse et de la phase. « Le muscle se contracte » ne précise ni son action mécanique ni la puissance développée ; il faut connaître simultanément moment et vitesse articulaire.
Pendant l’oscillation, le membre doit avancer et le pied éviter le sol. La flexion de hanche et de genou et la position de cheville contribuent au dégagement. Plusieurs stratégies peuvent compenser une modification d’un de ces éléments, par exemple une élévation du bassin ou une trajectoire latérale. Décrire ces solutions ne revient pas à les recommander ni à les attribuer à une maladie unique.
Le contact suivant exige aussi un placement du pied approprié. La marche implique donc à la fois production de progression, contrôle de l’équilibre et préparation du futur appui. Ces objectifs peuvent entrer en compromis lorsqu’un obstacle ou une double tâche modifie le contexte.
Forces de réaction et analyse inverse
Le sol exerce sur le corps une force de réaction dont les composantes varient pendant le cycle. La composante verticale n’est pas constamment égale au poids, car le centre de masse accélère. Les composantes horizontales participent au freinage et à la propulsion. Sur plusieurs cycles à vitesse moyenne constante, l’impulsion horizontale nette doit être compatible avec une variation moyenne de vitesse nulle.
À partir des mouvements segmentaires et des forces externes, une analyse dynamique inverse estime des moments articulaires nets. Elle ne mesure pas directement la force de chaque muscle. Plusieurs distributions d’activité peuvent produire le même moment net, notamment en présence de cocontraction. Cette non-unicité impose de distinguer résultat mécanique et stratégie musculaire.
Se lever d’une assise
Passer d’une assise à la station debout déplace le centre de masse depuis une configuration soutenue par le siège et les pieds vers une configuration essentiellement soutenue par les pieds. Une inclinaison du tronc rapproche la masse au-dessus des appuis ; une extension coordonnée des membres élève ensuite le corps. Ces opérations se chevauchent et leur timing dépend de la stratégie.
La hauteur du siège, la position des pieds et l’usage des membres supérieurs changent les moments requis. Un siège plus bas augmente généralement certaines amplitudes et exigences mécaniques, sans autoriser une prédiction universelle de chaque force musculaire. Poser les pieds plus en arrière peut modifier le déplacement nécessaire du centre de masse, mais aussi les contraintes aux articulations.
Le temps total renseigne sur la tâche mais masque sa décomposition. Deux personnes peuvent mettre le même temps en utilisant des phases différentes. Une analyse utile distingue préparation, perte de contact avec le siège, extension et stabilisation finale. Elle précise si le chronométrage commence au signal ou au premier mouvement.
Saisir, transporter et relâcher
La préhension associe transport du membre et configuration de la main. Une prise de force entoure largement un objet ; une prise de précision utilise des contacts plus localisés. L’opposition du pouce, la mobilité des doigts et la stabilisation du poignet permettent de multiples configurations. Le choix dépend de la géométrie de l’objet et de la tâche à accomplir après la saisie.
La friction entre peau et objet conditionne la force normale nécessaire pour éviter le glissement. Si la surface est plus glissante, une force de serrage plus importante peut être nécessaire pour une même charge tangentielle. Une marge de sécurité existe souvent, mais un serrage maximal n’est pas toujours utile. Les informations tactiles permettent de détecter les modifications de contact et d’ajuster la prise.
Transporter l’objet exige de coordonner épaule, coude, poignet et doigts. Une même trajectoire de la main peut être obtenue avec différentes coordinations articulaires. L’espace disponible, le poids et la précision requise sélectionnent des solutions différentes. Le relâchement est aussi une action contrôlée : il exige le bon emplacement, le bon moment et une diminution appropriée des forces.
Construire une observation comparable
Une fiche d’analyse doit décrire la consigne, le matériel, les repères temporels et les unités. La vidéo bidimensionnelle simplifie les mesures mais peut être trompée par une rotation hors du plan. Une variation d’angle apparent peut provenir du placement de caméra. Un signal de force exige un étalonnage et une définition claire des événements.
- Résultat obtenu
- Temps et trajectoire
- Contacts et forces
- Coordination des segments
- Conditions du milieu
Repères complémentaires, sans ordre ni lien de cause.
Limite : cette liste organise l’observation sans affirmer qu’une dimension cause nécessairement les autres.
L’analyse finale doit formuler ce qui a été observé, les mécanismes compatibles et ce qui reste indéterminé. Cette discipline rend les résultats utilisables pour apprendre le raisonnement du mouvement sans transformer un exercice pédagogique en conseil individuel.
Une même vitesse peut masquer des stratégies différentes
Exercice. A marche à 120 pas/min avec des pas moyens de 0,50 m. B marche à 100 pas/min avec des pas moyens de 0,60 m. Comparer vitesses et durée moyenne d'un cycle comportant deux pas.
Correction. A : 120 × 0,50/60 = 1,0 m/s. B : 100 × 0,60/60 = 1,0 m/s. Les durées de cycle valent 120/120 = 1,0 s et 120/100 = 1,2 s. Une même vitesse ne garantit donc ni même cadence ni même longueur de pas. Une foulée complète, entre deux contacts successifs du même pied, n'est pas un pas. En présence d'asymétrie, on conserve les mesures droite et gauche plutôt que de les effacer dans une moyenne unique.
Exercices progressifs
Exercice 1. Une cadence de 120 pas/min et une longueur moyenne de pas de 0,55 m donnent quelle vitesse ?
Exercice 2. Un cycle dure 1,2 s dont 0,72 s en appui. Calculer la part d’appui.
Exercice 3. Pourquoi une force verticale du sol supérieure au poids est-elle possible ?
Exercice 4. Un moment net de genou identique implique-t-il les mêmes forces musculaires ?
Exercice 5. Deux personnes se lèvent en deux secondes, l’une avec les bras. Les exigences mécaniques sont-elles nécessairement identiques ?
Corrections argumentées
Correction 1. 0,55 × 120/60 = 1,10 m/s. La cadence utilisée compte les pas, pas les enjambées.
Correction 2. 0,72/1,2 = 0,60, soit 60 %. Le temps d’oscillation vaut 0,48 s si le cycle est ainsi décomposé.
Correction 3. Une résultante verticale non nulle accélère le centre de masse. L’égalité au poids caractérise une résultante verticale nulle, pas chaque instant du mouvement.
Correction 4. Non. Le moment est une somme algébrique ; des niveaux différents de cocontraction peuvent donner le même résultat net.
Correction 5. Non. Les bras ajoutent des appuis et des forces. Le temps final ne décrit pas la répartition des efforts entre segments.
Références et portée
Rédaction originale et exemples construits pour l’apprentissage. Ressource de recoupement consultée le 1 octobre 2026 ; elle ne certifie pas le programme local.
Partie 6 · Effort et limitation fonctionnelle : une physiologie intégrée
Prérequis et objectifs
Prérequis : débit cardiaque, ventilation, échanges gazeux et métabolisme énergétique.
Objectifs : relier transport et utilisation de l’oxygène ; interpréter une limitation de tâche ; distinguer seuil, fatigue et réserve.
Une tâche mobilise plusieurs réserves
Un effort dynamique augmente les besoins énergétiques des muscles actifs. La réponse nécessite une production d’ATP, un apport de substrats et d’oxygène, une élimination de produits et une dissipation de chaleur. Les systèmes cardiovasculaire, respiratoire, neuromusculaire et métabolique participent ensemble. Une limitation observée ne révèle pas automatiquement lequel constitue le facteur déterminant.
Le mot réserve désigne une différence entre une capacité disponible et une demande dans des conditions définies. Une tâche modeste peut représenter une faible fraction de la capacité d’une personne et une fraction élevée pour une autre. L’intensité absolue, exprimée par une puissance externe, doit donc être distinguée de l’intensité relative. Une même puissance mécanique n’impose pas exactement la même dépense métabolique si le rendement diffère.
Transporter et extraire l’oxygène
Le principe de Fick relie la consommation d’oxygène au débit sanguin et à la différence artérioveineuse de contenu en oxygène. À l’échelle de l’organisme : consommation d’oxygène = débit cardiaque × différence artérioveineuse. Le débit cardiaque est le produit de la fréquence cardiaque et du volume d’éjection systolique. Chaque facteur peut participer à l’augmentation de consommation pendant l’effort.
Le contenu en oxygène n’est pas identique à la pression partielle. La majeure partie de l’oxygène sanguin est liée à l’hémoglobine. Une pression artérielle en oxygène conservée ne garantit pas un contenu normal si la concentration d’hémoglobine est différente. Inversement, les échanges et l’affinité de l’hémoglobine influencent la disponibilité pour les tissus. Il faut toujours identifier la grandeur mesurée avant de conclure.
Considérons un débit de 15 L/min et une différence artérioveineuse de 120 mL d’oxygène par litre de sang. La consommation vaut 1 800 mL/min, soit 1,8 L/min. Avec le même débit et une différence de 100 mL/L, elle vaut 1,5 L/min. Cet exemple montre que le débit seul ne suffit pas à déterminer l’utilisation globale.
Distribuer le débit
Pendant un effort dynamique, les muscles actifs reçoivent davantage de débit, sous l’effet de mécanismes locaux et de la régulation nerveuse. Le débit cutané participe à la thermorégulation, avec une importance dépendant de l’environnement et de la durée. La distribution ne correspond pas simplement à une augmentation égale dans tous les organes.
Le retour veineux est favorisé notamment par les mouvements musculaires et respiratoires. Il dépend aussi du volume sanguin, de la capacitance veineuse et des gradients de pression. Le cœur ne peut soutenir durablement un débit indépendant de son remplissage. Les réponses de fréquence, de contractilité et de tonus vasculaire doivent être pensées dans cette circulation fermée.
Une mesure de fréquence cardiaque renseigne sur une réponse intégrée, mais pas sur tous les facteurs de consommation d’oxygène. La température, l’émotion, la posture et de nombreux paramètres peuvent la modifier. Une relation fréquence-charge observée dans un protocole ne devient pas une loi exacte applicable à toute situation.
Ventiler n’est pas seulement respirer plus vite
La ventilation minute est le produit de la fréquence respiratoire par le volume courant. La ventilation alvéolaire retranche le volume d’espace mort à chaque cycle. À ventilation minute identique, des respirations très rapides et superficielles peuvent ventiler moins efficacement les alvéoles que des cycles plus amples. Les unités doivent être cohérentes et l’espace mort n’est pas une quantité identique dans tous les contextes.
Avec un volume courant de 0,50 L, un espace mort de 0,15 L et une fréquence de 20/min, la ventilation minute vaut 10 L/min et la ventilation alvéolaire approximative 7 L/min. Avec 0,25 L à 40/min, la ventilation minute reste 10 L/min mais la ventilation alvéolaire vaut 4 L/min dans ce modèle. Ce calcul illustre une différence de mécanisme, pas une consigne respiratoire individuelle.
Les échanges dépendent également des rapports ventilation-perfusion et de la diffusion. Une hausse de ventilation totale n’assure pas une hausse proportionnelle d’échange si elle concerne des régions peu perfusées. Une sensation d’essoufflement est une expérience perceptive issue de plusieurs signaux ; elle ne mesure pas directement une seule variable telle que la saturation.
Produire l’ATP à plusieurs vitesses
Les réserves immédiates d’ATP sont limitées. La phosphocréatine, la glycolyse et les voies oxydatives contribuent de façon simultanée mais variable à sa régénération. Le début d’un effort ne correspond pas à une succession de filières totalement exclusives. La demande augmente rapidement tandis que certaines réponses de transport et d’oxydation s’ajustent avec une cinétique plus lente.
Le lactate est un produit métabolique utilisable par d’autres tissus et un intermédiaire de circulation du carbone. Son accumulation sanguine reflète la différence entre apparition et élimination. Elle ne prouve pas l’absence complète d’oxygène et ne constitue pas l’explication unique de la fatigue. Les seuils définis à partir du lactate ou de la ventilation dépendent du protocole et de la méthode de détermination.
Lors d’un effort prolongé, la disponibilité des substrats, la température et l’équilibre hydrique peuvent modifier la capacité de maintien. Pour comparer des résultats, il faut préciser durée, puissance, conditions ambiantes et état initial. Un chiffre maximal ne décrit pas toutes les capacités utiles pour des tâches intermittentes ou prolongées.
Fatigue : une diminution dépendante de la tâche
La fatigabilité de performance correspond à une diminution mesurable de capacité au cours ou après une tâche. La sensation de fatigue est une expérience subjective qui peut évoluer différemment. Les deux informations sont utiles mais ne sont pas interchangeables. Une tâche peut devenir subjectivement difficile avant qu’un indicateur mécanique choisi diminue.
Des mécanismes centraux concernent l’activation volontaire et ses déterminants ; des mécanismes périphériques concernent notamment transmission, excitation-contraction et métabolisme musculaire. Leur contribution dépend de l’intensité, de la durée et du groupe musculaire. Une baisse de force ne permet pas, à elle seule, de séparer ces mécanismes.
La fatigue mécanique d’un matériau sous charges répétées, étudiée dans le cours sur les tissus, désigne autre chose. Employer le même mot sans préciser son sens mélange endommagement structurel et limitation momentanée de performance. Une description rigoureuse indique la variable qui a changé et le temps nécessaire à sa récupération.
Économie, rendement et capacité
L’économie d’une tâche décrit le coût énergétique pour une performance définie, par exemple un déplacement à vitesse imposée. Le rendement mécanique rapporte un travail mécanique utile à une dépense énergétique selon une convention explicitée. Une meilleure économie peut diminuer le coût d’une tâche sans augmenter la capacité maximale de transport d’oxygène.
Une puissance externe de 100 W ne signifie pas que l’organisme dépense seulement 100 W métaboliques. Une part de l’énergie devient chaleur et une autre sert à des fonctions qui ne contribuent pas directement au travail externe mesuré. La définition du travail utile varie selon l’activité ; comparer des rendements exige donc la même convention.
L’adaptation à une pratique répétée peut concerner le débit maximal, les propriétés musculaires, la coordination ou l’économie. La modification observée d’un résultat global ne permet pas de décider laquelle a changé. Des mesures complémentaires et un protocole cohérent sont nécessaires pour étayer une explication.
Construire un raisonnement à partir de résultats
Imaginons deux sujets réalisant une puissance externe identique. Le premier présente une fréquence cardiaque plus élevée, le second une ventilation plus élevée. On ne peut classer leur capacité générale à partir de ces deux chiffres isolés. Le volume d’éjection, l’extraction d’oxygène, la production de dioxyde de carbone, les conditions initiales et l’économie peuvent différer.
Une démarche pédagogique formule plusieurs hypothèses puis cherche une mesure qui les distingue. Si la question porte sur le coût énergétique, mesurer seulement la durée ne suffit pas. Si elle porte sur la précision gestuelle, une mesure cardiovasculaire ne répond pas directement. La pertinence d’une mesure dépend de la question, et non de sa sophistication technique.
- Demande de la tâche
- Transport de l’oxygène
- Utilisation musculaire
- Commande et coordination
- Chaleur et perception
Repères complémentaires, sans ordre ni lien de cause.
Limite : ces dimensions interagissent ; le schéma ne désigne pas un organe limitant unique ni une procédure diagnostique.
Normaliser sans effacer l’information
Une consommation d’oxygène peut être exprimée en L/min ou rapportée à la masse corporelle en mL/min/kg. Les deux présentations répondent à des questions différentes. Une valeur relative change si le dénominateur change, même lorsque la valeur absolue reste constante. Rapporter une mesure à la masse ne corrige pas automatiquement toutes les différences de taille ou de composition corporelle.
Avec 2,4 L/min et une masse de 60 kg, la valeur relative est 40 mL/min/kg. Avec la même consommation et 80 kg, elle est 30 mL/min/kg. Pour comprendre une évolution, il faut conserver les données absolues et les conditions du calcul. Une normalisation doit éclairer l’interprétation, pas cacher les grandeurs d’origine.
Deux moyens d’augmenter la consommation d’oxygène
Exercice. Au repos du modèle, débit = 5 L/min et différence artérioveineuse de contenu = 50 mL O₂/L. À l'effort, ces valeurs passent à 15 L/min et 100 mL O₂/L. Calculer les consommations et décomposer leur augmentation.
Correction. Au départ : 250 mL O₂/min. À l'effort : 1 500 mL O₂/min. Le débit triple et la différence de contenu double, d'où une multiplication par six de leur produit. Attribuer toute l'augmentation au cœur serait donc faux. La différence artérioveineuse représente une extraction nette à l'échelle du système considéré ; elle ne permet pas à elle seule de distinguer chaque tissu. Les contenus doivent être dans des unités compatibles avec le débit, et les mesures correspondre au même état physiologique.
Exercices progressifs
Exercice 1. Calculer la consommation pour un débit de 12 L/min et une différence artérioveineuse de 110 mL/L.
Exercice 2. Une PaO2 identique garantit-elle le même contenu artériel en oxygène ?
Exercice 3. Calculer la ventilation alvéolaire pour 0,60 L par cycle, 0,15 L d’espace mort et 16 cycles/min.
Exercice 4. Une concentration de lactate plus élevée prouve-t-elle que les muscles n’ont plus d’oxygène ?
Exercice 5. Convertir 2,1 L/min en mL/min/kg pour 70 kg et expliquer ce que la normalisation ajoute.
Corrections argumentées
Correction 1. 12 × 110 = 1 320 mL/min, soit 1,32 L/min. Le litre de sang disparaît dans le produit des unités.
Correction 2. Non. Le contenu dépend fortement de la concentration d’hémoglobine et de sa saturation ; la pression partielle ne les résume pas.
Correction 3. (0,60 − 0,15) × 16 = 7,2 L/min. La ventilation minute vaut 9,6 L/min.
Correction 4. Non. Le lactate est produit et utilisé en présence d’oxygène. Sa concentration reflète un bilan d’apparition et d’élimination.
Correction 5. 2 100/70 = 30 mL/min/kg. La valeur rapporte le débit d’utilisation à la masse, mais ne remplace pas la donnée absolue ni les conditions de mesure.
Références et portée
Rédaction originale et exemples construits pour l’apprentissage. Ressource de recoupement consultée le 1 octobre 2026 ; elle ne certifie pas le programme local.
Ce cours, en cartes de révision
Lire un cours ne suffit pas à le retenir. Dépose ce cours, ou le poly de ta fac, dans Ossik : il en sort des cartes sourcées à la page, qu’il te ressort au bon moment.