Ce cours réunit 5 parties : 1. Cytosquelette, moteurs et jonctions ; 2. Récepteurs et réseaux de signalisation ; 3. Cycle cellulaire et fidélité de la division ; 4. Homéostasie protéique, mitochondries et mort cellulaire ; 5. Méthodes de biologie cellulaire et raisonnement expérimental.
Partie 1 · Cytosquelette, moteurs et jonctions
Prérequis et objectifs
Prérequis : protéines polymériques, ATP et adhérence cellulaire.
À la fin de ce cours : comparer les trois réseaux ; attribuer moteurs et jonctions ; relier polarité structurale et mouvement.
Trois familles de filaments, trois logiques complémentaires
Le cytosquelette est un ensemble de polymères protéiques et de partenaires qui organise la forme, les forces et les déplacements intracellulaires. Il ne constitue pas une armature figée. Sa composition et sa dynamique changent pendant la migration, la division ou la différenciation. Les trois grandes familles sont les filaments d’actine, les microtubules et les filaments intermédiaires.
Un filament d’actine est assemblé à partir de sous-unités globulaires. Sa polarité distingue deux extrémités dont les cinétiques d’assemblage diffèrent. L’hydrolyse de l’ATP associé à l’actine modifie les propriétés du polymère. Selon les concentrations et protéines régulatrices, des sous-unités peuvent s’ajouter à une extrémité et se perdre à l’autre. Ce renouvellement ne signifie pas que le filament entier se déplace nécessairement comme une tige rigide.
Les microtubules sont des tubes constitués de protofilaments de dimères alpha/bêta-tubuline. Ils présentent une polarité et une instabilité dynamique : phases de croissance et de raccourcissement rapide se succèdent. Le comportement dépend notamment de l’état nucléotidique de la tubuline et de protéines associées. Les transitions catastrophe et sauvetage décrivent ces changements. Un microtubule n’est donc pas stable simplement parce qu’il paraît rectiligne sur un schéma.
Les filaments intermédiaires sont assemblés à partir de protéines fibreuses. Leur architecture apolaire convient surtout à la résistance mécanique, sans constituer un rail polarisé classique pour les moteurs de type kinésine. Les kératines caractérisent de nombreux épithéliums, la desmine les cellules musculaires et les neurofilaments les neurones. Les lamines forment un réseau nucléaire. L’expression dépend du type et de l’état cellulaire ; un marqueur isolé ne suffit pas toujours à identifier un tissu.
| Réseau | Sous-unités principales | Fonction dominante illustrée | Partenaire moteur |
|---|---|---|---|
| Actine | Actine globulaire | Cortex, migration, contraction | Myosines |
| Microtubules | Tubuline alpha/bêta | Trafic, fuseau, cils | Kinésines et dynéines |
| Filaments intermédiaires | Protéines propres au tissu | Résistance et cohésion | Pas de moteur de transport analogue usuel |
Organiser les réseaux dans l’espace
Le centrosome est un centre organisateur important des microtubules dans de nombreuses cellules animales. Il contient habituellement deux centrioles entourés de matériel péricentriolaire, où des complexes de gamma-tubuline participent à la nucléation. Il ne faut pas attribuer toute nucléation directement à la paroi des centrioles. D’autres sites peuvent organiser les microtubules, particulièrement dans les cellules différenciées.
Le cortex d’actine soutient la membrane plasmique. Les faisceaux des microvillosités augmentent la surface d’échange ; les réseaux ramifiés des lamellipodes contribuent à la protrusion d’une cellule migrante. Des protéines de réticulation, de coiffage et de sectionnement règlent leurs propriétés. La même actine peut donc former des architectures différentes selon les partenaires présents.
La migration exige une coordination spatiale : protrusion à l’avant, formation d’adhérences, transmission de la traction puis relâchement à l’arrière. Si l’adhérence est trop faible, la cellule glisse sans se propulser ; si elle est trop stable, elle reste retenue. Une augmentation de contractilité ne garantit donc pas une augmentation de vitesse.
Les moteurs transforment une énergie chimique en déplacement
Les myosines utilisent l’ATP et se déplacent sur l’actine ou exercent une force entre filaments. La myosine II participe à la contraction musculaire, à la tension corticale et à l’anneau de cytocinèse. D’autres myosines assurent le transport de cargos. Parler de myosine comme d’une seule molécule exclusivement musculaire masque cette diversité.
De nombreuses kinésines avancent vers l’extrémité positive des microtubules ; la dynéine cytoplasmique se déplace vers l’extrémité négative. Certaines kinésines ont des directions ou fonctions différentes, notamment dans l’organisation du fuseau. Les cargos recrutent des adaptateurs qui règlent leur liaison aux moteurs. Un transport bidirectionnel peut résulter de l’activité coordonnée de moteurs opposés.
Dans un axone, l’orientation majoritairement uniforme des microtubules permet de relier direction moléculaire et trajet cellulaire : de nombreuses kinésines assurent le transport vers la terminaison, la dynéine le retour vers le corps cellulaire. Cette correspondance ne doit pas être transposée sans vérification aux dendrites, dont l’organisation est plus complexe.
Cils, flagelle et microvillosités
Les cils mobiles typiques possèdent un axonème à neuf doublets périphériques et deux microtubules centraux. Les dynéines axonémales créent un glissement relatif converti en courbure par les contraintes structurales. Le battement dépend donc à la fois des moteurs et de l’architecture qui limite le glissement. Le corps basal présente neuf triplets et ancre le cil.
Le cil primaire est souvent unique, sensoriel et organisé selon un arrangement 9 + 0. Cette règle possède des nuances : tous les cils 9 + 0 ne sont pas nécessairement immobiles, comme l’illustrent certains cils embryonnaires. Les microvillosités, en revanche, contiennent principalement de l’actine et n’ont pas cet axonème. Les stéréocils correspondent également à de longues expansions à actine malgré leur nom.
| Spécialisation | Charpente | Fonction exemplaire |
|---|---|---|
| Microvillosité | Faisceau d’actine | Augmentation de surface absorbante |
| Cil mobile typique | Axonème microtubulaire | Déplacement de mucus ou de liquide |
| Cil primaire | Axonème généralement 9 + 0 | Réception de signaux |
| Stéréocil | Actine | Mécanoréception ou spécialisation de surface selon le tissu |
Jonctions et matrice : transmettre des forces
Les jonctions adhérentes associent des cadhérines entre cellules voisines à un ensemble de partenaires relié à l’actine. Elles contribuent à l’organisation collective d’un épithélium et à sa morphogenèse. Les desmosomes associent d’autres cadhérines à des plaques reliées aux filaments intermédiaires, renforçant la résistance mécanique. Les hémidesmosomes relient la cellule à la lame basale via des intégrines et des filaments intermédiaires ; ils ne sont pas des demi-jonctions entre deux cellules.
Les adhérences focales utilisent des intégrines pour relier matrice extracellulaire et actine. Elles sont des sites de transmission de forces et de signalisation. Les intégrines peuvent modifier leur affinité sous contrôle intracellulaire et, réciproquement, transmettre l’information d’un contact extérieur. Cette communication bidirectionnelle lie mécanique et décision cellulaire.
Les jonctions serrées associent notamment claudines et autres protéines membranaires. Elles règlent la perméabilité paracellulaire et contribuent à la polarité. Les jonctions communicantes forment des canaux entre cytoplasmes voisins, constitués de connexons. Elles permettent le passage de certains ions et petites molécules mais pas une libre circulation des grosses protéines. Une jonction d’étanchéité, d’ancrage ou de communication doit donc être identifiée par sa fonction et ses partenaires.
- Étanchéité paracellulaire
- Ancrage cellule-cellule
- Ancrage cellule-matrice
- Communication cytoplasmique
Repères complémentaires, sans ordre ni lien de cause.
Limite du schéma : les catégories sont fonctionnelles et peuvent interagir ; elles ne représentent pas une séquence de formation.
Lire une perturbation du cytosquelette
Une molécule qui empêche la dynamique des microtubules peut bloquer la mitose, mais aussi perturber le transport axonal ou le positionnement des organites. Attribuer un effet à la seule division demande donc des témoins adaptés. De même, une perte de fibres d’actine et une baisse de migration n’établissent pas à elles seules quel mécanisme est touché : protrusion, traction, adhérence et viabilité doivent être distinguées.
Un test utile combine imagerie dynamique, mesure de déplacement et suivi des adhérences. La mesure d’une longueur totale de filaments sur une image fixe renseigne sur un stock, tandis que le renouvellement exige une observation temporelle. Le lien structure-fonction devient solide lorsque plusieurs mesures convergent.
Décomposer un déplacement cellulaire
Une cellule qui migre sur un support doit coordonner quatre opérations : protrusion du bord avant, formation d'adhérences, traction du corps cellulaire, puis détachement de l'arrière. L'actine polymérisée contribue à la protrusion ; les intégrines et leurs adaptateurs transmettent des forces au support ; les myosines participent à la contraction. Une augmentation de contraction ne garantit donc pas une augmentation de vitesse.
Exercice d'interprétation. Une cellule présente un bord avant actif mais un arrière très étiré et immobile. Quelle étape examiner en premier ?
Correction. Le renouvellement des adhérences postérieures : des contacts trop persistants empêchent l'avancée malgré la protrusion. On suivrait simultanément position des adhérences, forme cellulaire et déplacement du centre de la cellule. Un bord qui avance seul peut déformer la cellule sans produire une migration nette.
Exercices progressifs
Exercice 1. Associer desmosome, adhérence focale et jonction communicante à leur fonction principale.
Exercice 2. Une expansion apicale contient des faisceaux d’actine. Est-ce un cil mobile typique ?
Exercice 3. Une vésicule axonale revient vers le soma. Quel moteur est un candidat classique ?
Exercice 4. Pourquoi une cellule trop adhérente peut-elle migrer moins vite malgré une forte contraction ?
Exercice 5. Un inhibiteur de microtubules réduit la sécrétion d’une cellule non divisante. Est-ce incompatible avec son mécanisme ?
Corrections argumentées
Correction 1. Le desmosome assure une cohésion mécanique cellule-cellule via les filaments intermédiaires ; l’adhérence focale relie actine et matrice ; la jonction communicante permet des échanges de petites molécules entre cytoplasmes.
Correction 2. Non. Une microvillosité ou un stéréocil est compatible avec l’actine. Un cil mobile typique contient un axonème de microtubules et des moteurs axonémaux.
Correction 3. La dynéine cytoplasmique, dans l’organisation axonale habituelle où les extrémités positives sont orientées vers la terminaison. La direction observée doit être reliée à l’orientation du réseau.
Correction 4. La traction doit être accompagnée d’un renouvellement des contacts. Si l’arrière reste fixé, l’énergie contractile augmente la tension sans produire un déplacement net efficace.
Correction 5. Non. Les microtubules servent aussi au trafic des cargos et au positionnement des organites. Il faut vérifier les étapes de synthèse, transport et fusion, ainsi que la viabilité, avant de localiser le blocage.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 2 · Récepteurs et réseaux de signalisation
Prérequis et objectifs
Prérequis : structure protéique, membranes, phosphorylation et nucléotides.
À la fin de ce cours : reconstituer une voie ; identifier les mécanismes d’amplification et d’arrêt ; interpréter une perturbation sans confondre corrélation et causalité.
Un signal est interprété par une cellule compétente
La signalisation transforme une information extracellulaire ou intracellulaire en changement de fonction. Un ligand ne porte pas à lui seul une réponse universelle : l’effet dépend du récepteur, des relais disponibles, de l’état métabolique et de l’histoire de la cellule. Une même hormone peut ainsi stimuler un tissu et inhiber une fonction dans un autre. L’absence de réponse peut venir du récepteur, mais aussi d’une étape située bien en aval.
La communication endocrine utilise la circulation pour atteindre des cibles éloignées. La paracrinie agit dans un voisinage, l’autocrinie sur la cellule émettrice, la signalisation par contact exige une proximité membranaire. La transmission synaptique combine un trajet axonal parfois long et une diffusion locale du neurotransmetteur. Ces catégories décrivent l’organisation spatiale ; elles ne déterminent pas à elles seules la vitesse de tous les effets.
Un récepteur possède une affinité pour son ligand, tandis que la réponse dépend aussi de son nombre et du couplage aux effecteurs. Occupation et effet ne sont pas obligatoirement proportionnels. Une amplification peut permettre une réponse importante avec une occupation partielle ; une désensibilisation peut réduire la réponse malgré une occupation élevée. Il faut donc distinguer une courbe de liaison et une courbe fonctionnelle.
Récepteurs couplés aux protéines G
Les RCPG possèdent classiquement sept segments transmembranaires. Leur activation favorise l’échange GDP-GTP sur la sous-unité alpha d’une protéine G hétérotrimérique. Les composantes activées modulent des effecteurs, puis l’hydrolyse du GTP contribue à terminer le signal. Le GTP ne correspond pas ici à un second messager diffusible produit massivement : il règle l’état d’un interrupteur protéique.
Gs stimule classiquement l’adénylate cyclase, augmentant l’AMPc ; Gi peut l’inhiber ; Gq active la phospholipase C bêta. La phospholipase C clive un phosphoinositide membranaire en IP3 et DAG. L’IP3 diffuse dans le cytosol et peut ouvrir des canaux du réticulum ; le DAG reste associé à la membrane et participe à l’activation de certaines protéines kinases C. La localisation physique des messagers explique une partie de leur spécificité.
L’AMPc active notamment la protéine kinase A. Une kinase phosphoryle des substrats ; une phosphatase retire des groupes phosphate. La phosphorylation peut activer, inhiber, modifier la localisation ou changer les partenaires d’une protéine. Une flèche « kinase → activation » n’est donc correcte que pour un substrat identifié. Les phosphodiestérases dégradent l’AMPc et limitent le signal dans le temps et l’espace.
Récepteurs à activité enzymatique et petites GTPases
De nombreux récepteurs à activité tyrosine kinase s’activent par rapprochement de sous-unités et phosphorylation. Les tyrosines phosphorylées recrutent des partenaires contenant des domaines de reconnaissance. Des protéines adaptatrices relient alors le récepteur à plusieurs branches, notamment Ras-MAPK et PI3K-Akt. Une voie peut favoriser prolifération, survie ou modifications métaboliques selon le contexte.
Ras est une petite GTPase monomérique. Les facteurs d’échange favorisent le remplacement du GDP par du GTP ; les protéines accélératrices de l’activité GTPase favorisent son retour à l’état GDP. La comparaison avec une protéine G hétérotrimérique est utile pour le principe GDP/GTP, mais les structures et modes d’activation ne sont pas identiques.
Les récepteurs de certaines cytokines n’ont pas eux-mêmes une activité kinase intrinsèque mais recrutent des kinases associées, par exemple des JAK. Des facteurs STAT peuvent alors être phosphorylés, s’associer et influencer la transcription. Dire « tout récepteur enzymatique est lui-même une enzyme » ferait disparaître cette distinction importante.
| Famille | Relais illustratif | Réponse possible | Point d’arrêt |
|---|---|---|---|
| RCPG-Gs | Adénylate cyclase, AMPc | Modification enzymatique | Hydrolyse GTP, phosphodiestérase |
| RCPG-Gq | PLC, IP3, DAG | Signal calcique | Recapture du calcium, métabolisme des messagers |
| Récepteur tyrosine kinase | Ras-MAPK ou PI3K-Akt | Transcription, survie | Phosphatases, internalisation |
| Récepteur de cytokine | JAK-STAT | Programme transcriptionnel | Inhibiteurs et déphosphorylation |
Calcium et récepteurs intracellulaires
Le calcium cytosolique libre est maintenu bas par rapport aux réserves extracellulaires et réticulaires. Une ouverture de canaux produit donc un signal rapide. Des protéines comme la calmoduline détectent l’augmentation et modifient l’activité d’effecteurs. La cellule code parfois l’information dans la fréquence des oscillations ou leur localisation, pas seulement dans une concentration moyenne.
L’arrêt exige la fermeture des canaux et la recapture ou l’export du calcium. Les pompes SERCA le transportent vers le réticulum ; d’autres pompes et échangeurs participent à sa sortie cellulaire. Une réponse calcique durable peut devenir dommageable. La même molécule est ainsi un messager physiologique et, dans d’autres conditions, un médiateur de lésion.
Certains ligands lipophiles traversent la membrane et rencontrent des récepteurs intracellulaires capables de réguler la transcription. Les hormones stéroïdes en fournissent un exemple. Les récepteurs peuvent se trouver dans le cytosol ou le noyau selon leur famille et leur état. Le délai transcriptionnel est généralement supérieur à celui d’une ouverture de canal, mais des effets rapides et indirects existent. Il faut éviter de transformer une tendance pédagogique en règle sans exception.
Amplification, intégration et désensibilisation
Une enzyme activée peut produire plusieurs molécules de second messager ; chaque kinase peut phosphoryler plusieurs substrats. Cette cascade amplifie le signal. L’amplification augmente aussi le besoin de freins. Les phosphatases, les protéines accélérant l’hydrolyse du GTP, la dégradation des ligands et l’internalisation des récepteurs contribuent au retour vers l’état basal.
La désensibilisation d’un RCPG peut impliquer phosphorylation puis recrutement d’arrestines. L’endocytose peut favoriser recyclage et récupération de sensibilité, ou dégradation et diminution durable du nombre de récepteurs. Elle ne signifie donc pas toujours arrêt définitif. Certaines signalisations se poursuivent depuis des compartiments internes.
Une réponse peut intégrer plusieurs entrées. Une cellule peut exiger simultanément un facteur de croissance et une adhérence appropriée. Une voie permissive n’est pas nécessairement suffisante seule. Les rétrocontrôles négatifs stabilisent ou raccourcissent le signal ; les rétrocontrôles positifs peuvent créer un seuil et maintenir un état. Leur existence explique pourquoi un graphe linéaire ne rend pas toute la dynamique.
- Ligand
- Récepteur
- Messager ou relais
- Effecteur
- Réponse
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il omet branches, compartiments et rétrocontrôles. Les étapes ne doivent pas être assimilées à un nombre universel de molécules.
Construire une preuve causale
Si un ligand augmente l’AMPc et la sécrétion, une corrélation temporelle est observée. Si un inhibiteur de PKA supprime la sécrétion sans empêcher l’augmentation d’AMPc, PKA est compatible avec une position en aval de l’AMPc. Mais l’inhibiteur peut avoir des cibles supplémentaires. Une seconde perturbation indépendante et une restauration fonctionnelle renforcent l’inférence.
Une activation artificielle de PKA qui restaure la réponse malgré le blocage du récepteur constitue un argument d’ordre des étapes, sans prouver que la voie naturelle est exclusivement linéaire. Il faut vérifier que l’activation artificielle n’impose pas un état irréaliste. Quantité totale, phosphorylation, localisation, activité enzymatique et réponse finale mesurent des choses différentes : un anticorps fluorescent contre une protéine totale ne révèle pas automatiquement sa fraction active.
Localiser un défaut par contournement
Situation. Le ligand augmente normalement un marqueur de réponse de 1 à 5 unités. Dans une cellule test, le ligand laisse le marqueur à 1, mais un activateur direct de l'effecteur en aval l'élève à 5. Où placer le défaut ?
Correction. La capacité de réponse située en aval de l'effecteur est conservée dans ces conditions. Le défaut est compatible avec une étape en amont : récepteur, couplage ou production du second messager. Il n'est pas localisé au seul récepteur. Mesurer successivement liaison du ligand, activation du relais et concentration du messager permet de réduire les possibilités. Une stimulation supraphysiologique peut masquer un défaut partiel ; le contournement n'est convaincant qu'avec des doses contrôlées et une réponse indépendante attestant la viabilité.
Exercices progressifs
Exercice 1. Un ligand agit sur deux tissus avec des effets opposés. Est-ce incompatible avec une liaison spécifique ?
Exercice 2. Quels produits de la PLC diffusent dans le cytosol ou restent associés à la membrane ?
Exercice 3. Une augmentation de phosphorylation signifie-t-elle toujours une augmentation d’activité ?
Exercice 4. Un inhibiteur bloque la réponse mais pas l’AMPc. Que peut-on inférer et que faut-il contrôler ?
Exercice 5. Après exposition prolongée, le ligand reste abondant mais la réponse diminue. Proposer trois mécanismes.
Corrections argumentées
Correction 1. Non. Des récepteurs différents ou des réseaux intracellulaires différents peuvent interpréter le même ligand autrement. La spécificité de liaison n’impose pas une réponse unique à tous les tissus.
Correction 2. L’IP3 est soluble et peut atteindre les récepteurs du réticulum. Le DAG reste dans la membrane et y recrute ou active des partenaires. Cette différence de localisation participe à la coordination des réponses.
Correction 3. Non. Cela dépend du site et de la protéine. Une phosphorylation peut inhiber une enzyme, changer sa localisation ou créer un site de liaison sans modifier directement sa catalyse.
Correction 4. L’étape ciblée est compatible avec une position en aval de la production d’AMPc. Il faut contrôler la spécificité de l’inhibiteur, la viabilité et une autre réponse indépendante, puis utiliser si possible une perturbation complémentaire.
Correction 5. Désensibilisation du récepteur, internalisation avec réduction de sa présence en surface, ou renforcement d’un frein intracellulaire tel qu’une phosphodiestérase. Ces possibilités se distinguent par mesures du récepteur, du messager et de l’effecteur.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 3 · Cycle cellulaire et fidélité de la division
Prérequis et objectifs
Prérequis : chromosomes, réplication de l’ADN et cytosquelette.
À la fin de ce cours : compter chromosomes et ADN ; expliquer les transitions ; distinguer contrôle de réplication et contrôle du fuseau.
Le cycle ordonne des événements incompatibles simultanément
Une cellule proliférante doit croître, copier son génome puis répartir ce matériel en deux cellules. Les phases G1, S, G2 et M décrivent cet ordre. G1 prépare notamment les conditions d’entrée en réplication ; S duplique l’ADN ; G2 précède la mitose ; M comprend la ségrégation chromosomique et la division cellulaire. La durée varie fortement selon le type cellulaire et les conditions. Un schéma en cercle à secteurs égaux n’est pas une mesure de temps.
La quiescence, souvent notée G0, correspond à une sortie du cycle dont la réversibilité dépend de la cellule et du contexte. Une cellule terminalement différenciée, une cellule quiescente et une cellule sénescente ne sont pas équivalentes. La sénescence est un état durable associé à une réponse au stress et à des changements fonctionnels ; elle ne se résume pas à une longue phase G1.
Une cellule diploïde humaine en G1 possède 46 chromosomes et une quantité d’ADN notée 2C. Après la phase S, elle conserve 46 chromosomes, chacun à deux chromatides, et possède 4C d’ADN. La ploïdie reste 2n. À l’anaphase, les chromatides sœurs séparées deviennent des chromosomes indépendants ; compter sur toute la cellule encore non divisée exige de préciser cette étape. À la fin de la cytocinèse, chaque cellule fille retrouve 46 chromosomes et 2C.
Cyclines, CDK et transitions
Les kinases dépendantes des cyclines, ou CDK, modifient par phosphorylation de nombreux substrats. Leur activité dépend de l’association à une cycline, de phosphorylations régulatrices et d’inhibiteurs. Les cyclines sont synthétisées puis éliminées à des moments spécifiques. Cette variation transforme une activité enzymatique en séquence temporelle.
La transition G1/S intègre disponibilité de facteurs de croissance, état métabolique et intégrité du génome. Dans un modèle central, la protéine RB limite l’activité de facteurs E2F ; sa phosphorylation favorise l’expression de gènes nécessaires à la réplication. Ce mécanisme n’est pas un interrupteur isolé : plusieurs boucles et contrôles assurent la décision. Un signal mitogène ne signifie pas que toute cellule endommagée doit entrer immédiatement en S.
L’activité de complexes cycline-CDK en mitose entraîne condensation chromosomique, réorganisation du cytosquelette et, chez de nombreuses cellules animales, désassemblage de l’enveloppe nucléaire. Leur inactivation permet les événements de sortie. L’irréversibilité relative de certaines transitions repose sur la destruction de protéines, et pas uniquement sur une phosphorylation réversible.
Répliquer une fois : licence et déclenchement séparés
Les origines de réplication sont préparées par assemblage de complexes pendant une fenêtre où l’activité CDK est basse. Ce processus de licence implique notamment le chargement d’hélicases. Leur activation en phase S déclenche les fourches. Les conditions qui activent les origines empêchent en même temps leur nouveau chargement, limitant la rereplication.
Séparer autorisation et déclenchement permet de copier chaque région une seule fois par cycle. Si une origine déjà utilisée pouvait être licenciée de nouveau en S, certaines portions seraient surreprésentées. Le résultat ne serait pas une simple accélération de la croissance, mais une anomalie de dosage et une instabilité génomique.
Un stress réplicatif peut ralentir les fourches et provoquer l’activation de voies de surveillance. Ces contrôles ajustent progression et réparation. Ils ne garantissent pas une fidélité parfaite : une cellule peut accumuler des lésions malgré eux. La biologie du contrôle décrit une réduction des risques, pas une impossibilité absolue d’erreur.
Mitose : établir puis rompre une cohésion
Les chromosomes se condensent en prophase. En prométaphase, après disparition de l’enveloppe dans une mitose ouverte, les microtubules accèdent aux kinétochores assemblés sur les centromères. Les chromosomes établissent progressivement des attachements avec les deux pôles. La métaphase correspond à une organisation compatible avec leur séparation équilibrée, pas à une phase où les chromosomes seraient durablement immobiles.
Les cohésines maintiennent les chromatides sœurs associées. Au déclenchement de l’anaphase, l’activation de la séparase permet de cliver des composants de cette cohésion. La séparase était inhibée notamment par la sécurine ; la destruction de cette dernière est contrôlée par le complexe ubiquitine-ligase APC/C. L’APC/C participe également à la destruction de cyclines mitotiques, coordonnant séparation et sortie de mitose.
Le point de contrôle du fuseau retarde ce déclenchement lorsque les attachements ne sont pas satisfaisants. Un défaut d’attachement ne doit pas être confondu avec une cassure d’ADN : les capteurs et les relais ne sont pas identiques. Les mécanismes de correction des attachements et le contrôle de progression coopèrent pour réduire les erreurs de ségrégation.
En anaphase, les chromosomes se rapprochent des pôles et les pôles peuvent s’éloigner. En télophase, les enveloppes nucléaires se reforment et les chromosomes se décondensent. L’anneau contractile d’actine et de myosine participe à la cytocinèse. La division nucléaire et la division cytoplasmique sont donc deux processus coordonnés mais distincts : un échec de cytocinèse peut laisser une cellule à plusieurs noyaux.
- Attachements satisfaisants
- Activation APC/C
- Dégradation de sécurine
- Activation séparase
- Séparation des chromatides
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : les voies de contrôle sont simplifiées ; l’APC/C possède plusieurs substrats et la mécanique du fuseau n’est pas représentée.
Dommages, réparation et devenir cellulaire
Une lésion de l’ADN active des réseaux de signalisation pouvant ralentir le cycle. La protéine p53 peut favoriser l’expression d’inhibiteurs de CDK, dont p21, ou orienter vers d’autres programmes selon l’intensité et la durée du stress. L’arrêt laisse du temps à la réparation ; si celle-ci échoue, sénescence ou mort peuvent survenir. Toutes les réponses à une lésion ne passent toutefois pas exclusivement par p53.
Une mutation supprimant un frein ne « donne » pas une fonction parfaite de prolifération : elle autorise la progression avec davantage d’anomalies. Le développement tumoral implique souvent l’accumulation de perturbations de prolifération, survie, réparation et interactions tissulaires. On ne déduit pas une transformation complète d’un seul résultat de cycle.
| Mesure | Ce qu’elle renseigne | Limite principale |
|---|---|---|
| Contenu en ADN | Populations 2C, intermédiaires et 4C | Ne sépare pas G2 de M à lui seul |
| Incorporation d’un analogue nucléotidique | Synthèse d’ADN durant le marquage | Certaines synthèses de réparation peuvent contribuer |
| Marqueur mitotique | Fraction engagée dans certains états de M | Dépend du marqueur et de sa fenêtre |
| Nombre de cellules | Bilan proliferation-mort | Une baisse n’identifie pas le mécanisme |
Une population n’est pas une horloge individuelle
En cytométrie, un pic 2C contient typiquement les cellules G1/G0 ; une distribution entre 2C et 4C est compatible avec S ; un pic 4C rassemble notamment G2 et M. Une augmentation du pic 4C peut signifier un allongement de G2 ou de M. Pour trancher, il faut un marqueur supplémentaire et idéalement une cinétique. Des agrégats de deux cellules 2C peuvent également produire un signal apparent 4C : l’exclusion des doublets est indispensable.
La proportion d’une phase dans une population en croissance dépend de sa durée mais aussi des conditions de croissance et de la mortalité. On ne peut transformer automatiquement 20 % de cellules en S en « chaque cellule passe exactement 20 % de sa vie en S ». Cette conversion demande des hypothèses explicites sur l’état stationnaire de la population.
Relier quantité d’ADN et progression
Problème. Une impulsion brève marque les cellules qui synthétisent leur ADN. Aussitôt après, les cellules marquées ont une quantité d'ADN comprise entre 2C et 4C. Plus tard, une partie des cellules marquées apparaît à 2C. Ont-elles perdu la moitié de leurs chromosomes ?
Correction. Non : des cellules initialement en phase S ont terminé la réplication puis se sont divisées. Chaque cellule fille diploïde retrouve 2C, avec 46 chromosomes dans le modèle humain somatique normal. Le marquage suit une cohorte, alors qu'un histogramme non marqué mélange des cellules à différents stades. Un pic 4C peut correspondre à G2, à la mitose ou à des doublets techniques ; il faut donc un marqueur de mitose et un filtrage des agrégats avant de conclure à l'étape bloquée.
Lecture visuelle : Cycle cellulaire : quantité d’ADN par cellule
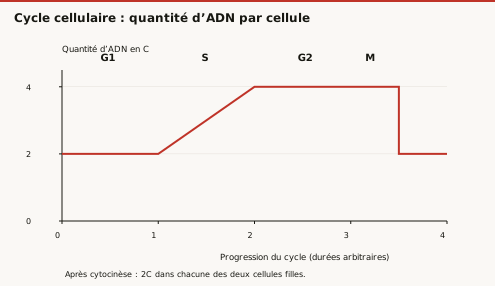
Question de lecture. Pourquoi le passage de 2C à 4C ne suffit-il pas à conclure que la cellule est tétraploïde ?
Correction. La réplication duplique les chromatides de chaque chromosome sans ajouter un jeu de chromosomes homologues. Une cellule diploïde en G2 est habituellement 2n, 4C.
Exercices progressifs
Exercice 1. Donner chromosomes, chromatides et quantité d’ADN d’une cellule humaine diploïde juste après S.
Exercice 2. Pourquoi séparer licence et activation des origines ?
Exercice 3. Quel événement rend possible la séparation des chromatides sœurs ?
Exercice 4. Un histogramme montre davantage de cellules 4C après traitement. Proposer deux explications biologiques et un artéfact.
Exercice 5. Un nombre cellulaire reste constant pendant 24 heures. Peut-on conclure à un arrêt complet de prolifération ?
Corrections argumentées
Correction 1. 46 chromosomes, 92 chromatides et 4C d’ADN. La ploïdie reste 2n puisque le nombre de jeux de chromosomes homologues n’a pas changé.
Correction 2. La séparation temporelle empêche qu’une origine déjà utilisée soit de nouveau préparée puis activée au cours de la même phase S. Elle contribue à garantir une réplication unique par cycle.
Correction 3. Le clivage de composants des cohésines par la séparase, après levée de son inhibition, permet la séparation ; le fuseau fournit ensuite les forces nécessaires au déplacement.
Correction 4. Un arrêt en G2 ou un blocage mitotique sont possibles. Des doublets de cellules 2C peuvent imiter une cellule 4C. Un marqueur mitotique et l’exclusion des agrégats aident à distinguer ces cas.
Correction 5. Non. Une prolifération équilibrée par la mort donne aussi un effectif constant. Il faut mesurer séparément synthèse d’ADN, divisions et viabilité, ou suivre les cellules individuellement.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 4 · Homéostasie protéique, mitochondries et mort cellulaire
Prérequis et objectifs
Prérequis : enzymes, ubiquitine, mitochondries et compartiments endomembranaires.
À la fin de ce cours : relier synthèse et élimination ; distinguer protéasome et lysosome ; expliquer les voies de mort avec leurs critères.
Une cellule maintient des flux, pas un inventaire immobile
Les protéines sont continuellement synthétisées, repliées, modifiées et éliminées. L’homéostasie protéique, ou protéostasie, dépend de l’équilibre entre ces flux. Une augmentation de quantité peut provenir d’une synthèse accrue ou d’une dégradation réduite. Un stock normal peut masquer des flux tous deux accélérés. L’étude du renouvellement exige donc des cinétiques et non une simple photographie de l’abondance.
Les chaperonnes reconnaissent notamment des régions exposées inappropriées et limitent les agrégations. Certaines assistent le repliement, d’autres participent à l’orientation vers une dégradation. Elles ne changent pas la séquence primaire du client. Une mutation qui empêche le repliement peut donc produire une perte de fonction même si le gène est transcrit normalement.
La cellule doit distinguer une protéine temporairement non repliée d’une protéine durablement endommagée. Cette décision repose sur des interactions et des tentatives successives, avec des compromis entre économie et sécurité. Dégrader trop vite gaspille des protéines récupérables ; conserver trop longtemps des agrégats compromet l’organisation cellulaire.
Ubiquitine et protéasome
L’ubiquitine est une petite protéine attachée à des substrats par une succession d’enzymes E1, E2 et E3. E1 active l’ubiquitine avec consommation d’ATP ; E2 la porte ; E3 contribue fortement à la sélection du substrat et au transfert. Des chaînes de topologies différentes peuvent porter des informations distinctes. Toute ubiquitination n’est donc pas un ordre universel de destruction : elle intervient aussi dans signalisation, trafic et réparation.
Le protéasome dégrade de nombreuses protéines cytosoliques ou nucléaires sélectionnées. Des complexes régulateurs reconnaissent le signal, retirent et recyclent l’ubiquitine, déplient le substrat et l’introduisent dans une chambre protéolytique. La dégradation produit des peptides, ensuite transformés ou utilisés dans certains processus de présentation antigénique. Le protéasome n’englobe pas un organite entier et n’est pas limité par une membrane lysosomale.
La destruction de cyclines illustre une dégradation régulatrice : éliminer une protéine fonctionnelle au bon moment permet une transition du cycle. Le contrôle qualité n’est donc qu’une partie des fonctions du système ubiquitine-protéasome. Un inhibiteur de ce système perturbe simultanément renouvellement, signalisation et progression cellulaire.
Autophagie et lysosome
La macroautophagie forme un compartiment à double membrane autour de matériel cytoplasmique. Après fermeture, l’autophagosome fusionne avec des compartiments lysosomaux ; les hydrolases dégradent le contenu. La microautophagie et l’autophagie médiée par chaperonnes suivent d’autres mécanismes. Le mot autophagie désigne donc plusieurs voies, même si la macroautophagie est souvent celle représentée dans les cours.
Une privation de nutriments peut augmenter le recyclage afin de libérer des éléments réutilisables. Des voies comme mTOR et AMPK contribuent à coupler disponibilité énergétique et autophagie. La réponse n’est pas toujours un programme de mort : elle peut protéger la survie en situation de stress. Inversement, son dérèglement peut participer à des lésions selon le contexte.
Le flux autophagique comprend formation, maturation, fusion et dégradation. Accumuler des autophagosomes peut indiquer une activation de leur formation ou une panne en aval. La distinction exige de mesurer le devenir de marqueurs et de cargos, souvent avec une perturbation contrôlée de la dégradation lysosomale. Compter des points fluorescents ne suffit pas à conclure que la cellule recycle mieux.
| Voie | Substrats illustratifs | Compartiment final | Échelle |
|---|---|---|---|
| Protéasome | Protéines sélectionnées | Complexe protéolytique cytosolique ou nucléaire | Molécule protéique |
| Endolysosome | Matériel internalisé | Lysosome | Cargos extracellulaires et membranaires |
| Macroautophagie | Portions de cytoplasme, organites | Autolysosome | Structures plus volumineuses |
Mitochondries : énergie, qualité et signalisation
La mitochondrie possède une membrane externe, un espace intermembranaire, une membrane interne très sélective et une matrice. La chaîne respiratoire transfère des électrons vers l’oxygène et utilise une partie de l’énergie pour déplacer des protons. Leur retour par l’ATP synthase est couplé à la production d’ATP. Le gradient comporte une composante électrique et une composante chimique.
La majorité des protéines mitochondriales est codée dans le noyau, synthétisée dans le cytosol puis importée. Le génome mitochondrial ne suffit pas à construire l’organite. Fusion et fission modifient le réseau mitochondrial, facilitent la distribution de composants et contribuent au contrôle qualité. Des mitochondries endommagées peuvent être sélectionnées pour une élimination par mitophagie.
Les espèces réactives de l’oxygène ne sont pas uniquement des déchets : à faible niveau et dans un contexte contrôlé, elles participent à des signalisations. Un excès endommage protéines, lipides et ADN. Les systèmes antioxydants limitent ces dommages. La distinction entre signal et toxicité dépend donc de la quantité, du lieu et de la durée.
Les peroxysomes sont des organites à une seule membrane, impliqués notamment dans certaines oxydations lipidiques et le métabolisme du peroxyde d’hydrogène. La catalase contribue à sa dégradation. Ils n’utilisent pas une chaîne respiratoire mitochondriale pour produire l’ATP selon le même mécanisme. L’existence de réactions oxydatives communes ne permet pas de les assimiler à de petites mitochondries.
Apoptose intrinsèque et extrinsèque
L’apoptose est une forme de mort régulée caractérisée notamment par activation de caspases, modifications du cytosquelette, condensation et fragmentation nucléaires, puis élimination de fragments cellulaires. Dans la voie intrinsèque, des signaux de stress modifient l’équilibre entre membres pro- et antiapoptotiques de la famille BCL-2. BAX et BAK peuvent participer à la perméabilisation de la membrane mitochondriale externe.
La libération de cytochrome c permet l’assemblage d’un complexe apoptosome avec APAF-1 et l’activation d’une caspase initiatrice. Des caspases effectrices clivent ensuite de nombreux substrats. L’événement mitochondrial concerne d’abord la membrane externe ; il ne doit pas être confondu mécaniquement avec une simple fuite de protons à travers la membrane interne.
La voie extrinsèque part de certains récepteurs de mort et de complexes de signalisation qui activent des caspases initiatrices. Selon la cellule, une amplification mitochondriale peut intervenir. Les voies ne sont donc pas deux tuyaux totalement indépendants. Une exposition de phosphatidylsérine facilite la reconnaissance par les phagocytes, limitant habituellement la dispersion du contenu cellulaire.
- Stress persistant
- Perméabilisation mitochondriale externe
- Apoptosome
- Caspases effectrices
- Démantèlement et élimination
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : les seuils, les inhibiteurs et les communications avec d’autres voies sont omis ; tous les stress ne déclenchent pas une apoptose.
Mort, sénescence et critères de mesure
La nécrose décrit une morphologie de gonflement et de rupture membranaire, souvent inflammatoire. Certaines morts à morphologie nécrotique sont elles-mêmes régulées, comme la nécroptose. Il serait donc faux d’opposer toutes les apoptoses programmées à toutes les nécroses accidentelles. D’autres voies, dont la pyroptose ou la ferroptose, possèdent des mécanismes spécifiques ; leur étude détaillée dépasse cette première comparaison.
La sénescence concerne des cellules vivantes durablement arrêtées, souvent avec des changements de sécrétion et de métabolisme. Une cellule sénescente n’est pas une cellule apoptotique en attente obligatoire. L’issue dépend de la nature du stress et du contexte tissulaire.
Pour caractériser une mort, on associe plusieurs critères : intégrité membranaire, activité des caspases, morphologie, exposition de phosphatidylsérine et cinétique. Une cellule positive à un seul marqueur peut correspondre à plusieurs états. Un test de viabilité métabolique faible peut aussi refléter une activité réduite sans disparition immédiate des cellules. La convergence des mesures est plus informative qu’un nom de voie attribué à partir d’une couleur.
Mesurer le recyclage avec un blocage terminal
Expérience. On quantifie un marqueur d'autophagosomes dans quatre conditions : témoin, stimulus, inhibiteur de dégradation lysosomale, stimulus plus inhibiteur. Le stimulus seul augmente le stock ; quelle comparaison renseigne le mieux sur l'arrivée de nouveaux autophagosomes ?
Correction. Comparer l'accumulation pendant une même durée en présence d'inhibiteur, avec et sans stimulus. Si davantage de structures s'accumulent sous stimulus lorsque la sortie est bloquée, cela soutient une hausse de formation. Si le stimulus n'ajoute rien au blocage terminal, un défaut de dégradation est possible, mais saturation et toxicité doivent être exclus. Le raisonnement repose sur bilan = entrées − sorties. Une image statique ou un seul marqueur ne démontre donc ni une autophagie efficace ni une meilleure survie ; le devenir du cargo et la viabilité complètent l'analyse.
Peroxysome : une oxydation qui n'est pas une mitochondrie miniature
Le peroxysome est limité par une membrane et contient des enzymes impliquées notamment dans des réactions oxydatives, le métabolisme de certains lipides et le traitement du peroxyde d'hydrogène. La catalase contribue à contrôler ce dernier. Réaliser une oxydation n'implique pas automatiquement de coupler l'énergie libérée à une chaîne respiratoire produisant de l'ATP comme dans la membrane mitochondriale interne.
Les protéines peroxysomales sont codées par le génome nucléaire et utilisent des signaux d'adressage et une machinerie d'import spécifiques. Le peroxysome ne possède pas un génome autonome comparable à l'ADN mitochondrial. Un signal d'adressage détermine un trajet ; il ne suffit pas de classer une protéine comme « enzyme oxydative » pour connaître son compartiment.
Les organites coopèrent : les produits d'un métabolisme peuvent être transférés et utilisés ailleurs, et leur renouvellement participe à l'homéostasie. Le mot détoxification ne doit pas laisser croire que le peroxysome neutralise indistinctement toute substance. Ses fonctions dépendent d'enzymes et de substrats précis.
Exercice. Une protéine enzymatique est normalement active après purification, mais absente du peroxysome dans une cellule. Peut-on exclure un défaut cellulaire sous prétexte que sa catalyse est intacte ? Correction. Non. Un défaut d'adressage, de reconnaissance du signal ou d'import peut empêcher l'enzyme d'atteindre son substrat et ses partenaires. Activité intrinsèque et localisation sont deux conditions nécessaires différentes. Une mesure sur enzyme isolée ne teste pas tout son fonctionnement dans la cellule.
Exercices progressifs
Exercice 1. Toute ubiquitination entraîne-t-elle une dégradation protéasomale ?
Exercice 2. Comparer l’élimination d’une cycline et celle d’une mitochondrie entière.
Exercice 3. Un traitement augmente les autophagosomes mais diminue la dégradation des cargos. Comment interpréter ?
Exercice 4. Quelle membrane mitochondriale est centrale dans la libération de cytochrome c lors de l’apoptose intrinsèque ?
Exercice 5. Une cellule ne prolifère plus, conserve sa membrane et présente un métabolisme actif. Est-elle nécessairement morte ?
Corrections argumentées
Correction 1. Non. La topologie des chaînes et le contexte déterminent le message ; l’ubiquitine participe aussi au trafic et à la signalisation. Il faut identifier le type de modification et son lecteur.
Correction 2. La cycline peut être sélectionnée et dégradée par le protéasome. Une mitochondrie entière nécessite une voie telle que la mitophagie puis la dégradation lysosomale. Les échelles physiques et les machineries diffèrent.
Correction 3. Un blocage tardif de maturation, fusion ou dégradation est compatible avec ces données. Le stock augmente parce que sa sortie diminue, sans amélioration du flux de recyclage.
Correction 4. La membrane externe est perméabilisée, permettant la sortie du cytochrome c de l’espace intermembranaire. La membrane interne sert au couplage énergétique ; les deux événements ne sont pas identiques.
Correction 5. Non. Quiescence, différenciation ou sénescence sont possibles. Il faut étudier réversibilité, marqueurs et contexte ; l’absence de division seule ne définit pas la mort.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 5 · Méthodes de biologie cellulaire et raisonnement expérimental
Prérequis et objectifs
Prérequis : organisation cellulaire, concentrations et distinction observation/hypothèse.
À la fin de ce cours : choisir une méthode selon la question ; identifier les témoins ; séparer quantité, activité, localisation et flux.
Définir ce que l’on cherche à mesurer
Une expérience de biologie cellulaire commence par une variable précise. Demander si une protéine « augmente » peut signifier plus d’ARN, plus de molécules, plus d’activité, davantage de signal fluorescent dans une zone ou une présence plus longue. Ces résultats ne sont pas équivalents. Un changement de fluorescence peut résulter d’une quantité différente, d’une redistribution, d’un pH modifié ou d’un réglage d’acquisition.
Une bonne hypothèse relie une perturbation, un mécanisme et une mesure attendue. « Le traitement bloque le recyclage du récepteur, donc sa fraction internalisée augmente et son retour à la surface ralentit » est testable. « Le traitement abîme la cellule » reste trop vague. La viabilité doit être mesurée, mais elle ne remplace pas la mesure du mécanisme proposé.
Le témoin négatif définit le signal de fond ou l’état sans intervention. Un témoin positif montre que le système détecte bien l’événement recherché. Un témoin de véhicule distingue l’effet de la substance de celui de son solvant. La répétition biologique reproduit l’expérience sur des préparations indépendantes ; plusieurs images d’une même culture sont des observations techniques et ne remplacent pas cette indépendance.
Microscopie optique et électronique
La microscopie optique classique permet d’observer cellules et grands compartiments. Sa résolution dépend de la longueur d’onde et de l’ouverture numérique. Agrandir davantage une image qui ne résout pas deux objets proches ne crée pas d’information : on agrandit aussi le flou. Le grossissement et la résolution doivent donc être distingués.
La fluorescence détecte des molécules marquées directement ou par des sondes. Elle offre une spécificité conditionnée par le marqueur. Un anticorps peut reconnaître d’autres cibles ; une protéine fluorescente fusionnée peut modifier l’adressage ou la fonction du cargo. Les témoins sans anticorps primaire, les cellules dépourvues de cible et les comparaisons avec une autre méthode répondent à des problèmes différents.
La microscopie confocale réduit la contribution de plans hors foyer et permet des coupes optiques. Une pile de plans peut reconstruire une distribution tridimensionnelle. L’image reste cependant limitée par sa résolution et son échantillonnage. Deux signaux colocalisés dans un pixel ne prouvent pas une interaction moléculaire directe : ils peuvent simplement occuper le même compartiment.
La microscopie électronique en transmission révèle des ultrastructures sur des coupes fines ; la microscopie électronique à balayage renseigne surtout sur des surfaces selon la préparation. Les échantillons sont généralement fixés et préparés par des traitements susceptibles d’introduire des artéfacts. Une structure absente d’une coupe n’est pas forcément absente de toute la cellule ; la coupe peut l’avoir évitée.
| Question | Méthode adaptée | Limite à contrôler |
|---|---|---|
| Où se trouve une protéine ? | Fluorescence avec marqueur validé | Spécificité et effets du marquage |
| Quelle ultrastructure ? | Microscopie électronique | Fixation et plan de coupe |
| Comment évolue un organite ? | Imagerie de cellules vivantes | Phototoxicité et cadence |
| Deux protéines interagissent-elles ? | Méthodes d’interaction complémentaires | Colocalisation seule insuffisante |
Fractionnement et enrichissement
Le fractionnement débute par une rupture contrôlée des cellules. Une centrifugation différentielle sépare des fractions selon taille, densité et conditions : des structures volumineuses sédimentent à faible vitesse, d’autres nécessitent des forces plus élevées. Les fractions obtenues sont des enrichissements, pas automatiquement des organites purs. Une centrifugation sur gradient de densité peut améliorer la séparation.
La pureté se contrôle avec plusieurs marqueurs de compartiments. Si une protéine est présente dans une fraction mitochondriale contenant beaucoup de réticulum, sa localisation reste incertaine. On cherche un enrichissement relatif à la quantité chargée et on vérifie des contaminants. L’absence de marqueur ne prouve pas une pureté absolue si la méthode manque de sensibilité.
Un traitement par protéase peut aider à déterminer si un domaine est exposé à l’extérieur d’un organite isolé ou protégé dans sa lumière. On compare avec et sans perméabilisation membranaire. La résistance à la protéase sans détergent puis sa disparition après détergent soutient une protection par une membrane intacte. Il faut vérifier que la protéase fonctionne et que le compartiment n’est pas déjà rompu.
Cytométrie en flux
La cytométrie mesure individuellement des cellules ou particules passant devant un système optique. La diffusion et la fluorescence fournissent des variables liées à la taille, à la granularité ou à des marqueurs, dans les limites de l’appareil. Les populations doivent être définies par une stratégie de sélection explicite. Exclure débris, cellules mortes et doublets évite des interprétations trompeuses.
Une mesure du contenu en ADN distingue typiquement des populations 2C, intermédiaires et 4C. Elle ne sépare pas à elle seule G0 de G1 ni G2 de M. Plusieurs fluorochromes peuvent avoir des spectres qui se recouvrent : une compensation ou un démélange approprié est nécessaire. Les témoins de marquage servent à définir les frontières de positivité, surtout lorsque le signal est faible.
Un pourcentage dépend du dénominateur. Si les cellules négatives meurent préférentiellement, le pourcentage de cellules positives peut augmenter sans multiplication de ces dernières. Mesurer les effectifs absolus ou utiliser des références de comptage évite cette erreur. La distinction proportion/quantité totale est aussi importante que la qualité du marquage.
Quantité, vitesse et renouvellement
Un pulse-chase marque une cohorte moléculaire pendant une période courte puis suit son devenir. Il permet d’estimer transport, maturation ou dégradation. Une diminution de signal doit être interprétée en tenant compte de la dilution par division, du photoblanchiment et du renouvellement. Une demi-vie calculée à partir d’une décroissance exponentielle suppose que ce modèle décrit convenablement les données.
La FRAP mesure la récupération après photoblanchiment d’une région. Elle peut renseigner sur mobilité et échanges. La récupération ne prouve pas nécessairement une synthèse nouvelle ; la diffusion latérale ou l’arrivée de protéines déjà présentes peut suffire. Une mesure de fluorescence totale après traitement ne remplace pas une cinétique de récupération.
Pour un organite ou une vésicule, un grand nombre d’objets peut correspondre à une formation accrue ou à une disparition ralentie. Le flux est une quantité par unité de temps ; le stock est une quantité à un instant donné. Cette distinction est centrale pour l’endocytose, l’autophagie et le cycle cellulaire.
Perturber pour tester une cause
Un inhibiteur pharmacologique possède une efficacité et une spécificité qui dépendent de la concentration et de la durée. Une suppression génétique peut déclencher des compensations plus lentes. Une extinction partielle peut laisser assez de protéine pour maintenir la fonction. Des résultats différents entre méthodes ne signifient donc pas automatiquement que l’une est fausse.
La restauration, ou expérience de sauvetage, réintroduit une version fonctionnelle de la cible après sa perte. Si elle restaure le phénotype, l’argument causal se renforce. Une version catalytiquement inactive permet de tester si l’activité enzymatique est nécessaire. Il faut néanmoins vérifier que les constructions sont exprimées à des niveaux comparables et localisées correctement.
- Hypothèse précise
- Mesure adaptée
- Perturbation contrôlée
- Témoins et répétitions
- Interprétation limitée aux données
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : la démarche est itérative ; les résultats conduisent souvent à reformuler l’hypothèse et à concevoir d’autres expériences.
Exemple intégré : disparition d’un récepteur de surface
Après ajout d’un ligand, le marquage de surface d’un récepteur diminue de moitié. Trois explications au moins sont possibles : internalisation, dégradation ou masquage de l’épitope. Une mesure de protéine totale distingue partiellement les deux premières ; une imagerie intracellulaire révèle un éventuel déplacement ; un second anticorps dirigé contre un autre domaine teste le masquage. La mesure du retour à la surface examine ensuite le recyclage.
Si la protéine totale reste stable, apparaît dans des endosomes et revient après retrait du ligand, l’internalisation réversible est fortement soutenue. On ne peut pourtant pas conclure que toutes les molécules suivent ce trajet : une fraction peut être dégradée ou renouvelée. Les conclusions solides précisent population, temps et méthode au lieu d’annoncer un mécanisme absolu.
Pureté et rendement : deux résultats différents
Données. Un homogénat contient 100 mg de protéines et 100 unités d'activité d'une enzyme marqueur. Une fraction contient 10 mg et 40 unités.
Correction. L'activité spécifique initiale vaut 1 unité/mg ; celle de la fraction vaut 4 unités/mg. L'enrichissement est donc d'un facteur 4, tandis que le rendement est 40/100 = 40 %. La fraction est enrichie mais 60 % de l'activité initiale n'y est pas récupérée. Cela ne prouve pas une pureté absolue : plusieurs organites peuvent co-sédimenter, et l'activité dépend aussi de la conservation de l'enzyme. Des marqueurs d'autres compartiments testent la contamination. Décrire une fraction comme « mitochondriale » signifie ici enrichie en mitochondries selon les contrôles, et non composée exclusivement de mitochondries.
Lecture visuelle : FRAP : distinguer vitesse de récupération et fraction mobile
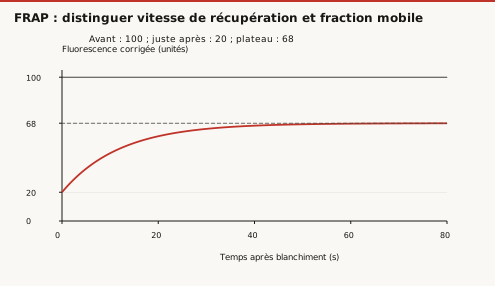
Question de lecture. Une récupération plus rapide prouve-t-elle une fraction mobile plus grande ?
Correction. Non : la constante de temps décrit la cinétique, le plateau décrit une amplitude de récupération. Les deux paramètres répondent à des questions différentes.
Exercices progressifs
Exercice 1. Une image est agrandie dix fois numériquement. La résolution biologique est-elle multipliée par dix ?
Exercice 2. Deux protéines apparaissent dans les mêmes pixels confocaux. Quelle conclusion est autorisée ?
Exercice 3. Une population passe de 20 % à 40 % de cellules positives, avec moitié moins de cellules totales. Que devient le nombre absolu de positives ?
Exercice 4. Une protéine résiste à une protéase sur des organites intacts mais est dégradée après ajout de détergent. Interpréter.
Exercice 5. Un inhibiteur réduit une réponse et une restauration par protéine fonctionnelle la rétablit. Quels contrôles renforcent encore la preuve ?
Corrections argumentées
Correction 1. Non. L’agrandissement ajoute des pixels d’affichage sans créer de détails séparés par le système optique. La résolution dépend de l’acquisition et de l’optique.
Correction 2. Elles occupent des régions non distinguables à cette résolution. Une interaction directe demande une méthode complémentaire, avec ses propres contrôles.
Correction 3. Il reste identique : 0,20 × N initial = 0,40 × 0,50N initial. Une hausse de proportion ne prouve donc pas une expansion.
Correction 4. Le domaine étudié est compatible avec une localisation protégée par une membrane. Il faut vérifier l’activité de la protéase, l’intégrité des organites et l’accessibilité du domaine après perméabilisation.
Correction 5. Une perturbation indépendante de la même cible, une version inactive correctement exprimée et localisée, ainsi que des contrôles de viabilité et de réponse non liée à la cible. La restauration doit être réalisée à un niveau évitant une surexpression artificiellement compensatrice.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Ce cours, en cartes de révision
Lire un cours ne suffit pas à le retenir. Dépose ce cours, ou le poly de ta fac, dans Ossik : il en sort des cartes sourcées à la page, qu’il te ressort au bon moment.