Ce cours réunit 4 parties : 1. Membranes : architecture, asymétrie et domaines ; 2. Transports membranaires et gradients électrochimiques ; 3. Noyau, chromatine et transport nucléocytoplasmique ; 4. Voie sécrétoire, endocytose et adressage des protéines.
Partie 1 · Membranes : architecture, asymétrie et domaines
Prérequis et objectifs
Prérequis : amphiphilie, liaisons non covalentes et structure des protéines.
À la fin de ce cours : relier composition et propriétés de la membrane ; distinguer asymétrie, mobilité et polarité ; interpréter une expérience de diffusion.
Une interface qui entretient des différences
Une membrane biologique est une bicouche lipidique associée à des protéines et à des glucides. Elle sépare deux milieux aqueux sans les isoler absolument. Sa fonction première n’est pas de rendre toute traversée impossible : elle impose des voies et des vitesses différentes selon les molécules. La cellule peut ainsi conserver une composition ionique et un potentiel électrique distincts de ceux du milieu extérieur, tout en échangeant nutriments, déchets et informations.
Les lipides amphiphiles présentent une région polaire et une région hydrophobe. Leur association en bicouche limite l’exposition des chaînes hydrocarbonées à l’eau. L’effet hydrophobe organise cet assemblage ; aucune colle covalente continue n’unit tous les lipides. Une bicouche peut donc se déformer, fusionner ou se refermer après une petite rupture. Cette plasticité est indispensable à la division et au trafic vésiculaire. Elle n’implique pas que des protéines puissent traverser spontanément son cœur hydrophobe.
Les phospholipides ne possèdent pas tous le même squelette. Les glycérophospholipides dérivent du glycérol, alors que la sphingomyéline contient une base sphingosine. Les glycolipides portent un ou plusieurs sucres. Le cholestérol insère sa partie rigide entre les chaînes lipidiques et son hydroxyle près des têtes polaires. Le rapport entre ces constituants varie selon la membrane étudiée. Une membrane plasmique, une membrane mitochondriale interne et une membrane de réticulum n’ont donc pas des propriétés interchangeables.
Fluidité : plusieurs mouvements, plusieurs déterminants
Un lipide diffuse latéralement au sein d’un feuillet et peut tourner sur lui-même. Le passage spontané d’un feuillet à l’autre, appelé flip-flop, est beaucoup plus défavorable pour une tête polaire. Des protéines catalysent ces redistributions. Les flippases et floppases peuvent entretenir une asymétrie au prix d’une dépense énergétique ; des scramblases facilitent une redistribution bidirectionnelle sans imposer le même ordre asymétrique. Les détails de leur activation dépendent du type cellulaire.
Des chaînes courtes ou insaturées limitent généralement l’empilement serré des lipides et favorisent la fluidité, toutes choses égales par ailleurs. Une double liaison cis introduit une déformation géométrique. Le cholestérol amortit les variations : il freine certains mouvements à température élevée et empêche un empaquetage excessif à basse température. La proposition « le cholestérol fluidifie toujours » est donc trop générale. Fluidité, perméabilité et résistance mécanique sont liées mais ne sont pas des synonymes.
La diffusion des protéines peut être limitée par leurs interactions avec le cortex d’actine, des partenaires extracellulaires ou des complexes de jonction. Des domaines membranaires peuvent être enrichis en certains lipides et protéines. Ils sont souvent petits, transitoires et dépendants du contexte expérimental. Le modèle de mosaïque fluide demeure utile à condition de ne pas dessiner une mer parfaitement homogène dans laquelle chaque élément circulerait sans obstacle.
Asymétrie et topologie
Les deux faces d’une membrane ont une identité. La phosphatidylsérine est normalement enrichie dans le feuillet cytosolique de la membrane plasmique. Son exposition externe peut participer à la reconnaissance des cellules apoptotiques. Une modification d’asymétrie devient ainsi un signal biologique. Dans la voie sécrétoire, les chaînes glucidiques exposées des glycoprotéines et glycolipides membranaires se trouvent sur la face non cytosolique : face extracellulaire à la surface, face luminale dans le réticulum ou le Golgi.
Cette règle résulte du lieu où les réactions de glycosylation interviennent et de la conservation de la topologie pendant les bourgeonnements et les fusions. Lorsqu’une vésicule fusionne avec la membrane plasmique, sa lumière devient continue avec le milieu extracellulaire. Le domaine qui faisait face au cytosol reste cytosolique. La protéine ne tourne pas autour de la bicouche comme une pièce retournée.
- Lumière du réticulum
- Lumière du Golgi
- Lumière vésiculaire
- Face extracellulaire
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il suit uniquement le domaine luminal d’une protéine engagée dans la voie sécrétoire. Il ne décrit ni toutes les destinations ni toutes les étapes de maturation.
Le glycocalyx est l’ensemble des chaînes glucidiques exposées en surface et des molécules qui leur sont associées. Il participe à l’hydratation, à la protection et aux interactions cellulaires. L’identité d’une cellule ne dépend toutefois pas d’un code glucidique unique : protéines, lipides, contexte tissulaire et signaux inflammatoires contribuent également aux interactions.
Protéines intégrales, périphériques et ancrées
Une protéine transmembranaire traverse la bicouche par un ou plusieurs segments hydrophobes. Elle constitue un sous-ensemble des protéines intégrales, dont certaines pénètrent profondément sans traverser entièrement la membrane. Une protéine périphérique est associée par des interactions non covalentes avec des lipides ou d’autres protéines. Une protéine ancrée à un lipide possède une liaison covalente à un groupement inséré dans la membrane. L’ancrage GPI place la protéine du côté non cytosolique ; certains ancrages acylés ou prénylés sont situés du côté cytosolique.
Le terme intégrine désigne une famille de récepteurs d’adhérence, pas toutes les protéines intégrales. Cette proximité de vocabulaire provoque une confusion fréquente. Une intégrine peut établir un lien entre matrice extracellulaire et cytosquelette par l’intermédiaire de protéines adaptatrices. Elle transmet simultanément des forces et des signaux.
| Catégorie | Relation avec la bicouche | Conséquence expérimentale typique |
|---|---|---|
| Transmembranaire | Un ou plusieurs segments traversants | Solubilisation nécessitant habituellement un détergent |
| Périphérique | Association non covalente en surface | Certaines interactions sont rompues par modification du pH ou de la force ionique |
| Ancrée à un lipide | Lipide lié à la protéine et inséré | Libération possible par clivage spécifique de l’ancrage |
Ces critères sont des principes, non une recette universelle : la stabilité du complexe et l’accessibilité du site de clivage modifient le résultat.
Polarité épithéliale et application expérimentale
Dans un épithélium, le domaine apical regarde une lumière ou le milieu extérieur ; le domaine basolatéral contacte les cellules voisines et la lame basale. Des jonctions serrées limitent les passages paracellulaires et contribuent à maintenir des domaines distincts. Le tri des protéines, leur recyclage et leur ancrage complètent cette barrière. Une cellule peut ainsi absorber un soluté sur une face et l’exporter sur l’autre.
Une expérience de FRAP suit le retour de fluorescence dans une région photoblanchie. La récupération peut révéler la mobilité latérale d’une population marquée. La fraction qui ne récupère pas pendant la fenêtre d’observation correspond à une fraction peu mobile dans ces conditions ; elle ne prouve pas une immobilité définitive. Un changement de récupération peut résulter d’un ancrage plus fort, d’une modification de diffusion ou du renouvellement par trafic. Le choix du temps, de la zone et du témoin est donc essentiel.
Pour raisonner, il faut toujours nommer la membrane, la face étudiée et l’échelle temporelle. « La protéine est externe » est insuffisant si l’on ne précise pas externe au cytosol, externe à une vésicule ou externe à la cellule. Une représentation en coupe correctement légendée élimine souvent l’erreur avant tout apprentissage supplémentaire.
Atelier FRAP : normaliser le plateau
Problème. Après correction du bruit de fond et du blanchiment dû à l'acquisition, une zone donne 100 unités avant photoblanchiment, 20 immédiatement après et 68 au plateau. Calculer la fraction mobile estimée.
Résolution. L'amplitude récupérable vaut 100 − 20 = 80. La récupération observée vaut 68 − 20 = 48. La fraction mobile estimée est donc 48/80 = 0,60, soit 60 %, et non 68 %. Le signal résiduel immédiatement après blanchiment n'est pas du signal ayant récupéré. Cette estimation suppose un réservoir non blanchi suffisamment grand, une acquisition stable et un plateau effectivement atteint.
Comparer deux protéines demande ensuite deux lectures indépendantes : hauteur du plateau pour la fraction mobile et vitesse de récupération pour la cinétique. Un plateau identique atteint plus lentement ne démontre pas une fraction mobile plus faible.
Lecture visuelle : Bicouche lipidique : cœur hydrophobe et voies distinctes
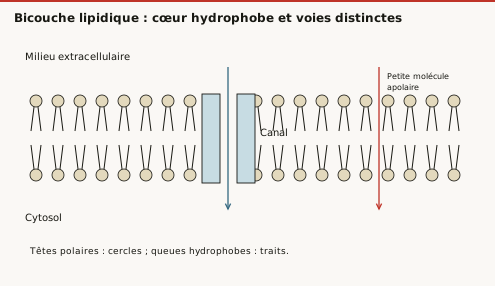
Question de lecture. Ouvrir un canal impose-t-il une entrée de l’ion dans la cellule ?
Correction. Non. Le signe de Vm − Eion et la charge déterminent le sens du flux et celui du courant. Un canal ouvert peut aussi ne porter aucun courant net au potentiel d’équilibre.
Exercices progressifs
Exercice 1. Classer une protéine à sept segments transmembranaires et une protéine fixée par ancrage GPI. Peuvent-elles avoir la même orientation ?
Exercice 2. Une glycoprotéine est marquée dans la lumière du Golgi. Où se retrouvera ce domaine après exocytose ?
Exercice 3. À composition identique, des chaînes lipidiques deviennent plus longues et plus saturées. Quel effet qualitatif prévoir sur leur empaquetage ?
Exercice 4. Une FRAP récupère jusqu’à 60 % du signal initial en deux minutes. Peut-on conclure que 40 % des protéines ne bougent jamais ?
Exercice 5. Une cellule épithéliale perd ses jonctions serrées mais conserve ses transporteurs. Pourquoi un flux vectoriel peut-il diminuer ?
Corrections argumentées
Correction 1. La première est une protéine transmembranaire multipasse ; la seconde est ancrée à un lipide. Le GPI expose la partie protéique du côté non cytosolique, tandis qu’une protéine multipasse présente des boucles de part et d’autre. On ne peut leur attribuer une orientation globale identique sans préciser le domaine comparé.
Correction 2. Sur la face extracellulaire, si cette protéine atteint effectivement la surface. Le lumen vésiculaire devient continu avec l’extérieur ; le domaine ne traverse pas la bicouche lors de la fusion.
Correction 3. Un empaquetage plus serré est généralement favorisé et la fluidité tend à diminuer à température donnée. Cette prédiction suppose que les autres facteurs, notamment le cholestérol, restent constants.
Correction 4. Non. Il s’agit d’une fraction non récupérée dans cette fenêtre et avec ce protocole. Un ancrage transitoire, un renouvellement lent ou un photoblanchiment supplémentaire peuvent intervenir. Une cinétique plus longue et des témoins sont nécessaires.
Correction 5. Une fuite paracellulaire peut court-circuiter le gradient et la séparation apical/basolatéral peut se dégrader. Conserver des transporteurs ne suffit donc pas si leur distribution et l’étanchéité fonctionnelle sont perdues.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 2 · Transports membranaires et gradients électrochimiques
Prérequis et objectifs
Prérequis : concentrations, énergie libre, charges électriques et membrane lipidique.
À la fin de ce cours : déterminer le sens d’un transport ; identifier sa source d’énergie ; séparer osmolarité et tonicité.
Le gradient électrochimique constitue le critère énergétique
Une molécule non chargée tend à se déplacer d’une activité élevée vers une activité faible. Dans les solutions suffisamment diluées, les concentrations servent d’approximation des activités. Pour un ion, il faut ajouter la force électrique. Un cation est attiré par un compartiment électriquement négatif ; un anion subit l’effet inverse. Ces deux composantes peuvent s’additionner ou s’opposer. Comparer uniquement les concentrations ne suffit jamais à prédire systématiquement le sens d’un flux ionique.
Pour un transfert de l’extérieur vers l’intérieur, une écriture utile est : variation d’énergie libre = RT ln(Cint/Cext) + zF(Vint − Vext). R est la constante des gaz, T la température absolue, z la valence et F la constante de Faraday. Un résultat négatif rend ce transfert favorable. L’équilibre électrochimique correspond à zéro, même si les concentrations demeurent différentes. Le potentiel de Nernst exprime cette condition pour un ion et une membrane qui lui serait sélectivement perméable.
Le flux dépend à la fois de la force motrice et de la perméabilité. Une différence d’énergie peut exister sans mouvement important si la membrane est imperméable. À l’inverse, ouvrir de nombreux canaux rapproche rapidement le potentiel de membrane du potentiel d’équilibre de l’ion concerné. Un gradient est donc une réserve énergétique ; une protéine de transport constitue une voie d’utilisation de cette réserve.
Trois modes passifs
La diffusion simple concerne surtout de petites molécules capables de se dissoudre dans le cœur lipidique, comme les gaz respiratoires. Sa vitesse dépend de la surface, de l’épaisseur, de la diffusibilité et de la différence de concentration. Elle ne nécessite pas que la molécule se fixe successivement à des sites protéiques.
Un canal forme un pore aqueux sélectif. Sa conductance et sa probabilité d’ouverture déterminent le courant obtenu pour une force motrice donnée. L’ouverture peut dépendre du voltage, d’un ligand, d’une contrainte mécanique ou d’une phosphorylation. Le fait que l’ouverture soit contrôlée par une réaction consommant de l’ATP ne transforme pas automatiquement le passage des ions en transport actif. Il faut examiner le sens du transfert par rapport au gradient.
Un transporteur à accès alternant expose successivement son site de fixation à chaque côté. Les transporteurs de type GLUT permettent une diffusion facilitée du glucose. Ils sont saturables : lorsque les sites sont occupés et que leur cycle fonctionne à sa vitesse maximale, augmenter davantage le substrat n’augmente plus proportionnellement le flux. Saturation et spécificité n’impliquent pas une consommation directe d’ATP.
| Mécanisme | Trajet du soluté | Source d’énergie du transfert |
|---|---|---|
| Diffusion simple | Bicouche | Gradient du soluté |
| Canal | Pore protéique | Gradient électrochimique |
| Uniport facilité | Sites à accès alternant | Gradient du soluté |
| Pompe primaire | Cycle protéique couplé | ATP ou autre énergie directement couplée |
| Cotransport secondaire | Cycle couplant plusieurs solutés | Gradient favorable d’un autre soluté |
Transport actif primaire et secondaire
La Na⁺/K⁺-ATPase expulse trois ions sodium et importe deux ions potassium par ATP hydrolysé. Ce bilan transporte une charge positive nette vers l’extérieur : la pompe est électrogène. Son action maintient surtout les gradients nécessaires à l’excitabilité et aux transports secondaires. Le potentiel de repos ne résulte pas simplement de trois ions sortant contre deux entrant ; les perméabilités ioniques, en particulier potassiques, sont déterminantes.
Dans un symport, plusieurs solutés sont transportés dans le même sens ; dans un antiport, ils évoluent en sens opposés. Ces mots décrivent la géométrie, pas la source énergétique. Un symport sodium-glucose peut faire entrer le glucose contre son gradient grâce à une entrée favorable de sodium. La somme des variations d’énergie doit être favorable. Si le gradient sodique s’effondre, le transport de glucose perd sa source d’énergie, même si son transporteur reste intact.
L’échangeur sodium-calcium illustre un antiport secondairement actif. Son sens dépend des concentrations, du potentiel et de sa stœchiométrie. La phrase « un échangeur expulse toujours le calcium » est donc trop absolue. Certaines conditions permettent une inversion. Dans tout exercice, on conserve l’énergie sur un cycle complet, au lieu de déclarer actif ou passif en regardant un seul soluté.
Le transport vectoriel d’un épithélium
Un entérocyte peut coupler une entrée apicale du glucose au sodium, puis libérer le glucose par un transporteur basolatéral de diffusion facilitée. La pompe sodium-potassium basolatérale entretient le faible sodium intracellulaire. Les jonctions contrôlent le passage entre les cellules. Le transport net dépend donc d’une organisation collective : position des transporteurs, gradients, approvisionnement énergétique et perméabilité paracellulaire.
- Gradient Na⁺ entretenu
- Entrée apicale couplée
- Glucose cytosolique
- Sortie basolatérale
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : les processus se déroulent en parallèle à l’état stationnaire. Les flèches ne représentent pas une succession de cycles strictement séparés, ni toutes les voies d’absorption.
L’inhibition de la pompe ne supprime pas instantanément tous les flux : les gradients déjà établis persistent un temps. En revanche, le maintien prolongé du transport secondaire devient impossible si aucune autre source ne restaure ces gradients. Une expérience doit donc comparer des cinétiques et ne pas interpréter un effet retardé comme une absence de couplage.
Osmose, osmolarité et tonicité
L’osmose est le déplacement net d’eau lié à une différence de potentiel chimique de l’eau. Une membrane perméable à l’eau mais peu perméable à certains solutés permet une redistribution des volumes. Les aquaporines augmentent la perméabilité à l’eau sans pomper celle-ci contre son gradient. Une pression hydrostatique opposée peut équilibrer la force osmotique.
L’osmolarité compte les osmoles par litre de solution ; l’osmolalité les rapporte au kilogramme de solvant. Une mole de glucose produit approximativement une osmole, tandis qu’une mole de NaCl produit environ deux osmoles dans le modèle idéal de dissociation complète. Les solutions réelles présentent des écarts à l’idéalité.
La tonicité prédit l’effet durable d’une solution sur le volume d’une cellule et dépend des solutés effectivement non pénétrants à l’échelle de temps considérée. Une solution iso-osmolaire d’un soluté très pénétrant peut provoquer une entrée d’eau après diffusion du soluté. L’égalité d’osmolarité initiale ne garantit donc pas l’isotonie. Il faut toujours préciser quelle cellule, quelle membrane et quelle durée sont étudiées.
Une cellule plongée dans un milieu contenant 300 mOsm/L de solutés non pénétrants reste approximativement stable si son osmolarité efficace interne est identique. Avec 150 mOsm/L à l’extérieur, le modèle idéal prédit un doublement du volume aqueux osmotiquement actif à équilibre, à quantité interne de solutés constante. Les limites mécaniques, le volume non osmotique et les régulations cellulaires rendent le résultat réel moins simple ; une cellule fragile peut se rompre avant cet équilibre.
Application : un gradient chimique ne suffit pas
Problème. Pour K⁺, on donne un potentiel d'équilibre E_K = −90 mV et un potentiel membranaire V_m = −60 mV, défini intérieur moins extérieur. Dans quel sens circule le courant par un canal potassique ouvert ?
Correction. Dans le modèle ohmique, I_K = g_K(V_m − E_K). La différence vaut +30 mV : le courant conventionnel est sortant, donc K⁺ sort. L'intérieur négatif attire pourtant K⁺ ; cette force électrique ne compense pas encore la force chimique qui favorise la sortie. À −90 mV, le courant net devient nul sans que les concentrations soient égales. À −110 mV, le courant devient entrant. Ouvrir le canal augmente la conductance ; cela ne fixe pas à lui seul le sens du flux. Pour un anion, le sens de déplacement des ions et celui du courant conventionnel sont opposés.
Lecture visuelle : Transport : saturation d’un nombre fini de transporteurs
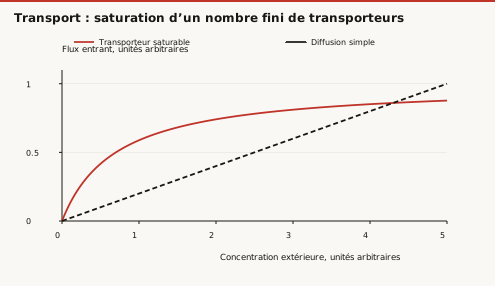
Question de lecture. Une saturation prouve-t-elle que le transport consomme directement de l’ATP ?
Correction. Non. Un nombre fini de transporteurs peut saturer dans un transport passif. La dépense énergétique se déduit du mécanisme et des gradients, pas de la seule courbe.
Exercices progressifs
Exercice 1. Une concentration de Na⁺ est plus forte dehors et l’intérieur est négatif. Les deux composantes favorisent-elles la même direction ?
Exercice 2. Un canal exige une phosphorylation pour s’ouvrir. Le passage du potassium est-il nécessairement actif ?
Exercice 3. Une pompe transporte 3 Na⁺ dehors et 2 K⁺ dedans. Calculer son bilan de charges.
Exercice 4. Une cellule modèle contient une quantité fixe de solutés non pénétrants. L’osmolarité externe passe de 300 à 200 mOsm/L. Quel rapport de volumes prévoir ?
Exercice 5. Un inhibiteur de pompe réduit l’absorption de glucose après plusieurs minutes seulement. Donner une chaîne causale et un témoin utile.
Corrections argumentées
Correction 1. Oui, ici elles favorisent toutes deux l’entrée du cation sodium. Cette conclusion utilise les deux informations et ne s’étend pas automatiquement aux autres ions.
Correction 2. Non. La phosphorylation règle l’état du canal. Si le potassium traverse selon son gradient électrochimique, son transport reste passif.
Correction 3. Trois charges positives sortent et deux entrent : une charge positive nette est exportée par cycle, soit un effet électrogène hyperpolarisant direct.
Correction 4. Le produit osmolarité efficace × volume reste constant dans ce modèle. Vfinal/Vinitial = 300/200 = 1,5. Il s’agit du volume aqueux osmotiquement actif, sans régulation ni rupture.
Correction 5. La pompe cesse d’entretenir le gradient sodique ; celui-ci se dissipe progressivement ; le symport dispose de moins d’énergie. Il faut vérifier viabilité et gradient de sodium, et comparer à un transport de glucose indépendant du sodium pour distinguer un effet spécifique d’une défaillance cellulaire globale.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 3 · Noyau, chromatine et transport nucléocytoplasmique
Prérequis et objectifs
Prérequis : ADN, ARN, protéines et compartimentation membranaire.
À la fin de ce cours : décrire les domaines nucléaires ; expliquer import et export ; interpréter localisation et condensation sans conclusions abusives.
Enveloppe nucléaire et continuité avec le réticulum
Le noyau interphasique sépare la majorité du génome du cytosol par une enveloppe à deux membranes. La membrane externe est continue avec le réticulum endoplasmique et peut porter des ribosomes sur sa face cytosolique. L’espace périnucléaire est continu avec la lumière du réticulum. La membrane interne contient des protéines associées à la lamina et à la chromatine. Dire que le noyau possède une « double membrane » signifie deux bicouches distinctes, et non les deux feuillets d’une seule bicouche.
Les pores nucléaires établissent des ouvertures où les deux membranes se rejoignent. Leur complexe protéique est constitué de nucléoporines organisées autour d’un canal. Il permet une diffusion relativement facile de petites molécules et un transport sélectif de nombreux cargos plus grands. La sélectivité n’est pas un simple tamis à seuil absolu : forme, interactions et transporteurs influencent la traversée.
La lamina est un réseau de protéines de la famille des filaments intermédiaires, les lamines, appliqué contre la face interne de l’enveloppe. Elle contribue à la mécanique nucléaire, à l’organisation de la chromatine et à la réorganisation du noyau lors de la division. Les liens entre noyau et cytosquelette permettent aussi la transmission de forces. Le noyau est donc un compartiment mécaniquement intégré à la cellule, pas une poche indépendante suspendue dans le cytoplasme.
Import des protéines : adresse et direction
Une protéine nucléaire codée par le génome nucléaire est généralement traduite sur un ribosome cytosolique avant son import. Un signal de localisation nucléaire, souvent riche en résidus basiques, est reconnu directement ou indirectement par une importine. Le complexe interagit avec les nucléoporines et traverse le pore. Contrairement à l’import de nombreuses protéines mitochondriales, le passage nucléaire peut concerner des protéines repliées ou des complexes assemblés.
La petite GTPase Ran participe à la direction du transport. La distribution de ses régulateurs maintient une proportion élevée de Ran-GTP dans le noyau et de Ran-GDP dans le cytosol. Dans le modèle classique, la fixation de Ran-GTP à l’importine favorise la libération du cargo dans le noyau. Le recyclage de l’importine et l’hydrolyse du GTP achèvent le cycle. Le gradient de Ran constitue un système de direction ; il ne faut pas imaginer chaque pore comme un moteur tirant physiquement chaque protéine avec un ATP.
Un signal de localisation peut être masqué par un partenaire ou rendu accessible par phosphorylation. Une protéine dont la quantité totale reste constante peut ainsi changer de localisation. La régulation de la transcription dépend parfois davantage de cette redistribution que d’une synthèse nouvelle. Inversement, une mutation d’un signal d’import peut laisser une protéine fonctionnelle dans le cytosol mais absente de son site d’action nucléaire.
Export : mêmes pores, autres règles de reconnaissance
Certains exports protéiques utilisent une exportine reconnaissant un signal d’export nucléaire. La formation du complexe cargo-exportine est favorisée dans le noyau par Ran-GTP ; sa dissociation cytosolique accompagne l’hydrolyse du GTP. L’effet de Ran-GTP sur un complexe d’export est donc différent de son effet sur un complexe d’import.
L’export des ARN n’est pas une copie universelle de ce mécanisme. Les ARN messagers matures sont associés à des protéines et utilisent notamment une machinerie d’export spécifique. La maturation et le contrôle qualité conditionnent leur transport. Une rétention nucléaire d’ARN peut résulter d’un défaut d’épissage, d’assemblage du complexe ribonucléoprotéique ou de transport. Une observation de localisation seule ne permet pas de distinguer ces mécanismes.
- Signal accessible
- Liaison à l’importine
- Passage du pore
- Libération avec Ran-GTP
- Recyclage du transporteur
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il résume une voie d’import protéique. Il ne décrit pas toutes les importines, ni l’export des ARN messagers.
Chromatine : organisation et accessibilité
La chromatine associe ADN, histones et nombreuses protéines régulatrices. Le nucléosome comporte un segment d’ADN enroulé autour d’un octamère d’histones. Des séquences de liaison relient les nucléosomes. Cette organisation compacte l’ADN et règle son accessibilité, mais elle reste dynamique : remodelage, modifications d’histones et protéines de liaison modifient les interactions locales.
L’euchromatine apparaît généralement moins condensée et est compatible avec une plus grande accessibilité. L’hétérochromatine est plus compacte. L’hétérochromatine constitutive concerne notamment des régions répétitives durablement condensées ; l’hétérochromatine facultative varie selon le développement ou l’état cellulaire. Il serait incorrect de traduire toute zone claire par « tous les gènes sont actifs » et toute zone sombre par « aucun ARN n’est jamais produit ».
Les chromosomes occupent des territoires dans le noyau interphasique. Des contacts entre régions éloignées participent à la régulation, sans que les gènes soient répartis au hasard comme une solution homogène. Une modification de position n’est toutefois pas automatiquement la cause d’un changement transcriptionnel : elle peut être conséquence, cause ou phénomène associé. Les expériences temporelles et les perturbations ciblées aident à départager ces possibilités.
Pendant la phase S, l’ADN est répliqué. Chaque chromosome possède ensuite deux chromatides sœurs jusqu’à leur séparation. La chromatine n’apparaît pas soudainement en mitose : elle existe tout au long du cycle, avec un degré de condensation différent. Le chromosome est une unité de matériel génétique ; la chromatine en constitue le matériau.
Le nucléole et les autres domaines sans membrane
Le nucléole est un compartiment sans membrane impliqué dans la synthèse et la maturation de plusieurs ARN ribosomiques ainsi que dans l’assemblage initial des sous-unités ribosomiques. Les protéines ribosomiques sont synthétisées dans le cytosol puis importées. Les sous-unités immatures subissent des étapes de contrôle et d’export. Le nucléole ne réalise donc pas à lui seul toutes les étapes de production d’un ribosome mature.
Sa taille et son aspect varient avec l’activité et le type cellulaire. Un nucléole volumineux suggère souvent une activité de biogenèse ribosomique importante, sans constituer à lui seul une preuve de prolifération anormale. D’autres domaines nucléaires concentrent des facteurs de maturation ou de régulation des ARN. L’absence de membrane n’empêche pas une organisation fonctionnelle, car des interactions moléculaires sélectives produisent des enrichissements locaux.
| Structure | Limite membranaire | Fonction centrale | Erreur à éviter |
|---|---|---|---|
| Noyau | Enveloppe à deux membranes | Organisation du génome et expression | Confondre enveloppe et bicouche unique |
| Nucléole | Aucune | Biogenèse ribosomique | Affirmer que toutes les protéines y sont traduites |
| Pore nucléaire | Complexe dans l’enveloppe | Échanges sélectifs | Assimiler sélectivité à taille seule |
| Lamina | Réseau protéique interne | Soutien et organisation | La confondre avec une membrane supplémentaire |
Raisonnement expérimental
Pour tester une séquence candidate comme signal de localisation, on peut comparer une protéine fluorescente seule, la même protéine fusionnée au signal et une version mutée. La fluorescence doit être mesurée dans noyau et cytosol à quantité totale comparable. Un petit fluorophore protéique peut diffuser spontanément : un simple enrichissement est alors plus informatif qu’une présence nucléaire quelconque. Une construction volumineuse rend parfois le test plus discriminant.
Une perte d’accumulation nucléaire après mutation soutient un rôle nécessaire de la séquence dans le contexte étudié. Son ajout à un cargo normalement cytosolique teste sa suffisance. Ces deux propriétés ne sont pas identiques. Le mutant peut aussi se replier différemment ou être dégradé : vérifier intégrité et abondance évite d’attribuer à l’adressage un défaut général de protéine.
Concevoir un témoin pour un signal nucléaire
Situation. Un petit rapporteur fluorescent reste présent dans le noyau après suppression du signal de localisation nucléaire. Cela prouve-t-il que le signal est inutile ?
Correction. Non : une petite protéine peut franchir les pores par diffusion et ne constitue pas un bon test isolé du transport actif. On compare un rapporteur de taille limitant cette diffusion, avec signal intact puis muté, en vérifiant expression et repliement. On mesure le rapport de concentration noyau/cytosol, pas seulement la présence d'un point fluorescent. Une accumulation nucléaire peut aussi résulter d'une rétention par liaison à la chromatine ou d'une exportation réduite. Pour attribuer l'effet à l'import, il faut suivre sa cinétique et tester la machinerie concernée. L'accès au noyau, l'accumulation à l'équilibre et la vitesse d'import sont trois observables différentes.
Exercices progressifs
Exercice 1. L’espace périnucléaire communique-t-il topologiquement avec le cytosol ou avec la lumière du réticulum ?
Exercice 2. Une protéine nucléaire doit-elle être traduite dans le noyau ?
Exercice 3. Comparer l’effet de Ran-GTP sur un complexe classique d’import et sur un complexe d’export.
Exercice 4. Une zone nucléaire est peu colorée et un nucléole est volumineux. Quelles conclusions restent raisonnables ?
Exercice 5. Une séquence fusionnée à un rapporteur induit son accumulation nucléaire ; sa suppression de la protéine native ne change rien. Interpréter.
Corrections argumentées
Correction 1. Avec la lumière du réticulum, puisque la membrane externe est continue avec celui-ci. Le cytosol est séparé de cet espace par la membrane externe.
Correction 2. Non. La traduction de ces protéines est généralement cytosolique, puis un mécanisme d’import les introduit dans le noyau. Les ribosomes du réticulum traduisent également du côté cytosolique.
Correction 3. Pour l’import classique, Ran-GTP favorise la dissociation du cargo de l’importine dans le noyau. Pour l’export classique, il favorise l’assemblage du complexe nucléaire. La localisation de ses régulateurs crée la direction globale.
Correction 4. La zone claire est compatible avec une chromatine moins condensée et le nucléole avec une biogenèse ribosomique importante. On ne peut quantifier chaque transcription, conclure à un cancer ou déduire la vitesse de division sur ces seuls critères.
Correction 5. La séquence peut être suffisante dans le rapporteur sans être nécessaire dans la protéine native : un second signal ou un partenaire importé peut compenser. Il faut aussi vérifier que la suppression n’a pas laissé une autre région équivalente accessible.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 4 · Voie sécrétoire, endocytose et adressage des protéines
Prérequis et objectifs
Prérequis : traduction, topologie membranaire et structure des protéines.
À la fin de ce cours : suivre un cargo sans inverser sa topologie ; distinguer manteau, ciblage et fusion ; expliquer le tri endosomal.
La destination est inscrite dans des signaux reconnus
Les protéines commencent généralement leur traduction dans le cytosol. Pour une protéine engagée dans la voie sécrétoire, un signal hydrophobe porté par la chaîne naissante est reconnu par la particule de reconnaissance du signal, ou SRP. Le complexe est dirigé vers un récepteur du réticulum endoplasmique et un translocon. La traduction se poursuit avec transfert de la chaîne dans la lumière ou insertion de segments dans la membrane. Les ribosomes libres et liés ne sont pas deux populations génétiquement différentes : leur association au réticulum dépend du cargo.
Une séquence signal clivable peut être retirée par une peptidase. D’autres segments servent de signaux d’ancrage et restent dans la protéine. L’ordre des séquences hydrophobes et leur contexte déterminent la topologie d’une protéine multipasse. On doit donc distinguer « entrer dans la voie sécrétoire » de « être intégralement libéré dans la lumière ». Une enzyme destinée à la sécrétion et un récepteur transmembranaire peuvent emprunter le même compartiment avec des organisations finales différentes.
Les protéines destinées au noyau, aux peroxysomes ou aux mitochondries utilisent d’autres signaux et d’autres machineries. Une protéine cytosolique ne passe pas obligatoirement par le Golgi avant d’exercer son rôle. Le Golgi traite des cargos d’une voie particulière ; il ne constitue pas un poste de contrôle universel de toutes les protéines cellulaires.
Maturation et contrôle qualité dans le réticulum
La lumière du réticulum favorise le repliement de nombreuses protéines sécrétées et la formation de ponts disulfure. Des chaperonnes limitent les interactions inappropriées et aident la protéine à atteindre une conformation compatible avec son export. L’information structurale vient de la séquence et de l’environnement ; la chaperonne ne remplace pas une séquence incorrecte par une séquence correcte.
La N-glycosylation débute par le transfert d’un oligosaccharide sur certaines asparagines dans un contexte de séquence approprié. Toutes les séquences candidates ne sont pas nécessairement utilisées : accessibilité et conformation interviennent. Les chaînes glucidiques sont ensuite remaniées dans le réticulum puis le Golgi. La glycosylation est donc un processus progressif, différent d’une simple décoration finale ajoutée lors de l’exocytose.
Une protéine mal repliée peut être retenue, tenter un nouveau cycle de repliement ou être orientée vers une dégradation associée au réticulum. Dans cette dernière voie, certains cargos sont rétrotransloqués vers le cytosol, ubiquitinés et dégradés par le protéasome. Lorsque la charge dépasse les capacités, la réponse aux protéines mal repliées ajuste notamment traduction et capacités de repliement. Si le stress persiste, des voies de mort peuvent être engagées. Une accumulation dans le réticulum peut donc signaler un défaut d’export plutôt qu’une forte production efficace.
Vésicules : sélectionner, courber, cibler et fusionner
Un manteau participe à la sélection des cargos et à la déformation de la membrane. COPII intervient principalement dans l’export du réticulum ; COPI participe au trafic rétrograde et à des échanges golgiens ; la clathrine intervient dans certaines endocytoses et dans le tri au réseau transgolgien. Ces associations sont utiles mais ne résument pas toute la variété des transporteurs intracellulaires.
Le manteau est habituellement désassemblé avant la fusion. Des Rab, leurs effecteurs et des facteurs d’attachement contribuent à identifier la destination. Les SNARE participent au rapprochement des membranes et à leur fusion. Attribuer au manteau seul toute la spécificité revient à confondre fabrication du véhicule et reconnaissance de l’adresse.
Le trafic comporte des retours. Des protéines résidentes du réticulum peuvent s’échapper puis être récupérées grâce à des signaux reconnus dans des compartiments suivants. Le motif KDEL de plusieurs protéines luminales illustre cette récupération. La résidence ne correspond donc pas toujours à une immobilité absolue : un état stationnaire peut résulter d’entrées et de retours continus.
- Sélection du cargo
- Bourgeonnement
- Transport et ciblage
- Amarrage
- Fusion
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il distingue des fonctions qui se chevauchent dans le temps et ne montre ni recyclage ni maturation des compartiments.
Golgi et réseau transgolgien
L’appareil de Golgi comporte des régions cis, médianes et trans. Des enzymes différentes remanient les cargos au cours de leur progression. Les citernes sont dynamiques ; le modèle de maturation cisternale et les transports vésiculaires rétrogrades expliquent une partie importante de cette organisation. Une image fixe ne permet pas de conclure que chaque citerne est un compartiment définitivement immobile traversé par les mêmes petites vésicules.
Au réseau transgolgien, les destinations divergent : surface cellulaire, granules de sécrétion régulée, compartiments endosomaux et lysosomaux. De nombreuses hydrolases lysosomales solubles reçoivent une marque mannose-6-phosphate reconnue par des récepteurs de tri. L’acidification endosomale permet leur dissociation ; les récepteurs sont recyclés. Toutes les protéines lysosomales ne suivent toutefois pas une unique règle : les protéines membranaires lysosomales possèdent notamment d’autres signaux de ciblage.
La sécrétion constitutive renouvelle en permanence membrane et milieu extracellulaire. La sécrétion régulée implique stockage puis fusion déclenchée par un signal, souvent calcique. Dans une cellule endocrine, le contenu du granule peut être maturé avant sa libération. Une augmentation rapide de sécrétion ne démontre donc pas forcément une augmentation immédiate de transcription.
Endocytose et carrefours endosomaux
L’endocytose internalise membrane et matériel extracellulaire. Elle peut concentrer des ligands via des récepteurs ou capter du liquide. L’endosome précoce est un compartiment de tri : certains récepteurs retournent rapidement à la surface, d’autres empruntent des voies de recyclage plus lentes, et certains cargos progressent vers la dégradation. Le devenir du ligand et celui de son récepteur peuvent diverger.
L’acidification repose sur une V-ATPase qui consomme de l’ATP pour accumuler des protons. Elle modifie les interactions ligand-récepteur et favorise l’action d’enzymes adaptées aux compartiments tardifs. Le lysosome contient des hydrolases qui dégradent protéines, lipides, sucres et acides nucléiques. Les produits sont ensuite exportés vers le cytosol pour être réutilisés. Une dégradation efficace nécessite donc aussi des transporteurs de sortie.
La phagocytose concerne de grandes particules et implique un remodelage d’actine. Le phagosome fusionne progressivement avec des compartiments endolysosomaux. La macroautophagie entoure du matériel cytoplasmique d’une double membrane formant un autophagosome ; la fusion lysosomale permet la dégradation. Le contenu phagocyté vient principalement de l’extérieur, le contenu autophagique du dedans : les deux voies convergent sans être identiques.
| Cargo observé | Explication plausible | Vérification nécessaire |
|---|---|---|
| Récepteur accumulé à la surface | Endocytose réduite | Mesurer vitesse d’internalisation et synthèse |
| Hydrolase sécrétée au lieu d’être lysosomale | Défaut de marquage ou de tri | Examiner marque, récepteur et activité enzymatique |
| Autophagosomes nombreux | Formation accrue ou élimination bloquée | Mesurer le flux, pas seulement le nombre |
| Protéine retenue dans le réticulum | Repliement ou export défectueux | Contrôler maturation et sensibilité à la dégradation |
Suivre une population de protéines
Un pulse-chase marque brièvement les protéines nouvellement synthétisées, puis suit leur devenir pendant une période sans nouveau marquage. L’apparition séquentielle du signal dans réticulum, Golgi et granules soutient un parcours. La décroissance dans un compartiment peut résulter d’un export ou d’une dégradation ; mesurer aussi le milieu et les fragments évite de confondre ces possibilités.
Un inhibiteur de fusion peut augmenter le nombre de vésicules. Cela ne prouve pas que leur production augmente : une sortie bloquée suffit à faire grossir un stock. Cette distinction entre quantité instantanée et flux s’applique à tout le trafic membranaire et constitue un raisonnement central en biologie cellulaire.
Lire un pulse-chase sans confondre stock et flux
Données construites. Après un marquage bref, 80 % du cargo marqué est dans le réticulum à 0 minute. À 20 minutes, 50 % se trouve au Golgi ; à 60 minutes, 65 % est dans le milieu extracellulaire. Dans une condition test, 75 % reste dans le réticulum à 60 minutes.
Interprétation. Le témoin est compatible avec une progression dans la voie sécrétoire. La condition test localise une rétention précoce, mais ne distingue pas défaut de repliement, signal d'export absent et défaut de formation des transporteurs. Comparer un autre cargo sécrété aide à séparer défaut propre à la protéine et panne générale. La quantité totale marquée doit être suivie : une disparition intracellulaire sans apparition externe peut traduire une dégradation. Un suivi prolongé distingue un simple ralentissement d'un blocage persistant.
Exercices progressifs
Exercice 1. Un ribosome lié au réticulum est-il une espèce différente d’un ribosome libre ?
Exercice 2. Pourquoi une protéine à domaine luminal ne devient-elle pas cytosolique lors de l’exocytose ?
Exercice 3. Distinguer le rôle de COPII, de Rab et de SNARE.
Exercice 4. Une cellule contient deux fois plus d’autophagosomes après traitement. Peut-on conclure que l’autophagie est plus efficace ?
Exercice 5. Une hydrolase active est retrouvée dans le milieu, mais manque au lysosome. Proposer un mécanisme et deux vérifications.
Corrections argumentées
Correction 1. Non. L’adressage de la chaîne naissante et l’interaction avec le réticulum recrutent les ribosomes. La même machinerie ribosomique peut participer à différentes traductions successives.
Correction 2. La fusion conserve l’orientation des feuillets. La lumière de la vésicule devient continue avec l’extérieur, alors que la face cytosolique reste au contact du cytosol.
Correction 3. COPII contribue à sélectionner et former des transporteurs au départ du réticulum ; Rab et ses partenaires contribuent au ciblage ; les SNARE participent à la fusion. Ces fonctions se coordonnent mais ne sont pas interchangeables.
Correction 4. Non. Leur formation peut augmenter ou leur élimination ralentir. Il faut mesurer un flux, par exemple en comparant le devenir des cargos avec et sans blocage lysosomal adapté.
Correction 5. Un défaut de marquage mannose-6-phosphate ou de reconnaissance par son récepteur peut envoyer l’enzyme vers la sécrétion. On vérifie le marquage du cargo et le fonctionnement du récepteur ; l’activité intacte montre que l’anomalie n’est pas forcément un défaut catalytique.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Ce cours, en cartes de révision
Ce cours est déjà transformé en 270 cartes, chacune sourcée à sa page. Tu l’ajoutes gratuitement à tes cours depuis la bibliothèque de l’app, et Ossik te ressort ses cartes au bon moment.