Ce cours réunit 4 parties : 1. Énergie, flux et compartiments métaboliques ; 2. Glycolyse et devenir du pyruvate ; 3. Cycle de Krebs et phosphorylation oxydative ; 4. Glycogène, néoglucogenèse et voie des pentoses.
Partie 1 · Énergie, flux et compartiments métaboliques
Prérequis et objectifs
Connaître Gibbs, enzymes et coenzymes. Le cours propose une méthode de lecture des voies métaboliques : suivre séparément carbone, électrons, énergie et compartiments. Apprendre uniquement une liste de noms ne permet pas de prévoir l’effet d’un changement physiologique.
1. Catabolisme et anabolisme
Le catabolisme transforme des molécules en composés plus simples et permet souvent de récupérer de l’énergie et des équivalents réducteurs. L’anabolisme construit des molécules et consomme généralement énergie et pouvoir réducteur.
Ces deux ensembles ne sont pas simplement des chemins inverses. Des réactions fortement orientées dans un sens doivent être contournées par d’autres enzymes. Cette organisation évite qu’une même chaîne enzymatique doive fonctionner indifféremment sous des contraintes incompatibles.
Une voie peut être amphibolique : elle participe à la production d’énergie et fournit des précurseurs de biosynthèse. Le cycle de Krebs en est un exemple, car ses intermédiaires peuvent quitter le cycle pour d’autres fonctions.
2. Concentration et flux
La concentration est un stock par unité de volume. Le flux est une quantité traversant une étape par unité de temps. Une concentration constante n’implique pas un flux nul : si entrées et sorties s’équilibrent, le stock reste stable tout en étant continuellement renouvelé.
Un état stationnaire est donc différent d’un équilibre thermodynamique. À l’équilibre, aucun flux net ne persiste pour la réaction considérée. À l’état stationnaire d’une cellule ouverte, des flux sont maintenus par les apports, les consommations et les échanges.
Si un intermédiaire augmente, plusieurs explications sont possibles : production accélérée, consommation ralentie, transport modifié ou changement de volume. Une mesure ponctuelle de concentration ne permet pas de désigner automatiquement l’enzyme responsable.
3. ATP : une monnaie renouvelée
L’ATP couple des réactions grâce à des mécanismes de transfert de groupes ou de changement conformationnel. Le bilan ATP → ADP + Pi diffère de ATP → AMP + PPi. Dans ce second cas, l’hydrolyse du pyrophosphate peut rendre le bilan global fortement orienté.
Lorsqu’on compare des coûts énergétiques, ATP → AMP est souvent compté comme deux liaisons phosphoanhydride équivalentes, car régénérer ATP à partir d’AMP nécessite deux étapes de phosphorylation. Il faut annoncer cette convention plutôt que dire vaguement « un ATP consommé ».
La charge énergétique peut être décrite par ([ATP] + 0,5[ADP])/([ATP] + [ADP] + [AMP]). Cet indicateur varie entre zéro et un dans ce modèle. Il ne remplace pas la mesure de tous les compartiments, mais résume l’état du pool adénylique.
4. Transporter des électrons
Oxydation et réduction sont couplées. Lorsqu’un substrat est oxydé, un accepteur comme NAD+ reçoit des équivalents réducteurs. Le NADH doit ensuite être réoxydé pour que le processus continue.
NADH et NADPH ont des fonctions privilégiées différentes. Le premier relie fréquemment des oxydations cataboliques à la respiration ; le second alimente des réductions biosynthétiques et certains systèmes antioxydants. Cette séparation permet des états redox différents sans contradiction.
Le FAD est souvent lié à son enzyme. Parler de « production de FADH2 » dans un bilan est un raccourci pour la réduction du cofacteur et le transfert de ses électrons, pas nécessairement la libération d’une molécule libre dans le cytosol.
5. Compartimentation
La glycolyse se déroule dans le cytosol. De nombreuses oxydations, dont la majorité des étapes du cycle de Krebs, se déroulent dans la matrice mitochondriale. La chaîne respiratoire est dans la membrane interne. Une localisation différente impose des transporteurs ou des navettes.
La membrane interne mitochondriale ne laisse pas passer librement tous les métabolites. Le NADH cytosolique ne traverse pas simplement pour rejoindre la chaîne ; ses équivalents réducteurs peuvent être transférés par des navettes.
Un métabolite de même nom dans deux compartiments appartient à deux pools qui peuvent avoir des concentrations et fonctions différentes. L’acétyl-CoA mitochondrial et l’acétyl-CoA cytosolique ne s’interconvertissent pas par diffusion libre de cette molécule à travers la membrane interne.
6. Contrôle du flux
Une étape éloignée de l’équilibre peut être un site important de régulation, mais il n’existe pas toujours une unique « enzyme limitante » contrôlant toute la voie. Le contrôle peut être distribué entre enzymes, transporteurs, disponibilité des substrats et demande énergétique.
Une rétro-inhibition permet à un produit final de réduire une activité en amont. Une activation anticipée permet à un intermédiaire de stimuler une étape ultérieure. La phosphorylation et les signaux hormonaux relient plusieurs voies et organes.
Les changements rapides d’activité sont distincts des changements plus lents de quantité enzymatique. Un effet mesuré après quelques secondes n’appelle pas la même explication qu’un effet après plusieurs jours.
7. Méthode de bilan
Pour chaque voie, poser cinq questions : quel substrat entre, quel produit sort, où la voie a lieu, quels transporteurs redox interviennent et quel est le coût ou gain énergétique ? Ensuite seulement, ajouter les régulations et les situations physiologiques.
Dans un bilan, on distingue ATP formé directement par phosphorylation au niveau du substrat et ATP estimé par réoxydation des coenzymes. Le second dépend du couplage et des conventions de rendement.
- Suivre les carbones
- Suivre les électrons
- Compter les nucléotides
- Localiser les réactions
- Relier le flux à la demande
Schéma de principe : lire les conditions et les limites dans le texte.
Ce schéma ne représente pas une voie spécifique : c’est une grille de contrôle pour éviter les bilans incomplets.
Développement : couplage, état stationnaire et analyse de flux
Une réaction défavorable peut avancer
Pour A ⇌ B, ΔG = ΔG°′ + RT ln([B]/[A]) dans un modèle simplifié cohérent avec l’état standard choisi. Si ΔG°′ est positif mais B est rapidement consommé, le rapport peut devenir assez faible pour rendre ΔG négatif.
L’étape suivante influence donc la précédente par la composition. Une enzyme ne change pas la valeur standard, mais l’organisation de plusieurs réactions peut maintenir les concentrations permettant un flux. Ce couplage par intermédiaire doit être distingué d’un couplage direct à l’hydrolyse de l’ATP.
Dans une voie réelle, les activités, les protons fixés par convention et les compartiments compliquent l’écriture. L’équation simple reste une méthode pédagogique pour comprendre pourquoi on ne peut pas conclure à partir du seul signe standard.
Conservation et flux stationnaire
Pour un intermédiaire X, d[X]/dt = flux de production − flux de consommation, si le volume est constant. À l’état stationnaire, les deux flux sont égaux. Si X est aussi importé ou exporté, ces termes doivent être ajoutés.
Un pool de 1 mmol renouvelé à 10 mmol/min peut rester constant tout en étant renouvelé rapidement. Un pool de même taille renouvelé à 0,01 mmol/min est beaucoup plus lent. La mesure du stock ne distingue pas ces situations.
Après inhibition d’une sortie, X peut augmenter transitoirement, puis atteindre un nouvel état où une autre sortie ou une baisse de production compense. Une mesure tardive peut donc manquer l’accumulation initiale.
Charge énergétique et amplification d’AMP
L’adénylate kinase catalyse 2 ADP ⇌ ATP + AMP. Une consommation modérée d’ATP augmentant ADP peut donc produire une variation relative importante d’AMP. AMP sert ainsi de signal sensible dans certains systèmes de régulation énergétique.
La charge énergétique moyenne ne capture cependant pas tous les rapports. Deux cellules ayant une même valeur peuvent différer en concentration totale de nucléotides, en compartiments et en demande. Le rapport ATP/ADP et l’activité du phosphate inorganique interviennent dans l’énergie réelle de phosphorylation.
Il faut aussi distinguer concentration et débit de renouvellement. Une concentration d’ATP maintenue presque constante pendant un effort peut témoigner d’une adaptation réussie de la production, pas d’une faible consommation.
Contrôle distribué
Augmenter dix fois la quantité d’une enzyme ne multiplie pas nécessairement le flux dix fois. Si une autre étape, un transporteur ou l’apport de substrat devient limitant, l’effet sera plus faible. À l’inverse, une petite modification d’une étape peut avoir un effet important si elle contrôle fortement le système dans ce régime.
Les coefficients de contrôle de flux, dans une approche quantitative avancée, mesurent la sensibilité relative du flux à une variation d’activité. Cette notion rappelle qu’un classement d’« enzyme limitante » peut changer selon le contexte.
Une enzyme proche de l’équilibre peut s’adapter à des changements de substrats sans être fortement régulée elle-même. Une étape éloignée de l’équilibre offre souvent un point de direction, mais cela ne suffit pas à attribuer tout le contrôle.
Rapport NADH/NAD+
Une déshydrogénase produisant NADH est influencée par l’état redox du compartiment. Si NADH s’accumule, le sens oxydant peut être freiné thermodynamiquement et par régulation.
Le rapport cytosolique ne se confond pas avec le rapport mitochondrial. Des navettes transfèrent des équivalents réducteurs tout en dépendant de gradients et de métabolites distincts. Une mesure globale sur un extrait peut mélanger ces pools et masquer leurs différences.
NADPH participe à un autre réseau de réactions. Une augmentation de NADH ne remplace pas automatiquement un manque de NADPH, car les enzymes reconnaissent les coenzymes et les compartiments.
Traceur et enrichissement
Si un précurseur marqué représente 10 % d’un pool entrant, un produit à 5 % de marquage ne signifie pas forcément que la moitié de son flux vient de ce précurseur. Il faut considérer nombre de carbones transférés, dilution par d’autres sources, temps nécessaire pour atteindre l’état stationnaire isotopique et recyclages.
Un produit peut devenir marqué sans augmenter en concentration. Inversement, sa concentration peut augmenter sans que le marquage s’accroisse si une source non marquée est mobilisée. Les deux mesures répondent à des questions complémentaires.
Construire un schéma utile
Un schéma de voie doit montrer le compartiment, les entrées et sorties nettes, et les coenzymes transformés. Des flèches réversibles ne signifient pas que les deux sens ont le même flux net dans la cellule.
Pour vérifier le dessin, on peut retirer mentalement les noms d’enzymes et demander si les carbones et les électrons sont conservés. Puis on réintroduit les enzymes pour expliquer vitesse et régulation. Cette double lecture évite un schéma mémorisé sans bilan.
Cas d’intégration : additionner des réactions couplées
Une transformation A → B possède un ΔG de +18 kJ/mol dans les conditions considérées. L’hydrolyse d’un ATP présente simultanément un ΔG de −50 kJ/mol. Un système enzymatique associe les deux transformations avec une stœchiométrie d’un ATP par A. Calculer le bilan et expliquer pourquoi la simple présence d’ATP ne suffit pas à garantir le couplage.
Résolution et discussion
L’addition des bilans donne un ΔG total de −32 kJ/mol pour A + ATP + eau → B + ADP + phosphate, avec les espèces et conventions appropriées. Le bilan global est favorable dans les conditions annoncées. Les valeurs ne doivent pas être remplacées arbitrairement par des valeurs standards : les concentrations réelles contribuent aux ΔG utilisés.
Le couplage exige un mécanisme commun. Un intermédiaire phosphorylé, un changement de conformation ou une organisation du site catalytique peut rendre les transformations interdépendantes. Si l’ATP est hydrolysé ailleurs sans relation avec A, son énergie libre est dissipée et ne pousse pas automatiquement la formation de B. Deux réactions dans le même tube ne sont pas nécessairement couplées.
Il faut aussi conserver la stœchiométrie. Si une étape exige deux ATP, leur contribution apparaît deux fois. Si un transport couple un gradient ionique à une transformation, le bilan doit inclure ce gradient. Une énergie oubliée peut donner l’impression d’une réaction impossible ou, inversement, d’une source gratuite de travail.
Application : un petit pool peut porter un grand flux
Dans un compartiment homogène de volume constant, un métabolite possède un pool de 2 µmol. Sa formation et sa consommation valent chacune 10 µmol/min : le pool reste constant. Le rapport quantité/flux vaut τ = 2/10 = 0,20 min, soit 12 s. Il caractérise un temps moyen de renouvellement dans ce modèle stationnaire.
Si une impulsion initiale de marqueur est apportée dans un pool parfaitement mélangé, puis les apports suivants sont non marqués, et que le marqueur quitte celui-ci selon un flux proportionnel à la fraction marquée, la fraction résiduelle décroît comme exp(−t/τ). Après 12 s, il reste environ 37 % du marquage initial, alors que le pool total est toujours de 2 µmol grâce aux nouvelles entrées.
Ce calcul sépare quantité présente et quantité transformée. Il suppose un seul pool accessible ; compartiments cachés, recyclage du marqueur ou flux variables invalideraient cette cinétique simple. Une mesure de concentration stable ne suffit donc pas à calculer τ sans information sur le flux.
Lecture visuelle : Catalyse : même bilan, barrière plus basse
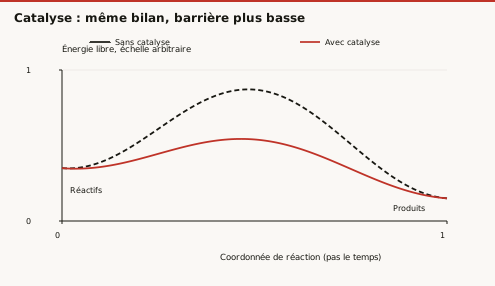
Question de lecture. Peut-on lire la durée de réaction sur la largeur de la bosse ?
Correction. Non. Ni cet axe ni la largeur ne donnent un temps. Une énergie d’activation et un modèle cinétique seraient nécessaires pour relier le profil à une vitesse.
Approfondissement v0.4 : redistribution des adénylates et potentiel de phosphorylation
Un indice ne remplace pas les trois concentrations
Considérons ATP = 2, ADP = 2 et AMP = 1 mmol·L−1. Le pool total vaut 5 et la charge énergétique (2 + 2/2)/5 = 0,60. Une avancée de 0,5 mmol·L−1 de la réaction 2 ADP → ATP + AMP donne ATP = 2,5, ADP = 1 et AMP = 1,5. Le pool total reste 5 ; le numérateur devient 2,5 + 1/2 = 3. La charge énergétique reste donc exactement 0,60 alors que le rapport ATP/ADP passe de 1 à 2,5.
Ce résultat découle de la stœchiométrie : pour une avancée x, le numérateur varie de x + (−2x)/2 = 0. L’adénylate kinase redistribue les nucléotides sans créer de potentiel énergétique à partir de rien. Son sens effectif dépend toutefois des concentrations et de l’équilibre ; l’exemple ne prétend pas que toute composition imposée soit un état stationnaire accessible.
Séparer standard et état réel
À pH fixé et dans une convention biochimique cohérente, ΔG d’hydrolyse de l’ATP contient RT ln([ADP][Pi]/[ATP]) avec concentrations rapportées à l’état standard. Si Pi reste constant, multiplier ATP/ADP par 2,5 diminue ΔG de RT ln 2,5. À 310 K, cela représente environ 2,36 kJ·mol−1 : l’hydrolyse devient plus favorable dans ce modèle, bien que la charge énergétique n’ait pas changé.
Les activités, la liaison au magnésium et le pH peuvent modifier les valeurs exactes. Il faut conserver la même convention lorsqu’on compare deux états. Additionner un ΔG standard chimique et une valeur biochimique transformée provenant de conditions incompatibles ne produit pas un bilan valable.
Une boucle consomme de l’énergie sans déplacer le carbone net
Si une kinase réalise S + ATP → S-P + ADP et une phosphatase S-P + H2O → S + Pi, leur somme est l’hydrolyse de l’ATP. S et S-P disparaissent du bilan global. Un flux égal dans les deux branches laisse leurs quantités stationnaires tout en dissipant de l’énergie. Une concentration stable n’est donc pas la preuve d’un métabolisme arrêté.
Pour établir un bilan, tracer une frontière, choisir une durée, puis compter chaque entrée et sortie. Un flux exprimé en mmol·min−1 ne peut être comparé directement à un stock en mmol : leur quotient définit une durée, pas un rendement. Ces distinctions permettent de confronter un modèle de réseau à des mesures sans confondre indicateur énergétique, force thermodynamique et vitesse.
Exercices progressifs
1. Une concentration constante implique-t-elle l’absence de flux ?
2. ATP → AMP coûte-t-il la même chose que ATP → ADP dans un bilan d’équivalents énergétiques ?
3. Le NADH cytosolique traverse-t-il librement la membrane interne mitochondriale ?
4. Calculer la charge énergétique pour ATP = 4, ADP = 2 et AMP = 1 en unités de concentration communes.
5. Un intermédiaire accumulé prouve-t-il que sa production a augmenté ?
6. Si le pool double à flux inchangé, que devient τ dans ce modèle ?
7. Dans l’état initial ATP = 2, ADP = 2, AMP = 1 mM, prendre x = 0,25 mM pour 2 ADP → ATP + AMP. Calculer la charge énergétique et la variation de ΔG d’hydrolyse à 310 K, Pi constant.
Corrections argumentées
1. Non. Des entrées et sorties égales maintiennent un stock constant.
2. Non. On compte usuellement deux équivalents phosphoanhydride pour ATP → AMP, contre un pour ATP → ADP.
3. Non. Des navettes transfèrent ses équivalents réducteurs.
4. (4 + 0,5 × 2)/(4 + 2 + 1) = 5/7 ≈ 0,714.
5. Non. Sa consommation peut avoir diminué ; concentration et flux doivent être séparés.
6. τ double : 4 µmol/(10 µmol/min) = 0,40 min, soit 24 s. Cela ne prouve pas que chaque molécule reste exactement 24 s ; il s’agit d’un temps moyen dans le modèle de mélange homogène.
7. Les concentrations finales sont 2,25 ; 1,50 ; 1,25 mM. La charge vaut (2,25 + 0,75)/5 = 0,60. ATP/ADP passe de 1 à 1,5. ΔΔG = −RT ln 1,5 = −1,05 kJ·mol−1 avec R = 8,314 J·mol−1·K−1. L’indice reste constant, pas le potentiel de phosphorylation.
Références et périmètre
NCBI Bookshelf, How Cells Obtain Energy from Food et The Mitochondrion. Méthode originale de bilan pour majeure PASS.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, phosphorylation oxydative. Exemples et calculs originaux.
Partie 2 · Glycolyse et devenir du pyruvate
Prérequis et objectifs
Connaître ATP, NADH et compartimentation. Le cours déroule la glycolyse par logique chimique, établit son bilan et compare les principales destinations du pyruvate. Il faut distinguer besoin direct d’oxygène et dépendance indirecte à la régénération des coenzymes.
1. Investir de l’énergie
La glycolyse convertit un glucose à six carbones en deux pyruvates à trois carbones dans le cytosol. La phosphorylation initiale forme glucose-6-phosphate à partir d’ATP. Elle aide à retenir le glucose sous une forme chargée et prépare son métabolisme.
L’isomérisation en fructose-6-phosphate déplace le carbonyle. La phosphofructokinase-1 consomme un second ATP pour former fructose-1,6-bisphosphate. Cette étape constitue un point important de contrôle ; le fructose-2,6-bisphosphate est un régulateur distinct, pas un intermédiaire à confondre avec lui.
Le sucre phosphorylé est ensuite clivé en deux trioses phosphates. La dihydroxyacétone phosphate est convertie en glycéraldéhyde-3-phosphate, ce qui permet aux deux moitiés carbonées de suivre la même suite de réactions.
2. Récupérer ATP et électrons
Le glycéraldéhyde-3-phosphate est oxydé et phosphorylé avec du phosphate inorganique. Le NAD+ reçoit des équivalents réducteurs et devient NADH. L’énergie de l’oxydation contribue à former un intermédiaire à fort potentiel de transfert de phosphoryle.
La phosphoglycérate kinase transfère un phosphate à l’ADP. Après réarrangement et déshydratation, le phosphoénolpyruvate fournit un second ATP par triose grâce à la pyruvate kinase. Comme il y a deux trioses par glucose, quatre ATP sont produits dans cette phase.
Le bilan net est donc deux ATP et deux NADH par glucose, avec deux pyruvates. Les deux ATP investis ne doivent pas être oubliés. La glycolyse ne libère pas de CO2 dans son bilan de conversion du glucose en pyruvate.
3. Régénérer NAD+
Sans réoxydation de NADH, le pool de NAD+ devient insuffisant et l’étape oxydante ralentit. La lactate déshydrogénase réduit le pyruvate en lactate tout en réoxydant NADH en NAD+.
Le bilan glucose → deux lactates produit deux ATP nets et ne produit pas de NADH net. Cette voie permet la glycolyse dans les érythrocytes, qui ne disposent pas de mitochondries fonctionnelles, et contribue dans de nombreux tissus selon les conditions.
Le lactate n’est pas un déchet inutilisable. Il peut être oxydé par d’autres cellules ou servir de précurseur de glucose. Sa production n’implique pas nécessairement une absence totale d’oxygène : elle dépend aussi des flux, des capacités mitochondriales et des compartiments.
4. Entrée mitochondriale et complexe PDH
Le pyruvate peut entrer dans la mitochondrie via un transport adapté. Le complexe pyruvate déshydrogénase réalise une décarboxylation oxydative : pyruvate à trois carbones → groupe acétyle à deux carbones porté par CoA, avec CO2 et NADH.
Le complexe utilise plusieurs cofacteurs, notamment TPP, lipoamide, FAD, NAD+ et CoA. Les étapes répartissent transfert de carbone et d’électrons entre domaines catalytiques. Cette organisation facilite le transfert d’intermédiaires sans les libérer tous dans le milieu.
La réaction est fortement orientée dans le sens de l’acétyl-CoA dans les conditions cellulaires usuelles. Chez l’humain, l’acétyl-CoA ne peut donc pas revenir directement au pyruvate pour produire du glucose net par inversion de PDH.
La phosphorylation de PDH par sa kinase réduit généralement son activité ; la déphosphorylation par sa phosphatase l’active dans le modèle classique. L’état énergétique et les signaux tissulaires modulent ces enzymes de régulation.
5. Autres devenirs du pyruvate
La pyruvate carboxylase produit de l’oxaloacétate en consommant ATP et bicarbonate, avec la biotine comme cofacteur. Cette réaction réapprovisionne le cycle de Krebs et participe à la néoglucogenèse.
La transamination du pyruvate produit de l’alanine en transférant un groupe amino. Cette réaction relie métabolisme carboné et transport de l’azote. Aucun de ces devenirs ne doit être confondu avec la réduction en lactate.
| Destination | Transformation | Fonction |
|---|---|---|
| Lactate | Réduction du pyruvate | Régénérer NAD+ cytosolique |
| Acétyl-CoA | Décarboxylation oxydative | Oxydation ou synthèses |
| Oxaloacétate | Carboxylation | Anaplérose, néoglucogenèse |
| Alanine | Transamination | Échange carbone-azote |
6. Régulation et navettes
L’hexokinase, PFK-1 et pyruvate kinase correspondent à des étapes généralement éloignées de l’équilibre. Les isoenzymes et tissus ont des régulations différentes. Le foie adapte la gestion du glucose sanguin ; le muscle répond notamment à sa demande énergétique.
Les électrons du NADH cytosolique peuvent rejoindre la respiration par les navettes malate-aspartate ou glycérol-3-phosphate. Elles n’ont pas le même point d’entrée et le même rendement conventionnel en ATP. Cette différence explique une partie des bilans 30 ou 32 ATP par glucose complet.
- Investir deux ATP
- Former deux trioses
- Produire ATP et NADH
- Former deux pyruvates
- Choisir lactate ou voie mitochondriale
Schéma de principe : lire les conditions et les limites dans le texte.
Le schéma omet les intermédiaires pour rendre le bilan visible ; les voies ne sont pas exclusives à l’échelle d’un organisme entier.
Développement : suivre les dix étapes et comparer les tissus
Ordre des transformations
La première phosphorylation produit glucose-6-phosphate. L’isomérisation donne fructose-6-phosphate, puis PFK-1 donne fructose-1,6-bisphosphate. L’aldolase coupe ce dernier en glycéraldéhyde-3-phosphate et dihydroxyacétone phosphate ; la triose phosphate isomérase rend les deux moitiés utilisables par la suite.
La glycéraldéhyde-3-phosphate déshydrogénase produit 1,3-bisphosphoglycérate et NADH. La phosphoglycérate kinase donne 3-phosphoglycérate et ATP. La phosphoglycérate mutase donne 2-phosphoglycérate ; l’énolase donne phosphoénolpyruvate ; la pyruvate kinase donne pyruvate et ATP.
Cette succession comporte oxydation, isomérisation, transfert de phosphate et déshydratation. Les noms ne sont pas tous à apprendre comme dix événements indépendants : la phase préparatoire rend possible une coupure symétrique, puis l’oxydation permet de récupérer de l’énergie.
Pourquoi phosphoryler avant de couper
Le glucose est converti en cétose avant la coupure, ce qui permet d’obtenir deux trioses phosphates interconvertibles. Sans ce réarrangement, une simple coupure d’un aldose ne donnerait pas le même couple d’intermédiaires adapté à une voie commune.
Les phosphates retiennent des intermédiaires dans le compartiment et fournissent des prises de reconnaissance aux enzymes. Tous ne proviennent pas de l’ATP : le phosphate introduit lors de l’oxydation du glycéraldéhyde-3-phosphate vient du phosphate inorganique.
Les ATP formés plus tard reçoivent des phosphates des intermédiaires. Le bilan doit donc suivre les groupements autant que les molécules d’ATP.
Hexokinase et glucokinase
Des isoenzymes phosphorylant le glucose possèdent des propriétés différentes. La glucokinase hépatique, également importante dans des cellules de détection du glucose, présente une réponse adaptée à des concentrations plus élevées que plusieurs hexokinases tissulaires.
Leur régulation n’est pas identique. Certaines hexokinases sont freinées par glucose-6-phosphate ; la glucokinase participe à une organisation différente, avec des mécanismes propres de disponibilité et de régulation.
Cette diversité explique comment le foie peut adapter son stockage à l’abondance alors que d’autres tissus continuent à capter et phosphoryler du glucose à des concentrations plus faibles. Il ne faut pas attribuer une seule valeur de Km à « l’hexokinase » de tous les tissus.
PFK-1 comme intégrateur
ATP est à la fois substrat et signal d’abondance énergétique. À certaines concentrations et selon le système, son interaction régulatrice freine PFK-1. AMP et d’autres signaux de demande peuvent favoriser l’activité.
Le citrate relie également le statut métabolique mitochondrial à la glycolyse. Le fructose-2,6-bisphosphate constitue un puissant signal de coordination avec la néoglucogenèse hépatique. Les effets dépendent des concentrations et des isoformes.
Une enzyme allostérique ne se décrit donc pas par une seule hyperbole inchangée. La forme de la courbe et la concentration de demi-réponse peuvent se déplacer sous l’effet des régulateurs.
Pyruvate et redox cytosolique
La réaction lactate déshydrogénase est réversible. Le sens net dépend des concentrations de pyruvate, lactate, NADH et NAD+, ainsi que des conditions du compartiment. Le lactate peut donc être produit dans une cellule et oxydé en pyruvate dans une autre.
Le rapport lactate/pyruvate peut refléter des aspects de l’état redox dans des conditions définies, mais une mesure sanguine globale n’équivaut pas au rapport exact d’un compartiment cellulaire. Transport, mélange des tissus et prélèvement interviennent.
Dire que la fermentation lactique « crée du NAD+ » serait incomplet : elle réoxyde un pool déjà présent. Elle assure son recyclage, sans produire un stock illimité de coenzyme.
Complexe PDH et distribution des tâches
Le TPP facilite la décarboxylation du pyruvate ; la lipoamide sert de bras transporteur du groupe et des électrons ; CoA reçoit le groupe acétyle ; FAD puis NAD+ participent à la réoxydation du système.
Cette organisation explique pourquoi plusieurs carences ou défauts de cofacteurs peuvent affecter une même transformation globale. Elle explique aussi l’intérêt d’un complexe multienzymatique : les intermédiaires sont canalisés entre sites.
Cas de bilan depuis le glycogène
Un résidu de glucose libéré principalement comme glucose-1-phosphate rejoint glucose-6-phosphate sans consommer l’ATP de l’hexokinase. Sa conversion en lactate peut alors donner trois ATP nets dans le bilan simple d’une unité issue d’une liaison alpha(1→4).
Ce résultat ne s’applique pas à chaque résidu de branchement libéré comme glucose libre. Le point d’entrée exact doit être annoncé avant de choisir deux ou trois ATP.
Cas d’intégration : du glucose au lactate, où vont les électrons ?
Dans un modèle cellulaire, une molécule de glucose est convertie en deux lactates sans oxydation mitochondriale nette du pyruvate. Retrouver le bilan en ATP et en NADH, puis expliquer pourquoi la production de lactate permet la poursuite de la glycolyse.
Résolution et discussion
La glycolyse consomme deux ATP dans sa phase d’investissement et en forme quatre dans sa phase de rendement, soit un gain net de deux. Elle réduit aussi deux NAD+ en deux NADH lors de l’oxydation des trioses phosphates. Le pyruvate produit peut ensuite recevoir les équivalents réducteurs du NADH grâce à la lactate déshydrogénase.
La réduction de deux pyruvates en deux lactates réoxyde les deux NADH en NAD+. Le bilan global glucose-lactate ne produit donc pas de NADH net disponible pour une autre voie. La régénération du NAD+ permet à l’étape glycolytique d’oxydation de continuer. Sans elle ni autre voie de réoxydation, le stock de NAD+ disponible limiterait le flux, même si du glucose restait présent.
Ce bilan n’affirme pas que la lactate déshydrogénase fabrique les deux ATP : ceux-ci proviennent de phosphorylations au niveau du substrat dans la glycolyse. Il n’affirme pas davantage que tout lactate signale une absence totale d’oxygène. La production et l’utilisation du lactate dépendent des flux, des compartiments et de l’équilibre des réactions.
Lorsqu’un autre tissu reprend le lactate pour reformer du glucose, il dépense de l’énergie. Le cycle interorganes redistribue donc un coût et un service métaboliques ; il ne crée pas un gain énergétique gratuit. Un bilan complet doit préciser s’il porte sur une cellule, un organe ou l’organisme entier.
Application : vérifier qu’un bilan glycolytique ferme aussi le redox
La glycolyse de 1 mmol de glucose forme 2 mmol de pyruvate, 2 mmol de NADH et 2 mmol d’ATP net. Supposons que seulement 1 mmol de pyruvate soit réduit en lactate : cette étape consomme 1 mmol de NADH. Il reste donc 1 mmol de NADH à réoxyder par une autre voie si le flux doit se poursuivre.
Le bilan carboné peut être parfaitement fermé avec 1 mmol de lactate et 1 mmol de pyruvate, tout en laissant le bilan redox incomplet. Un schéma doit donc montrer à la fois les sorties carbonées et le devenir des équivalents réducteurs. Écrire simplement « glycolyse active » ne fournit pas cette information.
Dans un modèle fermé sans autre accepteur ni régénération de NAD+, ce fonctionnement ne peut pas être stationnaire indéfiniment : le pool de NAD+ disponible diminue. En présence de navettes et de respiration adaptées, une autre destination des électrons peut fermer le bilan.
Approfondissement v0.4 : branches glycolytiques et fermeture du bilan redox
Le passage par le 1,3-bisphosphoglycérate
Après le clivage d’un glucose, deux trioses traversent normalement la réaction de la glycéraldéhyde-3-phosphate déshydrogénase. Chacun fournit un NADH et un 1,3-bisphosphoglycérate. La phosphoglycérate kinase transfère ensuite un phosphate à l’ADP. Il faut compter cette étape deux fois par glucose, comme celle de la pyruvate kinase.
Dans les hématies, une partie du 1,3-bisphosphoglycérate peut passer par le 2,3-bisphosphoglycérate puis rejoindre le 3-phosphoglycérate. Ce détour évite la formation d’ATP par la phosphoglycérate kinase. Il a une fonction de régulation de l’affinité de l’hémoglobine pour l’oxygène, développée dans le cours sur les globines. Il ne constitue pas une production gratuite de régulateur : chaque triose détourné fait perdre un ATP potentiel.
Paramétrer le détournement
Soit f la fraction des deux trioses qui emprunte ce détour, dans un modèle stationnaire simplifié où tout le carbone rejoint le pyruvate. Les ATP formés sont 2(1−f) par la phosphoglycérate kinase et 2 par la pyruvate kinase. Deux ATP ont été investis au départ : le gain net vaut 2−2f par glucose. Pour f = 0,25, il reste 1,5 ATP net en moyenne. Une valeur fractionnaire décrit un grand ensemble de molécules ; elle n’attribue pas une demi-molécule d’ATP à un événement individuel.
Le bilan NADH reste deux par glucose tant que les deux trioses passent par la déshydrogénase. Le détour change ici le bilan d’ATP, pas le nombre de réductions du NAD+. Il faut annoncer ces hypothèses avant de modifier le rendement appris.
La lactate déshydrogénase ferme une boucle de coenzyme
Si les deux pyruvates sont réduits en lactate, deux NADH sont réoxydés : le NAD+ consommé en amont est régénéré. La conversion du glucose en lactate ne fournit donc pas un gain net de NADH. L’ATP net provient des phosphorylations au niveau du substrat ; la réaction terminale permet leur poursuite en recyclant le coenzyme.
Dans une cellule disposant d’autres voies d’oxydation du NADH, une fraction du pyruvate peut suivre un autre destin. Il faut alors identifier explicitement le mécanisme qui réoxyde le NADH cytosolique. Écrire seulement « présence d’oxygène » ne suffit pas : il faut une chaîne fonctionnelle et un transfert des équivalents réducteurs compatible avec les compartiments. Une hématie mature ne dispose pas de mitochondries pour assurer cette fonction.
Exercices progressifs
1. Combien d’ATP nets par glucose converti en pyruvate ?
2. La glycolyse libère-t-elle directement du CO2 ?
3. Pourquoi former du lactate permet-il de maintenir la glycolyse ?
4. Combien de carbones du pyruvate restent dans l’acétyl-CoA ?
5. Un érythrocyte mature peut-il oxyder le pyruvate dans un cycle de Krebs mitochondrial ?
6. Sur 2 mmol de pyruvate formés par mmol de glucose, 1,5 mmol deviennent lactate. Quel NADH reste à réoxyder autrement ?
7. Un ensemble de 100 molécules de glucose fournit des lactates ; 40 des 200 trioses empruntent le détour évitant la phosphoglycérate kinase. Compter ATP net et NADH net.
Corrections argumentées
1. Deux : quatre produits moins deux investis.
2. Non. Le CO2 apparaît notamment lors de la conversion du pyruvate en acétyl-CoA et dans le cycle.
3. La réduction du pyruvate réoxyde NADH en NAD+, nécessaire à l’étape du glycéraldéhyde-3-phosphate.
4. Deux ; le troisième est libéré comme CO2.
5. Non. Il ne possède pas la machinerie mitochondriale correspondante.
6. 0,5 mmol : la glycolyse produit 2 mmol de NADH et la LDH en consomme 1,5. Le gain glycolytique direct reste 2 mmol d’ATP dans ce bilan, sans préjuger de l’ATP éventuellement formé par la réoxydation restante.
7. f = 40/200 = 0,20. Les étapes productrices donnent 160 + 200 = 360 ATP, contre 200 investis : 160 ATP nets, soit 1,6 par glucose. Les 200 NADH formés sont consommés par la réduction des 200 pyruvates : bilan NADH nul, sous les hypothèses de l’énoncé.
Références et périmètre
NCBI Bookshelf, métabolisme énergétique, mitochondrie. Bilans conventionnels explicités ; pas de diagnostic à partir d’un métabolite isolé.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, glycolyse. Exemples et calculs originaux.
Références mécanistiques vérifiées le 2 octobre 2026 : SIB ENZYME, bisphosphoglycérate mutase.
Partie 3 · Cycle de Krebs et phosphorylation oxydative
Prérequis et objectifs
Connaître acétyl-CoA, NADH et mitochondrie. Le cours relie une oxydation carbonée à la génération d’un gradient puis à la synthèse d’ATP. Le cycle et la chaîne respiratoire sont distincts mais fonctionnellement couplés.
1. Entrée du groupe acétyle
L’acétyl-CoA apporte deux carbones qui se condensent avec l’oxaloacétate à quatre carbones pour former citrate à six carbones. La libération de CoA et l’hydrolyse associée contribuent à orienter cette étape.
Le citrate est réarrangé en isocitrate, puis deux décarboxylations oxydatives conduisent à alpha-cétoglutarate et succinyl-CoA. Deux CO2 et deux NADH sont produits dans cette partie. Les carbones libérés au premier tour ne sont pas simplement les deux carbones nouvellement entrés avec l’acétyle.
Le succinyl-CoA conduit au succinate avec une phosphorylation au niveau du substrat, sous forme de GTP ou d’ATP selon les isoenzymes. Le succinate est oxydé en fumarate via la succinate déshydrogénase, puis hydraté en malate et oxydé en oxaloacétate.
2. Bilan et caractère cyclique
Par acétyl-CoA, le bilan conventionnel comporte trois NADH, un équivalent FADH2 et un GTP, avec deux CO2. L’oxaloacétate est régénéré : il fonctionne comme un accepteur catalytique dans le bilan idéal du tour.
La majorité des étapes se déroule dans la matrice ; la succinate déshydrogénase est intégrée à la membrane interne et appartient aussi au complexe II de la chaîne respiratoire. Cette exception de localisation est importante.
Le cycle ne consomme pas directement O2 dans ses étapes usuelles. Il dépend néanmoins de la réoxydation des coenzymes par la respiration. Si NADH s’accumule et NAD+ manque, les déshydrogénases ralentissent.
3. Anaplérose et sorties
Les intermédiaires alimentent des biosynthèses : citrate pour des voies lipidiques après export, alpha-cétoglutarate et oxaloacétate pour des acides aminés, succinyl-CoA pour des synthèses spécifiques. Ces sorties diminueraient le pool si rien ne le réapprovisionnait.
Les réactions anaplérotiques reconstituent des intermédiaires. La pyruvate carboxylase forme de l’oxaloacétate à partir de pyruvate, ATP et bicarbonate. Ajouter de l’acétyl-CoA seul ne remplace pas une perte nette d’oxaloacétate dans le cycle classique.
Le flux dépend de la disponibilité des substrats, du rapport NADH/NAD+ et de la demande en ATP. Un cycle riche en enzymes peut rester lent si les coenzymes oxydés ou les accepteurs manquent.
4. Chaîne respiratoire
Les électrons du NADH entrent notamment au complexe I ; ceux du succinate atteignent l’ubiquinone via le complexe II. L’ubiquinone relie ces entrées au complexe III, puis le cytochrome c transfère les électrons au complexe IV, où O2 est réduit en eau.
Les complexes I, III et IV contribuent à la translocation de protons. Le complexe II ne pompe pas de protons dans ce schéma. L’entrée au niveau de l’ubiquinone contourne donc le complexe I et récupère moins d’énergie sous forme de gradient.
Les protons sont accumulés du côté intermembranaire par rapport à la matrice. Le gradient électrochimique combine différence de concentration en protons et différence de potentiel électrique. Une membrane interne suffisamment étanche est indispensable.
5. ATP synthase et transport
Le retour des protons par l’ATP synthase est couplé à des changements conformationnels et à la formation d’ATP à partir d’ADP et Pi. Le gradient n’est pas seulement « une réserve de protons » : c’est une différence de potentiel électrochimique exploitable.
Les échanges ADP/ATP et l’import du phosphate participent au coût global. Les rendements conventionnels d’environ 2,5 ATP par NADH mitochondrial et 1,5 par entrée de type FADH2 résument plusieurs hypothèses. Ce ne sont pas des constantes universelles exactes pour chaque mitochondrie.
Avec ces conventions, un tour fournit 3 × 2,5 + 1 × 1,5 + 1 = 10 ATP équivalents. L’oxydation complète du glucose donne souvent 30 ou 32 ATP selon les navettes utilisées pour les NADH cytosoliques et les conventions retenues.
6. Inhibiteur et découplant
Un inhibiteur de la chaîne bloque le transfert des électrons à une étape. Les transporteurs en amont tendent à rester réduits, ceux en aval peuvent rester plus oxydés selon les apports. La consommation d’oxygène et la synthèse d’ATP diminuent.
Un inhibiteur de l’ATP synthase empêche le retour productif des protons. Le gradient peut augmenter puis freiner la chaîne. Un découplant dissipe le gradient sans synthèse correspondante d’ATP ; si substrats et capacité respiratoire sont disponibles, la consommation d’oxygène peut augmenter tandis que le rendement ATP baisse.
| Intervention | Gradient | ATP par respiration | O2 dans le modèle adapté |
|---|---|---|---|
| Blocage de chaîne | Formation diminuée | Diminue | Diminue |
| Blocage ATP synthase | Peut augmenter initialement | Diminue | Freiné secondairement |
| Découplage | Diminue | Diminue | Peut augmenter |
- Oxyder dans le cycle
- Réduire les coenzymes
- Transférer les électrons
- Établir le gradient
- Synthétiser ATP
Schéma de principe : lire les conditions et les limites dans le texte.
Ce schéma relie deux systèmes distincts ; il ne signifie pas qu’un NADH libre est produit par toutes les entrées de la chaîne.
Développement : rendement, gradient et expériences respiratoires
Suivre les deux carbones d’acétyle
L’acétyle entrant se condense avec l’oxaloacétate ; les carbones sont ensuite redistribués dans les intermédiaires. Les deux CO2 du premier tour ne correspondent pas simplement à la perte immédiate des deux carbones entrants.
Un traceur placé sur un carbone particulier de l’acétyle peut donc apparaître dans des positions différentes au fil des tours. La symétrie de certains intermédiaires contribue à redistribuer le marquage. Un bilan net de deux carbones sortants ne décrit pas l’identité atomique de chaque carbone au premier passage.
Cette distinction est importante pour comprendre pourquoi le cycle est bien une voie d’oxydation de l’acétyle sans que l’on puisse dessiner deux flèches directes de ses carbones vers CO2 dès la première rotation.
Pourquoi l’oxaloacétate doit rester disponible
La citrate synthase exige simultanément acétyl-CoA et oxaloacétate. Un apport massif d’acétyl-CoA ne suffit pas si l’accepteur est insuffisant. Les sorties d’intermédiaires vers d’autres synthèses doivent être compensées.
La pyruvate carboxylase ajoute un carbone sous forme de bicarbonate au pyruvate et produit un intermédiaire à quatre carbones. Cette anaplérose augmente réellement le pool du cycle, contrairement à l’entrée d’acétyl-CoA dans le bilan cyclique classique.
Le cycle de Krebs ne donne donc pas de production nette d’oxaloacétate à partir d’acétyl-CoA seul. Ce fait contribue à expliquer l’absence de conversion nette générale des acides gras pairs en glucose chez l’humain.
Force proton-motrice
L’énergie d’un proton traversant une membrane dépend de la différence de concentration et du potentiel électrique. Deux compartiments au même pH peuvent encore présenter une énergie de transport liée au potentiel ; deux compartiments sans potentiel peuvent présenter une composante chimique.
La matrice mitochondriale est généralement négative et plus alcaline que le côté externe de la membrane interne dans le fonctionnement classique. Les deux composantes favorisent le retour des protons vers la matrice.
Une fuite protonique dissipe cette énergie. Si la chaîne compense en consommant davantage d’oxygène, une partie de l’énergie du substrat devient chaleur plutôt qu’ATP. L’efficacité du couplage doit donc être distinguée de la vitesse respiratoire.
Ajouter ADP à des mitochondries isolées
Dans une préparation respiratoire disposant de substrats et d’oxygène, ajouter ADP peut stimuler la synthèse d’ATP et la consommation d’oxygène. L’ATP synthase utilise le gradient, ce qui permet à la chaîne de continuer à pomper des protons.
Lorsque l’ADP devient limitant, le retour productif des protons ralentit, le gradient freine la chaîne et la respiration diminue. Cette dépendance à la demande est une forme de contrôle respiratoire.
Le résultat exige une préparation suffisamment intacte. Des mitochondries endommagées ou déjà découplées peuvent consommer de l’oxygène sans répondre de la même manière à l’ADP.
Inhibiteur suivi d’un découplant
Si l’ATP synthase est bloquée, un découplant peut restaurer une partie du flux d’électrons en dissipant le gradient, mais ne restaure pas la synthèse d’ATP par l’enzyme bloquée.
Si le complexe IV est bloqué, un découplant ne rétablit pas à lui seul le transfert final des électrons à l’oxygène. Dissiper le gradient ne répare pas une coupure de la chaîne. L’ordre et la cible des additions permettent donc de localiser le mécanisme.
Bilan complet du glucose
La glycolyse donne deux ATP nets et deux NADH cytosoliques. PDH donne deux NADH par glucose. Les deux tours de Krebs donnent six NADH, deux équivalents FADH2 et deux GTP.
Avec navette malate-aspartate et les rendements conventionnels 2,5/1,5, les dix NADH comptent 25 ATP, les deux entrées FADH2 trois ATP, et les phosphorylations directes quatre : total 32.
Si les deux NADH cytosoliques entrent via une navette donnant un rendement de 1,5 chacun, le total diminue de deux et devient 30. Les coûts de transport et les fuites réelles peuvent encore modifier le rendement observé ; il faut présenter ces nombres comme bilans de modèle.
Production d’espèces réactives
Une petite fraction des électrons peut être transférée prématurément à l’oxygène et former des espèces réactives. Des systèmes de défense les transforment et limitent leurs effets.
Cette possibilité ne signifie pas que toute respiration soit pathologique. Elle rappelle que flux redox, couplage et protection antioxydante sont liés. Une hausse de consommation d’oxygène ne permet pas à elle seule de conclure au niveau d’espèces réactives produites.
Cas d’intégration : dissocier consommation d’oxygène et production d’ATP
Des mitochondries isolées disposent d’un substrat oxydable, d’oxygène, d’ADP et de phosphate. Un composé augmente la perméabilité de la membrane interne aux protons sans transporter d’électrons. On observe une augmentation de la consommation d’oxygène et une diminution du rendement en ATP. Comment relier ces deux observations ?
Résolution et discussion
La chaîne respiratoire utilise le transfert d’électrons vers l’oxygène pour contribuer à un gradient électrochimique de protons. Le retour contrôlé des protons par l’ATP synthase participe à la synthèse d’ATP. Une fuite supplémentaire dissipe une partie de ce gradient sans produire le même travail de phosphorylation.
La diminution de la contre-pression exercée par le gradient peut accélérer le transfert d’électrons et la consommation d’oxygène tant que les substrats et les capacités de la chaîne le permettent. Pourtant, moins d’ATP est obtenu par quantité de substrat oxydé. Une partie plus importante de l’énergie est dissipée sous forme de chaleur. Consommer davantage d’oxygène ne signifie donc pas toujours produire davantage d’ATP.
Ce profil diffère de celui d’un inhibiteur bloquant directement la chaîne, qui peut réduire fortement l’utilisation d’oxygène. Il diffère aussi d’un blocage de l’ATP synthase, qui tend à freiner secondairement la respiration par accumulation du gradient dans un système couplé. L’ordre d’ajout des composés et le contexte expérimental sont essentiels.
Pour interpréter le résultat, mesurer à la fois respiration, potentiel membranaire et ATP est plus informatif qu’un seul paramètre. Il faut également vérifier l’intégrité des mitochondries : une membrane détruite peut dissiper un gradient sans reproduire une régulation physiologique. Le modèle explique un principe de couplage ; il ne rend pas tous les défauts membranaires équivalents.
Application : compter les molécules d’oxygène
La réduction complète d’une molécule O2 en deux H2O nécessite quatre électrons : O2 + 4 H+ + 4 e− → 2 H2O. Un NADH apporte deux électrons ; son oxydation par la chaîne correspond donc à la réduction d’une demi-molécule d’O2 dans le bilan stœchiométrique.
Pour 8 µmol de NADH réoxydés exclusivement par cette voie, la consommation théorique d’O2 est 4 µmol. Si le rendement conventionnel annoncé est 2,5 ATP par NADH, la formation estimée est 20 µmol d’ATP. Le rapport vaut alors 5 ATP par O2, mais 2,5 ATP par atome d’oxygène réduit : les deux dénominateurs ne sont pas identiques.
Ce calcul ne déduit pas un rendement réel d’une seule mesure d’O2. Fuite protonique, substrats multiples et réactions consommatrices d’oxygène extérieures à la chaîne peuvent modifier l’interprétation. La convention du rapport P/O doit toujours être annoncée.
Lecture visuelle : Chaîne respiratoire : deux trajets et deux compartiments
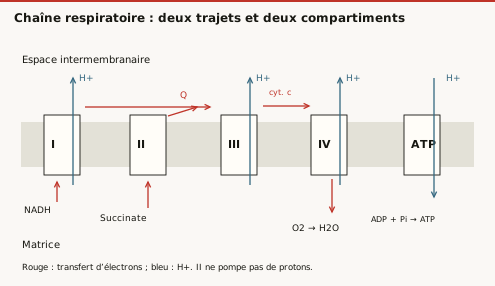
Question de lecture. Pourquoi un découplant peut-il diminuer l’ATP sans arrêter immédiatement les transferts d’électrons ?
Correction. Il offre un retour des protons qui dissipe la force protonmotrice sans synthèse d’ATP correspondante. Transport électronique et phosphorylation sont couplés par le gradient, pas par une équivalence obligatoire entre leurs débits.
Approfondissement v0.4 : énergie du proton et localisation d’un blocage
Donner un sens aux signes
Pour transférer une mole de protons du côté externe de la membrane interne vers la matrice, la variation électrochimique s’écrit ΔG = RT ln([H+]mat/[H+]ext) + F(ψmat−ψext). Le premier terme dépend du gradient de concentration ; le second dépend du potentiel électrique et de la charge +1 du proton. R vaut 8,314 J·mol−1·K−1 et F environ 96 485 C·mol−1.
Avec une matrice plus alcaline de 0,5 unité de pH, [H+]mat/[H+]ext = 10−0,5. À 310 K, le terme chimique vaut −2,97 kJ·mol−1. Si ψmat−ψext = −0,150 V, le terme électrique vaut −14,47 kJ·mol−1. Leur somme est −17,44 kJ·mol−1 : le retour du proton est favorable. Les deux signes concordent ici, mais ils doivent être calculés séparément plutôt que mémorisés sans convention.
Ce que permet le bilan énergétique
Si la synthèse d’une mole d’ATP demande 50 kJ dans les conditions choisies, trois protons apporteraient au maximum 52,3 kJ dans ce modèle idéal. Cette comparaison donne une contrainte thermodynamique ; elle ne démontre pas une stœchiométrie universelle de trois protons par ATP. La structure de l’ATP synthase, le transport du phosphate et les échanges ADP/ATP contribuent au coût global. Les valeurs P/O usuelles sont des approximations de bilan à annoncer.
Utiliser deux points d’entrée des électrons
Des substrats qui produisent du NADH matriciel alimentent le complexe I. Le succinate peut alimenter l’ubiquinone par le complexe II. Si un blocage isolé du complexe I empêche l’oxydation du NADH, l’ajout de succinate peut restaurer un flux vers III puis IV, à condition que ces éléments et l’oxygène soient disponibles. Il ne répare pas le complexe I : il utilise une entrée différente.
Un blocage complet du complexe IV ne peut pas être contourné par le succinate, car les deux voies d’entrée convergent vers le même transfert terminal à l’oxygène. Un découplant peut lever le frein dû au gradient mais ne franchit pas une rupture chimique de cette chaîne. Pour interpréter une expérience, préciser successivement le substrat, le site inhibé, l’intégrité de la membrane, les accepteurs disponibles et ce qui est mesuré : consommation d’oxygène, potentiel ou ATP. Ces mesures ne sont pas interchangeables.
Exercices progressifs
1. Combien de NADH par acétyl-CoA dans le cycle ?
2. Quel complexe relie succinate et chaîne respiratoire ?
3. Le complexe II pompe-t-il des protons ?
4. Calculer le rendement conventionnel d’un tour avec 2,5 et 1,5 ATP par coenzyme.
5. Un découplant augmente-t-il nécessairement la production d’ATP ?
6. Une préparation réoxyde 6 µmol de NADH par la chaîne. Quel minimum stœchiométrique d’O2 correspond à ce transfert de douze µmol d’électrons ?
7. Recalculer ΔG par proton avec ΔpH = 0,5 mais Δψ = −0,100 V à 310 K. Trois protons peuvent-ils fournir 50 kJ·mol−1 dans le modèle idéal ?
Corrections argumentées
1. Trois dans le bilan usuel.
2. La succinate déshydrogénase, complexe II.
3. Non dans ce schéma mitochondrial.
4. 7,5 + 1,5 + 1 = 10 ATP équivalents.
5. Non. Il dissipe le gradient ; la respiration peut augmenter alors que la synthèse d’ATP devient moins efficace.
6. 3 µmol d’O2, puisque chaque O2 reçoit quatre électrons. Le nombre d’ATP ne peut être fixé qu’après ajout d’une hypothèse de couplage et de rendement.
7. Le terme chimique reste −2,97 kJ·mol−1 ; le terme électrique devient −9,65. Le total est −12,62 kJ·mol−1. Trois protons fournissent au maximum 37,9 kJ·mol−1 : insuffisant pour une synthèse coûtant 50. Ce raisonnement énergétique ne fixe pas à lui seul la stœchiométrie du moteur.
Références et périmètre
NCBI Bookshelf, The Mitochondrion et cycle citrique. Les rendements annoncés sont des conventions de bilan, non des mesures universelles.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, phosphorylation oxydative. Exemples et calculs originaux.
Partie 4 · Glycogène, néoglucogenèse et voie des pentoses
Prérequis et objectifs
Connaître glycolyse et logique des voies irréversibles. Le cours compare stockage du glucose, mobilisation des réserves, synthèse de glucose et production de NADPH. Il faut attribuer chaque voie à ses produits utiles et aux tissus qui l’utilisent.
1. Synthèse du glycogène
Le glucose-6-phosphate est converti en glucose-1-phosphate, puis activé sous forme d’UDP-glucose. La glycogène synthase allonge des chaînes par liaisons alpha(1→4). Une enzyme branchante crée des liaisons alpha(1→6).
L’activation consomme un nucléotide triphosphate et s’inscrit dans un bilan énergétique. Stocker du glucose n’est donc pas une simple condensation gratuite. Le polymère évite cependant l’énorme pression osmotique qu’imposerait la même quantité de glucose sous forme de molécules libres.
Les nombreuses extrémités non réductrices rendent possible un travail parallèle des enzymes. La ramification répond donc à des contraintes de mobilisation et d’organisation.
2. Glycogénolyse
La glycogène phosphorylase coupe les liaisons alpha(1→4) par phosphorolyse et libère surtout du glucose-1-phosphate. L’enzyme débranchante traite les points de branchement ; sa composante alpha(1→6)-glucosidase libère du glucose libre au niveau concerné.
Le glucose-1-phosphate devient glucose-6-phosphate. Dans le muscle, il alimente principalement la glycolyse pour les besoins locaux. Dans le foie, la glucose-6-phosphatase permet la formation de glucose libre exportable ; le muscle squelettique ne remplit pas ce rôle de libération directe par cette enzyme.
Un résidu glucosyl issu d’une liaison alpha(1→4) évite l’investissement initial de l’hexokinase lorsqu’il rejoint la glycolyse. Le bilan énergétique peut donc différer de celui d’un glucose libre, selon le point d’entrée et les branches.
3. Régulation coordonnée
L’insuline favorise globalement le stockage et le glucagon la mobilisation hépatique dans les situations adaptées. Dans le schéma classique, phosphorylation active la glycogène phosphorylase via une cascade et inhibe la glycogène synthase ; la déphosphorylation favorise l’inverse.
Le muscle répond fortement à ses signaux locaux et à l’adrénaline ; il ne faut pas transposer automatiquement la réponse hépatique au glucagon. Calcium et état énergétique peuvent coordonner glycogénolyse et contraction.
Ces tendances n’impliquent pas que toutes les molécules d’une enzyme passent instantanément d’un état totalement actif à totalement inactif. La régulation module des populations et des flux.
4. Néoglucogenèse
La néoglucogenèse forme du glucose à partir de précurseurs non glucidiques comme lactate, glycérol et certains acides aminés. Elle utilise des étapes réversibles communes à la glycolyse et des contournements des étapes fortement orientées.
Pyruvate → oxaloacétate par pyruvate carboxylase, puis oxaloacétate → phosphoénolpyruvate par PEP carboxykinase contournent la pyruvate kinase. Fructose-1,6-bisphosphatase contourne PFK-1 ; glucose-6-phosphatase contourne la phosphorylation initiale du glucose.
À partir de deux pyruvates, le coût conventionnel est quatre ATP, deux GTP et deux NADH pour un glucose. Si le précurseur est lactate, son oxydation en pyruvate fournit le NADH cytosolique nécessaire selon l’organisation de la voie. Le bilan dépend donc du point de départ.
Le glycérol rejoint les trioses phosphates. Les acides gras à nombre pair de carbones fournissent de l’acétyl-CoA mais pas de glucose net chez l’humain dans le schéma général. Les acides gras à nombre impair peuvent fournir du propionyl-CoA, cas différent.
5. Régulation réciproque
Le fructose-2,6-bisphosphate active PFK-1 et inhibe fructose-1,6-bisphosphatase. Dans le foie, les signaux hormonaux modifient sa concentration via l’enzyme bifonctionnelle PFK-2/FBPase-2.
Cette régulation réciproque limite un cycle futile où glycolyse et néoglucogenèse consommeraient de l’énergie sans bilan carboné utile. Elle ne signifie pas que les deux flux soient absolument nuls ou exclusifs partout.
L’acétyl-CoA active la pyruvate carboxylase et signale notamment une disponibilité de carburant lipidique. La néoglucogenèse exige de l’énergie ; l’oxydation des acides gras peut contribuer à la fournir.
6. Voie des pentoses phosphates
La phase oxydative produit NADPH, CO2 et un pentose phosphate à partir du glucose-6-phosphate. La phase non oxydative réarrange les carbones entre pentoses et intermédiaires glycolytiques.
Le NADPH soutient des synthèses réductrices et la régénération de systèmes antioxydants. Le ribose-5-phosphate sert à la synthèse des nucléotides. Selon les besoins, la cellule peut rechercher surtout NADPH, surtout ribose ou une combinaison.
Les transkétolases déplacent des fragments à deux carbones et utilisent TPP ; les transaldolases déplacent des fragments à trois carbones. Le bilan de carbone permet de contrôler ces échanges sans mémoriser chaque flèche isolément.
| Voie | Objectif dominant | Produit ou usage |
|---|---|---|
| Glycogénogenèse | Stocker | Glycogène |
| Glycogénolyse | Mobiliser | Glucose-1-phosphate |
| Néoglucogenèse | Produire glucose | Glucose exportable selon tissu |
| Pentoses | Réductions et nucléotides | NADPH et ribose |
- Produire de l’ATP
- Stocker en glycogène
- Fournir NADPH et ribose
- Libérer du glucose si enzyme présente
Repères complémentaires, sans ordre ni lien de cause.
Ces devenirs sont des branches concurrentes ou complémentaires, et non des étapes successives. Leur disponibilité dépend du tissu, des enzymes et de l’état métabolique.
Les branches sont simultanément possibles ; leur importance relative dépend du tissu et de l’état physiologique.
Développement : amorçage, contournements et besoins en pentoses
Amorcer une réserve
La glycogène synthase allonge une chaîne préexistante ; elle ne commence pas simplement une longue chaîne à partir d’un glucose isolé. Dans le modèle classique, la glycogénine participe à l’amorçage par une courte chaîne liée à la protéine.
L’UDP-glucose apporte une unité activée. Après transfert, UDP est libéré et doit être régénéré dans le réseau nucléotidique. L’énergie investie dans l’activation favorise la formation contrôlée du polymère.
L’enzyme branchante déplace un segment d’une chaîne vers un OH en position 6 d’un résidu, créant une branche. Elle ne synthétise pas un glucose supplémentaire et ne modifie pas le nombre total de résidus : elle change l’architecture.
Débrancher en deux fonctions
La phosphorylase s’arrête à proximité d’une branche. Une activité transférase déplace plusieurs résidus vers une autre extrémité, puis une activité glucosidase hydrolyse la liaison alpha(1→6) restante.
Cette différence explique pourquoi la glycogénolyse produit majoritairement glucose-1-phosphate mais aussi une petite part de glucose libre. Le bilan exact d’un polymère dépend de ses points de branchement.
Une enzyme débranchante déficiente ne se remplace pas par davantage de phosphorylase : celle-ci conserve sa limite structurale. L’accumulation d’un glycogène anormal peut donc renseigner sur l’étape touchée, sans suffire à poser un diagnostic.
Transport de l’oxaloacétate
L’oxaloacétate mitochondrial ne traverse pas librement la membrane interne. Pour soutenir une néoglucogenèse à étapes cytosoliques, son carbone peut être transféré sous une autre forme, notamment malate ou aspartate, puis reconverti.
Le choix de la route influence aussi le transfert d’équivalents réducteurs. Partir du lactate fournit du NADH cytosolique lors de sa conversion en pyruvate ; partir de certains autres précurseurs ne fournit pas exactement le même bilan.
Les schémas qui déplacent directement une flèche d’oxaloacétate à travers la membrane sans transporteur ou conversion masquent donc une contrainte importante. Il faut préciser le compartiment et la route choisie.
Pourquoi trois contournements
Hexokinase/glucokinase, PFK-1 et pyruvate kinase correspondent à des étapes fortement orientées dans les conditions de glycolyse. Les inverser avec les mêmes enzymes demanderait des conditions de composition incompatibles avec un fonctionnement efficace de l’autre voie.
Des enzymes différentes permettent d’utiliser de l’énergie et de réguler séparément le sens gluconéogène. Le contournement pyruvate → PEP mobilise deux réactions, ce qui explique pourquoi « trois étapes irréversibles » conduit à quatre enzymes majeures de contournement.
Les phosphatases de la voie libèrent du phosphate par hydrolyse ; elles ne produisent pas de l’ATP en inversant simplement une kinase. Cette différence est centrale dans le coût global.
Phases des pentoses selon les besoins
Si la cellule a besoin de NADPH et de ribose dans les proportions de la phase oxydative, cette phase peut alimenter directement les synthèses. Si le besoin en ribose est important mais celui en NADPH faible, des réarrangements non oxydatifs à partir d’intermédiaires glycolytiques peuvent contribuer.
Si le besoin en NADPH dépasse celui en ribose, les pentoses peuvent être reconvertis en intermédiaires puis réutilisés dans des circuits adaptés. Le réseau ajuste les flux ; il n’existe pas un unique bilan global obligatoire de la voie dans tous les tissus.
La phase oxydative libère du CO2. Un marquage du carbone 1 du glucose peut donc être utilisé dans des raisonnements de traçage, avec les précautions sur recyclage et compartiments.
NADPH et glutathion
La glutathion réductase utilise NADPH pour régénérer le glutathion réduit à partir de sa forme oxydée. D’autres enzymes utilisent ensuite ce pouvoir réducteur pour traiter des peroxydes.
Les érythrocytes dépendent fortement de ces systèmes pour limiter les dommages oxydants dans leur contexte particulier. Une voie de pentoses ne doit donc pas être vue comme facultative simplement parce qu’elle ne produit pas directement beaucoup d’ATP.
La quantité de glucose consommée par cette voie peut augmenter en réponse à une demande réductrice. Une baisse de glycolyse relative ne signifie pas nécessairement une baisse de tout métabolisme du glucose.
Cas de coordination hépatique
Pendant une situation favorisant la production de glucose, diminuer le fructose-2,6-bisphosphate réduit la stimulation de PFK-1 et soulage l’inhibition de FBPase-1. Le signal agit donc sur deux voies opposées de manière cohérente.
Ce modèle décrit l’isoforme hépatique classique. Des enzymes bifonctionnelles d’autres tissus peuvent répondre différemment à la phosphorylation ; transposer la flèche hormonale sans identifier le tissu crée une erreur de régulation.
Cas d’intégration : un même stock sert des objectifs différents
Deux tissus possèdent du glycogène : le foie et le muscle squelettique. Pendant une demande énergétique, ils libèrent des unités glucosylées à partir de ce stock. Pourquoi ne contribuent-ils pas de la même façon au maintien du glucose sanguin ?
Résolution et discussion
La glycogénolyse fournit majoritairement du glucose-1-phosphate, ensuite converti en glucose-6-phosphate. Dans le muscle, ce métabolite peut entrer dans la glycolyse et soutenir un besoin local d’ATP. Le glucose phosphorylé ne traverse pas simplement la membrane comme du glucose libre ; le groupement phosphate contribue à le retenir dans la cellule.
Le foie dispose d’un système de glucose-6-phosphatase permettant la production de glucose libre et son export. Le muscle squelettique ne possède pas cette capacité de libération directe équivalente dans le modèle physiologique enseigné. Son stock sert donc principalement son propre fonctionnement, alors que le foie participe à l’homéostasie glycémique de l’organisme.
Le muscle peut néanmoins fournir indirectement des précurseurs au foie, notamment du lactate ou de l’alanine selon le contexte. Dire qu’il ne libère pas directement le glucose de son glycogène ne signifie pas qu’il soit isolé des échanges interorganes. Il faut préciser la molécule exportée et la transformation nécessaire dans l’organe receveur.
La régulation reflète ces finalités. Des signaux locaux de contraction ou d’état énergétique influencent le muscle ; des signaux hormonaux et la disponibilité du glucose influencent les flux hépatiques. Appliquer exactement le même schéma de régulation aux deux tissus ferait disparaître cette spécialisation.
Application : fermer un bilan de la voie des pentoses
Dans la phase non oxydative, trois pentoses phosphates totalisent quinze carbones et peuvent donner deux fructose-6-phosphates et un glycéraldéhyde-3-phosphate : 3 × 5 = 2 × 6 + 3. Cette égalité vérifie le squelette carboné sans remplacer les étapes de transkétolase et transaldolase.
Si ces trois pentoses proviennent de trois passages de glucose-6-phosphate dans la phase oxydative, on a auparavant produit trois CO2 et six NADPH. Le bilan carboné des deux phases ensemble est 18 carbones entrants = 15 carbones dans les intermédiaires + 3 dans CO2.
Le NADPH est un produit redox, pas une source de carbones pour compléter une égalité mal équilibrée. Inversement, lorsque la cellule forme du ribose par réarrangements non oxydatifs à partir d’intermédiaires glycolytiques, on ne doit pas lui attribuer automatiquement les deux NADPH de la phase oxydative qui n’a pas été parcourue.
Approfondissement v0.4 : recomposer les pentoses et distinguer les demandes
Vérifier chaque transfert de carbone
La phase non oxydante de la voie des pentoses phosphates réorganise des squelettes carbonés. La transcétolase transfère un fragment à deux carbones ; la transaldolase, un fragment à trois carbones. Le bilan usuel trois pentoses → deux hexoses + un triose conserve 15 carbones. Il peut être reconstruit sans apprendre une flèche isolée.
Une première transcétolase associe xylulose-5-phosphate et ribose-5-phosphate : 5 + 5 devient glycéraldéhyde-3-phosphate (3) et sédoheptulose-7-phosphate (7). La transaldolase associe ensuite le composé à sept carbones et le triose : 7 + 3 devient fructose-6-phosphate (6) et érythrose-4-phosphate (4). Une seconde transcétolase utilise un autre xylulose-5-phosphate avec ce composé à quatre carbones : 5 + 4 devient fructose-6-phosphate (6) et glycéraldéhyde-3-phosphate (3). Les intermédiaires à sept et quatre carbones s’éliminent du bilan.
NADPH et ribose ne sont pas une même demande
La phase oxydante produit, par glucose-6-phosphate engagé, deux NADPH et un CO2 avant la réorganisation des pentoses. La phase non oxydante ne produit pas directement de NADPH : ce sont des transferts de fragments, pas des oxydations. Sa réversibilité permet, selon les concentrations et les enzymes disponibles, d’alimenter une demande en ribose à partir d’intermédiaires glycolytiques sans imposer la même production de NADPH.
Inversement, une forte demande de NADPH avec une faible demande de ribose favorise le retour des pentoses vers des intermédiaires réutilisables. Il ne faut pas confondre cette possibilité métabolique avec une obligation pour toute cellule de réaliser exactement le même recyclage. La disponibilité enzymatique et l’état du réseau déterminent le trajet effectif.
Compter le glycogène avec ses deux sorties
La phosphorolyse libère surtout du glucose-1-phosphate, converti en glucose-6-phosphate sans ATP d’hexokinase. L’hydrolyse des liaisons de branchement fournit une fraction de glucose libre. Dans un modèle de glycolyse jusqu’au lactate, un résidu issu de phosphorolyse procure trois ATP nets ; un glucose libre nécessitant phosphorylation en procure deux.
Si une réserve libère 90 résidus par phosphorolyse et 10 par hydrolyse, le total théorique est 90 × 3 + 10 × 2 = 290 ATP. Il faut préciser la frontière : ce calcul porte sur la dégradation d’une réserve déjà formée. Il n’inclut pas le coût de sa synthèse antérieure. Comparer ce résultat à un glucose libre sans annoncer cette différence de départ masquerait une partie du bilan énergétique.
Exercices progressifs
1. La phosphorylase libère-t-elle principalement du glucose libre ?
2. Pourquoi le muscle ne libère-t-il pas directement son glycogène comme glucose sanguin ?
3. Quel coût énergétique pour un glucose issu de deux pyruvates ?
4. Le NADPH de la voie des pentoses sert-il seulement à produire de l’ATP ?
5. Le fructose-2,6-bisphosphate favorise-t-il simultanément PFK-1 et FBPase-1 ?
6. Six pentoses à cinq carbones sont reconvertis selon ce bilan non oxydatif. Combien de fructose-6-phosphates et de glycéraldéhyde-3-phosphates obtient-on ?
7. Neuf pentoses sont entièrement réorganisés selon le bilan non oxydant. Combien d’hexoses et de trioses obtient-on ? Si ces pentoses provenaient tous de la phase oxydante, combien de NADPH et de CO2 avaient été produits ?
Corrections argumentées
1. Non. Elle libère principalement du glucose-1-phosphate.
2. Il ne possède pas la fonction glucose-6-phosphatase permettant cette exportation dans le schéma étudié.
3. Quatre ATP et deux GTP, plus deux NADH.
4. Non. Ses rôles majeurs concernent réductions biosynthétiques et défenses réductrices.
5. Non. Il active PFK-1 et inhibe FBPase-1, coordonnant les sens opposés.
6. Quatre fructose-6-phosphates et deux glycéraldéhyde-3-phosphates. Le contrôle est 6 × 5 = 4 × 6 + 2 × 3 = 30 carbones. Aucun CO2 ni NADPH n’est produit par ce seul bilan de réarrangement.
7. Trois répétitions du bilan donnent six hexoses et trois trioses : 6 × 6 + 3 × 3 = 45 carbones, comme 9 × 5. La formation oxydante préalable des neuf pentoses avait donné 18 NADPH et 9 CO2 à partir de neuf glucose-6-phosphates. Ces NADPH ne proviennent pas des réarrangements non oxydants.
Références et périmètre
NCBI Bookshelf, Biochemistry, Glycogen et énergie issue des nutriments. Bilans pédagogiques ; les isoformes tissulaires précisent les exceptions.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, connexions des voies métaboliques. Exemples et calculs originaux.
Références mécanistiques vérifiées le 2 octobre 2026 : SIB ENZYME, transcétolase; SIB ENZYME, transaldolase.
Ce cours, en cartes de révision
Ce cours est déjà transformé en 388 cartes, chacune sourcée à sa page. Tu l’ajoutes gratuitement à tes cours depuis la bibliothèque de l’app, et Ossik te ressort ses cartes au bon moment.