Ce cours réunit 6 parties : 1. Immunité innée, inflammation et complément ; 2. Présentation antigénique, organes lymphoïdes et activation T ; 3. Lymphocytes B, anticorps et centres germinatifs ; 4. Tolérance, hypersensibilités et immunodéficiences ; 5. Mémoire immunitaire, vaccination et immunité des muqueuses ; 6. Hémostase : plaquettes, coagulation, freins et fibrinolyse.
Partie 1 · Immunité innée, inflammation et complément
Prérequis et objectifs
Prérequis : barrières, leucocytes et protéines plasmatiques.
À la fin de ce cours : expliquer reconnaissance et recrutement ; suivre phagocytose et complément ; distinguer inflammation locale et réponse systémique.
Barrières et reconnaissance
La peau et les muqueuses associent jonctions, renouvellement, mucus, mouvement ciliaire, molécules antimicrobiennes et communautés microbiennes. Une barrière efficace n’est pas nécessairement stérile. Son intégrité physique et sa chimie réduisent l’accès aux tissus profonds tout en permettant échanges et tolérance aux éléments utiles.
Les récepteurs de reconnaissance de motifs, PRR, détectent des structures associées aux microbes ou aux dommages. Les PAMP désignent des motifs microbiens ; les DAMP proviennent de cellules ou matrices endommagées. Ces récepteurs sont codés dans la lignée germinale et ne résultent pas du même réarrangement aléatoire que les récepteurs B et T.
La localisation importe : un récepteur membranaire, endosomal ou cytosolique rencontre des ligands différents. Détecter un acide nucléique au mauvais endroit peut signaler une infection ou un dommage. La reconnaissance déclenche des programmes de cytokines, de défense antivirale et de modification du comportement cellulaire.
Inflammation locale
Vasodilatation, modification de perméabilité et recrutement cellulaire contribuent aux signes classiques de rougeur, chaleur, gonflement et douleur. Les médiateurs comprennent cytokines, chimiokines, lipides et amines selon les cellules. Une inflammation peut être provoquée par une lésion stérile ; elle ne prouve pas automatiquement une infection.
Le recrutement leucocytaire suit des interactions successives : roulement, activation, adhérence ferme, traversée endothéliale et migration dans le tissu. Les sélectines participent au roulement ; les intégrines activées renforcent l’adhérence à leurs ligands. Les chimiokines fournissent des informations de direction et d’activation. L’augmentation d’affinité des intégrines montre que l’adhérence est régulée, pas une simple surface collante permanente.
Les neutrophiles arrivent rapidement dans de nombreuses réponses ; les monocytes recrutés peuvent se différencier et participer à l’élimination et à la réparation. Les macrophages résidents jouent déjà un rôle de détection. Les chronologies varient selon tissu et agent, et ne constituent pas un ordre obligatoire identique dans toute inflammation.
Phagocytose
La reconnaissance peut être directe ou facilitée par des opsonines, comme des anticorps ou des fragments du complément. L’engloutissement forme un phagosome qui mûrit et fusionne avec des compartiments lysosomaux. Acidification, enzymes et systèmes oxydants contribuent à la destruction. Certains agents résistent ou perturbent ces étapes, expliquant qu’engloutissement ne signifie pas élimination garantie.
L’explosion oxydative utilise notamment la NADPH oxydase pour produire des espèces réactives. D’autres mécanismes, dont peptides antimicrobiens et enzymes, complètent l’action. Ces molécules peuvent aussi endommager les tissus de l’hôte si leur production est mal localisée ou prolongée. La puissance d’une défense doit donc être accompagnée d’une régulation.
Cellules NK
Les NK intègrent des signaux activateurs et inhibiteurs. La reconnaissance de molécules du CMH I contribue souvent à l’inhibition ; une diminution du CMH I associée à des signaux de stress peut favoriser la cytotoxicité. Il ne suffit pas de dire « NK tue toute cellule sans CMH » : plusieurs récepteurs et contextes déterminent la réponse.
Elles peuvent libérer perforine et granzymes et produire des cytokines. Certaines réalisent une cytotoxicité dépendante d’anticorps via des récepteurs Fc. Elles relient ainsi reconnaissance innée et information apportée par des anticorps adaptatifs, sans utiliser elles-mêmes un TCR réarrangé pour reconnaître un peptide-CMH.
Complément
Le complément est un réseau de protéines activées en cascade. Les voies classique, des lectines et alternative convergent vers des convertases de C3. La voie classique peut être déclenchée par certains anticorps fixés à leur cible ; les lectines reconnaissent certains motifs glucidiques ; la voie alternative assure notamment une amplification sur des surfaces compatibles.
C3b favorise l’opsonisation et participe à l’assemblage de complexes enzymatiques. C3a et C5a contribuent à l’inflammation, avec un rôle particulièrement puissant de C5a dans le recrutement et l’activation. Le complexe d’attaque membranaire peut lyser certaines cibles sensibles. Toutes les bactéries ne sont pas également détruites par ce mécanisme terminal.
| Produit ou fonction | Conséquence principale |
|---|---|
| C3b et dérivés | Opsonisation et amplification |
| C3a, C5a | Médiation inflammatoire |
| C5b-9 | Formation d’un complexe membranaire terminal |
| Régulateurs du complément | Protection des surfaces et limitation de cascade |
Les cellules de l’hôte possèdent des régulateurs limitant l’activation sur leurs surfaces. Une cascade sans frein serait dangereuse. Déficits et excès de complément peuvent donc tous deux être associés à des dommages, par des mécanismes différents.
Réponse antivirale et résolution
Les interférons de type I induisent un état antiviral dans les cellules et influencent les réponses immunitaires. Ils ne détruisent pas directement tous les virions comme un désinfectant. Ils modifient l’expression de gènes et la capacité de l’hôte à limiter la réplication.
La résolution de l’inflammation est active : arrêt de recrutement, élimination des cellules mortes, changements de médiateurs et réparation. Une réponse persistante peut devenir chronique et altérer le tissu. Une réaction systémique importante peut modifier température, production hépatique de protéines et fonctions circulatoires. Les mécanismes fondamentaux n’autorisent pas à juger la gravité d’une personne sur un seul marqueur inflammatoire.
- Détection de danger
- Médiateurs
- Recrutement et activation
- Élimination
- Résolution et réparation
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : les branches antivirales, le complément et les interactions adaptatives se chevauchent ; la résolution peut échouer.
Localiser un déficit sur la cascade du complément
Situation. Une expérience bloque les dernières étapes de formation du complexe d'attaque membranaire tout en conservant le dépôt de C3b. Toutes les fonctions du complément disparaissent-elles ?
Correction. Non. Le dépôt de C3b peut encore contribuer à l'opsonisation et favoriser la reconnaissance par les phagocytes. Le complexe terminal assure une autre fonction, la formation d'une structure membranaire impliquée dans la lyse de certaines cibles. Des fragments comme C5a participent aussi au recrutement et à l'activation inflammatoire. La conséquence d'un blocage dépend donc de sa position, et la lyse n'est pas l'unique sortie du système. Un schéma en cascade doit montrer des branches fonctionnelles ; une suite de cases finissant seulement par « destruction » masquerait cette diversité.
Ingestion et destruction : choisir deux lectures indépendantes
Une fluorescence associée à une cellule peut correspondre à une particule attachée à la surface, internalisée ou dégradée. Pour démontrer la phagocytose, il faut distinguer signal externe et interne ; pour démontrer l'élimination, il faut mesurer une propriété de viabilité ou de dégradation pertinente. L'augmentation du nombre de particules dans une cellule peut traduire une capture efficace ou une incapacité à les éliminer.
Le phagosome change de composition pendant sa maturation. Acidification, acquisition d'enzymes et production d'espèces réactives ne sont pas un seul événement. Un agent peut perturber une étape tout en laissant les précédentes intactes. Le bilan apparent dépend également des flux d'entrée et de sortie.
Produire un précurseur et libérer une cytokine active
Certaines réponses inflammatoires comportent une étape de préparation transcriptionnelle puis une activation protéolytique. L'IL-1 bêta fournit un exemple où la quantité de précurseur ne doit pas être confondue avec la quantité de cytokine mature libérée. Des plateformes intracellulaires appelées inflammasomes peuvent participer à cette maturation selon les signaux et les cellules.
Le mécanisme n'est pas une règle identique pour toutes les cytokines. Mesurer un ARN, une protéine intracellulaire et une activité extracellulaire correspond à trois niveaux. Une hausse d'ARN n'établit pas à elle seule l'intensité de la réponse inflammatoire fonctionnelle.
Exercice. Une cellule accumule du précurseur mais ne libère pas de forme active ; une autre en libère beaucoup malgré une quantité intracellulaire modérée. Pourquoi les deux mesures ne sont-elles pas contradictoires ?
Correction. La synthèse, la maturation, la libération et l'élimination sont des flux différents. Une accumulation peut révéler un blocage en aval ; une faible réserve peut coexister avec une sortie rapide. Une expérience doit suivre les compartiments et les temps pour localiser l'étape limitante.
Exercices progressifs
Exercice 1. Une inflammation implique-t-elle toujours un microbe ?
Exercice 2. Quelles molécules participent au roulement puis à l’adhérence ferme ?
Exercice 3. Définir opsonisation.
Exercice 4. C3b et C5a ont-ils exactement la même fonction ?
Exercice 5. Pourquoi une cellule NK ne peut-elle être décrite comme un T CD8 sans spécificité ?
Corrections argumentées
Correction 1. Non. Des lésions stériles libèrent des signaux de dommage capables d’activer l’inflammation.
Correction 2. Les sélectines participent au roulement ; les intégrines activées contribuent à l’adhérence ferme via leurs ligands.
Correction 3. Marquage d’une cible facilitant sa reconnaissance et son ingestion par des phagocytes, notamment par anticorps ou fragments du complément.
Correction 4. Non. C3b est central dans opsonisation et amplification ; C5a est un médiateur inflammatoire et chimiotactique puissant.
Correction 5. La NK utilise une balance de récepteurs innés activateurs/inhibiteurs et non un TCR reconnaissant un peptide présenté par le CMH comme un T conventionnel.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 2 · Présentation antigénique, organes lymphoïdes et activation T
Prérequis et objectifs
Prérequis : lymphocytes, protéines et trafic endolysosomal.
À la fin de ce cours : comparer CMH I et II ; expliquer activation T naïve ; relier organes lymphoïdes et circulation cellulaire.
Antigène, épitope et reconnaissance
Un antigène est une structure reconnue par des récepteurs immunitaires ; un épitope est la portion effectivement reconnue. Le BCR peut reconnaître une structure native accessible. Le TCR des lymphocytes T conventionnels reconnaît principalement un complexe associant peptide et molécule du CMH. Il ne suffit donc pas de dire que B et T se fixent de la même manière à une bactérie entière.
Le CMH humain est appelé HLA. Il est polygénique et polymorphe : plusieurs loci existent et de nombreux allèles circulent dans la population. Chaque personne exprime une partie de cette diversité. Les allèles influencent les peptides présentables, sans qu’un allèle unique détermine à lui seul toute réponse immunitaire.
Voie CMH I
Le CMH I est exprimé par la plupart des cellules nucléées, avec des niveaux variables. Des protéines intracellulaires sont dégradées, notamment par le protéasome ; des peptides sont transportés vers le réticulum par TAP puis chargés sur des molécules de CMH I avec des partenaires d’assemblage. Le complexe rejoint la surface et peut être reconnu par des T CD8.
Une cellule peut ainsi présenter des peptides du soi ou de protéines virales produites en elle. Le T CD8 activé ne reconnaît pas directement un virus libre par ce mécanisme ; il détecte une cellule présentant un peptide approprié. Les hématies matures, anucléées, ne correspondent pas au modèle général de présentation par une cellule nucléée.
La présentation croisée permet à certaines cellules, notamment dendritiques, de présenter sur CMH I des antigènes captés depuis l’extérieur. Elle est essentielle pour initier certaines réponses CD8 lorsque la cellule présentatrice n’est pas elle-même infectée. La règle « CMH I = toujours origine strictement interne » doit donc être nuancée.
Voie CMH II
Le CMH II est surtout exprimé par des cellules présentatrices professionnelles comme dendritiques, macrophages et B, avec des possibilités d’induction dans d’autres contextes. Des antigènes internalisés sont dégradés dans des compartiments endolysosomaux. La chaîne invariante protège et oriente le CMH II ; des échanges de peptides aboutissent au complexe présenté aux T CD4.
Un lymphocyte B peut capter très efficacement un antigène par son BCR, l’internaliser puis présenter des peptides associés. Le T auxiliaire reconnaît alors un peptide de l’antigène capté, pas nécessairement exactement le même épitope que celui lié par le BCR. Cette reconnaissance liée permet une coopération spécifique.
| Critère | CMH I | CMH II |
|---|---|---|
| Expression typique | La plupart des cellules nucléées | Cellules présentatrices professionnelles |
| Source classique de peptides | Protéines intracellulaires | Protéines internalisées |
| Compartiment de chargement principal | Réticulum dans la voie classique | Compartiments endosomaux spécialisés |
| Corécepteur associé | CD8 | CD4 |
Cellule dendritique et activation naïve
Une cellule dendritique capte des antigènes dans les tissus, reçoit des signaux de contexte et migre vers un organe lymphoïde. Sa maturation modifie expression de molécules de présentation, de costimulation et de récepteurs de migration. Présenter un peptide ne signifie pas automatiquement activer un lymphocyte naïf : l’état de la présentatrice compte.
On distingue pédagogiquement signal de reconnaissance TCR-peptide-CMH, signal de costimulation et signaux cytokiniques orientant la différenciation. CD28 sur le T et ses ligands sur la présentatrice constituent une interaction costimulatrice majeure. Sans contexte approprié, la reconnaissance peut favoriser absence de réponse, anergie ou tolérance plutôt qu’expansion protectrice.
Après activation, les clones appropriés prolifèrent et se différencient. Les T CD8 acquièrent des capacités cytotoxiques ; les T CD4 orientent et soutiennent différentes réponses. Les catégories auxiliaires, comme Th1, Th2, Th17 et Tfh, correspondent à des programmes et fonctions dominants avec plasticité, non à des boîtes totalement étanches.
Effecteurs et freinage
Un T cytotoxique forme un contact avec sa cible et peut libérer perforine et granzymes ou utiliser des récepteurs de mort. Le but est d’éliminer la cellule cible ; cela ne revient pas à phagocyter le virus. Les cytokines peuvent également limiter la réplication et recruter d’autres acteurs.
Les T auxiliaires influencent macrophages, B et autres cellules selon leur programme. Les Tfh participent notamment aux réponses des centres germinatifs. Des récepteurs inhibiteurs et des mécanismes régulateurs limitent l’activation. Une réponse intense mais mal contrôlée peut endommager le tissu même si la reconnaissance initiale était spécifique.
Organes et circulation
Le thymus est un organe primaire de maturation T ; la moelle assure notamment production hématopoïétique et maturation B. Les organes secondaires organisent les rencontres : ganglions pour les antigènes venant de la lymphe tissulaire, rate pour le sang, tissus lymphoïdes muqueux pour les interfaces.
Les lymphocytes naïfs recirculent par sang, organes et lymphe. Les veinules à endothélium haut de nombreux ganglions permettent leur entrée depuis le sang. Les chimiokines et molécules d’adhérence guident leur localisation. Un antigène rare et un clone rare peuvent ainsi se rencontrer grâce à une organisation qui concentre les participants.
- Capture tissulaire
- Migration dendritique
- Présentation et costimulation
- Expansion clonale
- Effecteurs et mémoire
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : certaines rencontres suivent d’autres trajets, et toutes les cellules effectrices ne restent pas dans le ganglion.
Expérience d’interprétation
Si une cellule présente un peptide mais ne déclenche pas la prolifération T, plusieurs explications existent : costimulation insuffisante, T non spécifique, inhibition, peptide mal chargé ou cellule non viable. Ajouter une seule molécule et voir une réponse renforce une hypothèse sans démontrer que tous les autres facteurs sont inutiles. Le raisonnement doit séparer reconnaissance, activation, prolifération et fonction effectrice.
Figure intégrée : atlas 24-09
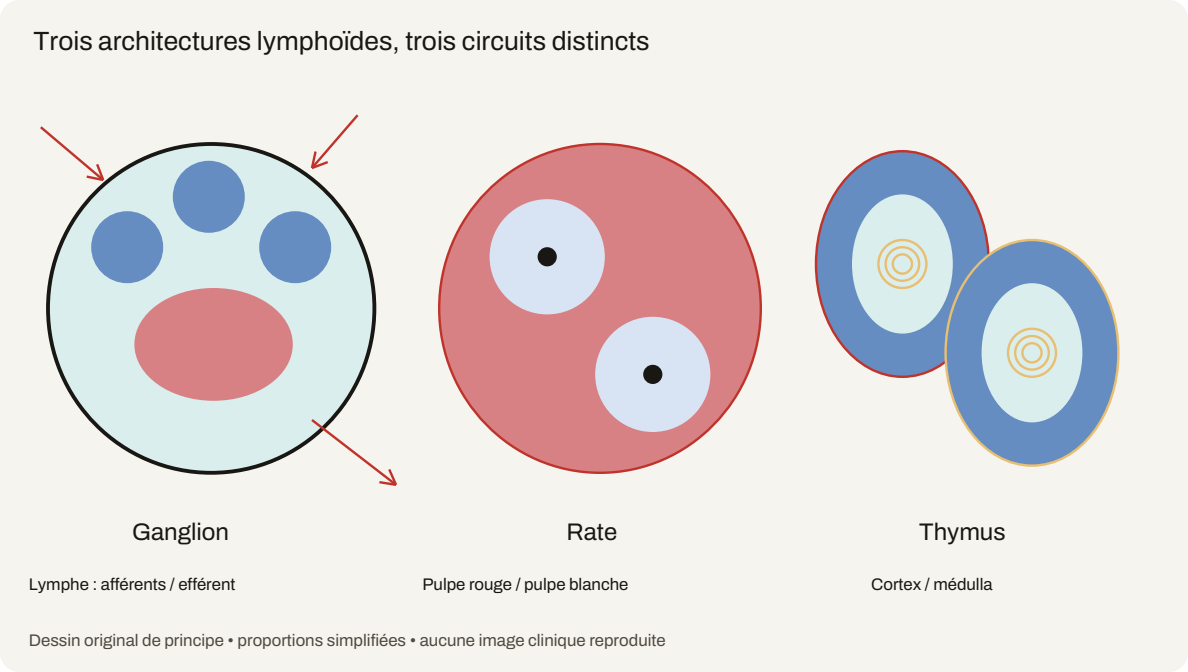
Légende du dessin
1. Ganglion : follicules bleus périphériques, région paracorticale rose et trajet lymphatique schématique.
2. Rate : fond de pulpe rouge et territoires de pulpe blanche autour de petits axes artériels.
3. Thymus : lobules à cortex bleu et médulla claire, corpuscules de Hassall figurés en anneaux.
Lecture et limites
Le ganglion reçoit la lymphe par des voies afférentes et la draine par une voie efférente. Les follicules et le paracortex correspondent à des organisations où les populations lymphocytaires ne sont pas distribuées au hasard. Le dessin ne détaille pas les sinus ni les veinules à endothélium haut ; ces omissions ne signifient pas leur absence.
La rate surveille notamment des éléments apportés par le sang. Sa pulpe blanche est organisée en relation avec des artères, tandis que la pulpe rouge participe notamment au traitement des éléments sanguins. Les flèches lymphatiques afférentes du ganglion ne doivent donc pas être recopiées sur la rate.
Le thymus est un organe lymphoïde primaire impliqué dans la maturation des lymphocytes T. Les lobules comportent cortex et médulla. Les anneaux ne représentent pas des follicules B mais des corpuscules de Hassall schématisés. Ce contraste aide à éviter une reconnaissance fondée seulement sur la présence de zones claires et foncées. Aucune photographie réelle n’est reproduite : la vérification sur lames reste indispensable.
Le dessin figure également dans la planche autonome 24-01, partie 4, avec un exercice de restitution.
Présenter un antigène sans produire le virus
Cas. Une cellule dendritique ingère des débris d'une cellule infectée puis active un T CD8 naïf. Faut-il en déduire qu'elle est elle-même infectée et produit de nouveaux virions ?
Correction. Non. La présentation croisée permet, dans des cellules compétentes, de présenter sur CMH I un antigène acquis depuis l'extérieur. Cela peut amorcer une réponse CD8 sans infection productive de la cellule dendritique. Il faut distinguer origine du matériel, voie de présentation et capacité de production virale. La présence du complexe peptide-CMH I ne suffit pas non plus à prouver une activation naïve : costimulation et signaux de contexte restent importants. Une cellule cible infectée et une cellule qui initie la réponse peuvent donc avoir des rôles différents.
Exercices progressifs
Exercice 1. Que reconnaît un TCR conventionnel ?
Exercice 2. Un antigène externe peut-il être présenté sur CMH I ?
Exercice 3. Pourquoi la reconnaissance seule ne suffit-elle pas toujours à activer un T naïf ?
Exercice 4. Quel organe surveille principalement les antigènes sanguins ?
Exercice 5. Le BCR et le TCR auxiliaire doivent-ils reconnaître le même épitope moléculaire exact ?
Corrections argumentées
Correction 1. Un complexe peptide-CMH approprié, et non simplement un antigène natif libre.
Correction 2. Oui, par présentation croisée dans des cellules spécialisées. La voie classique ne constitue pas une exclusivité absolue.
Correction 3. La costimulation et le contexte cytokinique déterminent le devenir. Une reconnaissance isolée peut participer à la tolérance.
Correction 4. La rate. Les ganglions reçoivent surtout la lymphe provenant des tissus.
Correction 5. Non. Le BCR capte une structure native ; le T reconnaît un peptide présenté issu de l’antigène lié. La coopération exige une relation antigénique, pas une identité de surface reconnue.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 3 · Lymphocytes B, anticorps et centres germinatifs
Prérequis et objectifs
Prérequis : réarrangements génétiques, lymphocytes et protéines.
À la fin de ce cours : relier structure et fonction des anticorps ; distinguer commutation et affinité ; suivre une réponse B dépendante des T.
Diversité avant la rencontre
Les lymphocytes B produisent des récepteurs par réarrangement de segments génétiques. Les chaînes lourdes utilisent des segments V, D et J ; les chaînes légères V et J. La diversité combinatoire et les variations aux jonctions créent de nombreuses spécificités. L’antigène sélectionne des clones préexistants ; il ne dessine pas directement le récepteur parfaitement adapté.
La maturation impose des contrôles limitant les récepteurs fortement autoréactifs. Les cellules B naïves expriment généralement des immunoglobulines membranaires de type IgM et IgD ayant une même spécificité, issues de mécanismes d’expression du locus. La coexistence d’isotypes en surface n’implique pas forcément deux clones différents dans la même cellule.
Architecture d’un anticorps
Une immunoglobuline classique associe deux chaînes lourdes et deux légères, reliées par des interactions et des ponts disulfure. Les régions variables forment les sites de reconnaissance ; les régions constantes déterminent une grande partie des fonctions effectrices. Les fragments Fab portent la liaison antigénique ; le Fc interagit avec récepteurs et complément selon l’isotype.
L’affinité décrit la force d’une interaction entre un site et un épitope. L’avidité décrit la stabilité globale d’interactions multiples. Une IgM multimérique peut présenter une forte avidité malgré une affinité unitaire modérée. Confondre ces deux mesures conduit à mal interpréter l’effet de la valence.
Fonctions effectrices
La neutralisation empêche un agent ou une toxine de se fixer ou d’agir. L’opsonisation facilite la phagocytose via des récepteurs reconnaissant la portion constante. Certains anticorps activent le complément lorsqu’ils sont correctement disposés sur leur cible. D’autres recrutent des cellules cytotoxiques par leurs récepteurs Fc. L’anticorps n’a donc pas toujours besoin de tuer lui-même pour protéger.
La liaison à un antigène n’est pas nécessairement neutralisante. Un anticorps peut reconnaître une région sans importance pour l’entrée de l’agent ou inaccessible au moment utile. Mesurer un titre de liaison ne suffit donc pas toujours à mesurer la protection fonctionnelle.
| Isotype | Propriété pédagogique importante |
|---|---|
| IgM | Réponse initiale fréquente, forme sécrétée multimérique |
| IgG | Nombreuses fonctions systémiques, passage placentaire selon sous-classe et contexte |
| IgA | Défense muqueuse, forme sécrétoire souvent dimérique |
| IgE | Liaison aux mastocytes/basophiles, réponses antiparasitaires et allergiques |
| IgD | Récepteur de nombreux B naïfs avec IgM |
Activation dépendante des T
Le BCR capte l’antigène, qui est internalisé et présenté sur CMH II. Une cellule T auxiliaire appropriée fournit des signaux, notamment interaction CD40-CD40L et cytokines. Le B prolifère puis peut produire des plasmoblastes, entrer dans une réaction de centre germinatif ou former des cellules mémoire selon le contexte.
Les réponses indépendantes des T sont possibles avec certains antigènes et organisations répétitives. Elles présentent des caractéristiques différentes et ne reproduisent pas toutes les propriétés d’une réponse germinative fortement aidée. Il faut donc éviter « tout anticorps exige obligatoirement un T » tout autant que « les B n’ont jamais besoin d’aide ».
Centre germinatif
Dans les centres germinatifs, les cellules B prolifèrent et subissent des hypermutations somatiques dans les régions variables, avec un rôle de l’enzyme AID. Les variants sont ensuite sélectionnés selon leur capacité à capter l’antigène et à recevoir l’aide appropriée. La maturation d’affinité est donc mutation plus sélection ; toutes les mutations n’améliorent pas la liaison.
La commutation de classe modifie la région constante de la chaîne lourde tout en conservant l’arrangement variable principal. Elle change les fonctions effectrices et les destinations sans changer directement l’épitope reconnu. Les hypermutations concomitantes peuvent cependant modifier l’affinité : deux processus distincts peuvent avoir lieu dans une même réponse.
Les cellules dendritiques folliculaires retiennent des antigènes sous une forme accessible aux B. Malgré leur nom, elles ne sont pas identiques aux cellules dendritiques classiques présentant des peptides aux T naïfs. La similitude de vocabulaire masque des origines et fonctions différentes.
Plasmocytes et mémoire
Le plasmocyte est spécialisé dans la sécrétion d’anticorps et possède un réticulum développé. Certains vivent longtemps dans des niches, notamment médullaires, et maintiennent des anticorps circulants sans nouvelle exposition continue à l’antigène. Les B mémoire persistent avec une capacité de réponse rapide lors d’un rappel.
Anticorps persistants et cellules mémoire sont donc deux ressources différentes. Une personne peut conserver une mémoire même si un titre mesuré diminue ; inversement, un anticorps détectable ne garantit pas une mémoire identique pour toutes les fonctions. La protection dépend du seuil utile, de l’agent et du site d’entrée.
- Capture par BCR
- Présentation au T auxiliaire
- Aide et expansion
- Sélection et différenciation
- Plasmocytes et mémoire
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : il regroupe des voies parallèles ; toutes les cellules activées ne passent pas par chaque étape ni ne deviennent mémoire.
Lire des résultats
Si un sérum contient davantage d’IgG après rappel, on peut évoquer une réponse secondaire, mais la quantité seule ne mesure ni affinité ni neutralisation. Un test de liaison, une mesure d’avidité et un test fonctionnel répondent à des questions différentes. La présence d’IgA dans le sang n’est pas non plus identique à celle d’IgA sécrétoire sur une muqueuse : transport et forme moléculaire comptent.
Séparer isotype et qualité de reconnaissance
Exercice. Le clone A passe d'IgM à IgG sans changement de séquence variable. Le clone B acquiert une mutation de sa région variable puis est sélectionné pour une meilleure liaison. Quel mécanisme modifie quoi ?
Correction. A illustre la commutation de classe : la région constante de chaîne lourde change, ce qui modifie notamment les fonctions effectrices et la distribution, sans changer directement le site de reconnaissance. B illustre une composante de la maturation d'affinité : variation suivie de sélection. Une mutation n'améliore pas nécessairement la liaison ; elle peut la diminuer ou abolir la fonction. Le changement d'isotype ne prouve donc pas à lui seul une affinité supérieure. L'avidité globale dépend encore du nombre de sites engagés et de leur organisation.
Reconnaissance liée : deux récepteurs, deux formes d'un même ensemble
Le BCR reconnaît une structure accessible de l'antigène natif ; après internalisation, le B peut présenter des peptides sur CMH II. Le T auxiliaire reconnaît un complexe peptide-CMH, et non obligatoirement l'épitope conformationnel initialement lié par le BCR. Les deux spécificités coopèrent parce qu'elles concernent un même ensemble capté, pas parce qu'elles doivent être identiques.
Dans un centre germinatif, les cellules B entrent en compétition pour capter un antigène limité et obtenir une aide appropriée. Une mutation qui améliore une liaison n'est utile que dans le contexte de cette sélection. Certaines mutations détériorent le récepteur ; la diversification seule ne garantit aucune amélioration moyenne sans sélection.
Commutation et mémoire : conserver ce qui est réellement conservé
La commutation change la région constante de chaîne lourde. Elle ne change pas directement l'arrangement variable, même si une cellule peut subir par ailleurs des hypermutations. On ne doit donc pas attribuer à la commutation toutes les différences de spécificité observées entre deux populations au cours du temps.
Les plasmocytes à longue vie et les B mémoire contribuent différemment à la protection. Un plasmocyte sécrète ; un B mémoire répond à une nouvelle stimulation et peut produire des descendants effecteurs. Une baisse d'anticorps circulants ne prouve pas la disparition de toute mémoire, et une mémoire présente ne garantit pas une neutralisation immédiate suffisante à toute porte d'entrée.
Exercice. Un sérum lie mieux un antigène après rappel. Peut-on attribuer cette amélioration à la seule présence d'IgG plutôt qu'IgM ? Correction. Non. Concentration, affinité, avidité, épitopes et conditions du test peuvent changer. Il faut comparer des quantités et des formes contrôlées, et séparer test de liaison et neutralisation. L'isotype ne résume pas la qualité de reconnaissance.
Exercices progressifs
Exercice 1. La commutation IgM vers IgG change-t-elle directement la région variable ?
Exercice 2. Distinguer affinité et avidité.
Exercice 3. Un anticorps qui se lie est-il forcément neutralisant ?
Exercice 4. Quel signal de contact majeur intervient dans l’aide T au B ?
Exercice 5. Un titre d’anticorps bas prouve-t-il une absence de cellules mémoire ?
Corrections argumentées
Correction 1. Non. Elle remplace principalement la région constante lourde. Les mutations variables constituent un processus distinct pouvant se dérouler dans la même réponse.
Correction 2. L’affinité concerne une interaction unitaire ; l’avidité résulte de plusieurs liaisons et de leur géométrie globale.
Correction 3. Non. Il peut reconnaître une région sans bloquer la fonction de l’agent. Une activité neutralisante doit être démontrée par un test adapté.
Correction 4. L’interaction CD40 sur le B avec CD40L sur le T, accompagnée d’autres signaux et cytokines.
Correction 5. Non. Les B mémoire et plasmocytes persistants sont des compartiments distincts. La réponse de rappel peut subsister malgré une diminution des anticorps circulants.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Recoupements de l’approfondissement v0.4
Consultation ciblée le 2 octobre 2026 ; rédaction et exercices originaux. Ces ressources ne certifient pas une exigibilité locale.
Partie 4 · Tolérance, hypersensibilités et immunodéficiences
Prérequis et objectifs
Prérequis : activation B/T, anticorps et inflammation.
À la fin de ce cours : expliquer les contrôles du soi ; comparer les hypersensibilités ; relier un déficit à une fonction immunitaire.
Tolérance : des contrôles successifs
La diversité des récepteurs crée inévitablement des cellules capables de reconnaître des constituants du soi. La tolérance centrale intervient pendant la maturation : dans le thymus pour les T et principalement dans la moelle pour les B. Des cellules peuvent être éliminées, modifier leur récepteur dans le cas B ou acquérir un devenir régulateur selon le contexte.
La sélection positive thymique conserve des cellules capables de reconnaître suffisamment le CMH ; la sélection négative limite des réactivités excessives contre le soi présenté. Ces deux critères ne sont pas identiques. L’exposition de nombreux antigènes tissulaires dans le thymus implique des programmes spécialisés, dont AIRE pour une partie d’entre eux.
La tolérance périphérique comprend absence de costimulation, anergie, suppression régulatrice et élimination. Les T régulateurs contribuent par plusieurs mécanismes de contact et cytokines. Aucun filtre n’est absolument complet ; l’absence de maladie auto-immune dépend d’un équilibre entre clones, activation, tissus et régulation.
Auto-immunité et inflammation
Une réponse autoréactive peut être détectée sans provoquer de maladie. La maladie auto-immune implique des dommages liés à des réponses contre le soi. L’allergie correspond à une réaction dommageable contre des antigènes souvent inoffensifs de l’environnement. Les maladies auto-inflammatoires mettent surtout en jeu des dérèglements de l’immunité innée. Ces catégories peuvent présenter des recouvrements mais ne sont pas synonymes.
Une susceptibilité génétique n’est pas un destin certain. Déclencheurs, barrières, infections et état tissulaire influencent l’expression. Une association avec un allèle HLA ne signifie pas que cet allèle explique seul chaque cas.
Hypersensibilité de type I
Le modèle classique comporte une sensibilisation avec production d’IgE qui se fixent sur des récepteurs de haute affinité des mastocytes et basophiles. Lors d’une nouvelle rencontre, un antigène peut ponter les IgE fixées et déclencher la libération de médiateurs. Une phase immédiate est suivie, selon le contexte, d’une phase plus tardive avec recrutement cellulaire.
Histamine, médiateurs lipidiques et cytokines ont des effets différents sur vaisseaux, muscles et glandes. Toutes les manifestations ne sont donc pas réductibles à une seule molécule. La présence d’IgE spécifiques indique une sensibilisation, qui n’est pas toujours équivalente à une allergie cliniquement exprimée.
Types II et III
Le type II implique des anticorps dirigés contre des antigènes cellulaires ou de matrice. Ils peuvent provoquer complément, recrutement ou phagocytose, mais aussi modifier la fonction d’un récepteur sans détruire la cellule. Le qualificatif « cytotoxique » utilisé historiquement est donc trop étroit pour tous les exemples.
Le type III implique des complexes immuns formés avec des antigènes solubles, puis déposés ou insuffisamment éliminés dans certains tissus. Leur localisation, taille et capacité à activer le complément influencent les lésions. La simple formation d’un complexe antigène-anticorps est normale ; c’est son contexte et son devenir qui peuvent être pathogènes.
Type IV
Le type IV repose sur des mécanismes à médiation T, avec activation de macrophages ou cytotoxicité selon le contexte. Il est souvent retardé par rapport aux réactions immédiates à IgE, mais sa cinétique exacte dépend de l’exposition et de la mémoire. Une dermatite de contact constitue un exemple pédagogique de réponse T à des antigènes créés ou modifiés localement.
| Type | Acteur dominant du modèle | Mécanisme |
|---|---|---|
| I | IgE et mastocytes | Libération de médiateurs après pontage |
| II | Anticorps contre cibles fixées | Destruction ou modification de fonction |
| III | Complexes immuns | Dépôts et inflammation |
| IV | Lymphocytes T | Activation cellulaire et cytotoxicité |
Cette classification est un outil mécanistique. Une maladie peut associer plusieurs types, et un nom clinique ne se range pas toujours dans une seule case.
Immunodéficiences
Une immunodéficience correspond à l’insuffisance d’une ou plusieurs fonctions. Elle peut être constitutionnelle ou acquise. Les déficits humoraux affectent notamment la défense contre certains agents extracellulaires ; les déficits T peuvent altérer contrôle intracellulaire et aide aux B ; les défauts phagocytaires et du complément ont d’autres profils. Ces associations orientent un raisonnement sans constituer une règle diagnostique exclusive.
Un déficit de nombre et un déficit de fonction diffèrent. Une numération normale ne prouve pas que les cellules phagocytent, produisent des anticorps efficaces ou se déplacent correctement. Inversement, une baisse modérée d’une population ne prédit pas à elle seule toutes les conséquences si des fonctions se compensent.
Les déficits combinés illustrent l’interdépendance : perdre l’aide T affecte certaines réponses B même si des cellules B sont présentes. Une atteinte de barrière peut augmenter les infections malgré des fonctions immunitaires intrinsèques relativement conservées. L’immunité ne réside donc pas uniquement dans la quantité de leucocytes sanguins.
Transplantation et reconnaissance
Une greffe apporte des antigènes et des molécules HLA différents. Les réponses alloréactives peuvent impliquer T et anticorps selon la situation et le délai. Compatibilité, mémoire préalable et inflammation influencent l’issue. Les principes expliquent pourquoi une réponse immunitaire normale contre le non-soi peut devenir un obstacle thérapeutique, sans fournir ici un protocole de traitement.
- Cible reconnue
- Acteur effecteur
- Lieu de la réaction
- Cinétique
- Défaut de régulation
Repères complémentaires, sans ordre ni lien de cause.
Limite du schéma : les catégories sont à combiner ; une réaction forte n’est pas automatiquement une allergie et une réaction faible n’est pas automatiquement protectrice.
Trois devenirs thymiques à distinguer
Classement. Dans le modèle pédagogique, un thymocyte reconnaît trop peu les complexes du soi présentés ; un deuxième reçoit un signal permettant sa survie ; un troisième réagit très fortement à un antigène du soi. Associer ces profils aux mécanismes de sélection.
Correction. Le premier peut mourir par défaut de signaux de survie, ou mort par négligence. Le deuxième peut être sélectionné positivement. Le troisième peut être éliminé par sélection négative ou orienté vers certains devenirs régulateurs selon les conditions. La sélection positive conserve donc une compétence de reconnaissance du CMH du soi ; elle ne signifie pas sélection des clones les plus autoréactifs. Ce modèle de seuils aide à raisonner mais simplifie des signaux dépendant du stade, des cellules présentatrices et de la durée d'interaction.
Exercices progressifs
Exercice 1. Quel devenir attend un thymocyte qui ne reçoit pas de signal de survie par reconnaissance adéquate du CMH du soi ? Distinguer ce devenir de la sélection négative.
Exercice 2. Une IgE spécifique positive suffit-elle à prouver des symptômes allergiques ?
Exercice 3. Le type II détruit-il obligatoirement la cellule ?
Exercice 4. Quel type repose principalement sur les T ?
Exercice 5. Une numération leucocytaire normale exclut-elle une immunodéficience fonctionnelle ?
Corrections argumentées
Correction 1. Il peut mourir par négligence, faute de signaux de survie. La sélection positive conserve les thymocytes recevant une reconnaissance adéquate du CMH du soi ; elle ne doit pas être décrite comme une sélection négative supplémentaire. La sélection négative élimine notamment des cellules dont la réactivité contre le soi est trop forte dans le contexte de présentation.
Correction 2. Non. Elle indique une sensibilisation dans les limites du test. La maladie exige une relation avec les manifestations et l’exposition.
Correction 3. Non. Des anticorps peuvent stimuler ou bloquer un récepteur et modifier la fonction sans lyse cellulaire.
Correction 4. Le type IV, avec plusieurs modalités effectrices cellulaires.
Correction 5. Non. Adhérence, migration, destruction intracellulaire ou production d’anticorps peuvent être déficientes malgré un nombre global conservé.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 5 · Mémoire immunitaire, vaccination et immunité des muqueuses
Prérequis et objectifs
Prérequis : sélection clonale, anticorps et présentation antigénique.
À la fin de ce cours : distinguer mémoire et protection immédiate ; comparer les principes vaccinaux ; expliquer les défenses muqueuses.
Réponse primaire et rappel
Lors d’une première rencontre, les clones adaptés doivent être activés, proliférer et se différencier. Cette phase demande du temps. Après contraction de la réponse, certaines cellules mémoire persistent et des plasmocytes à longue vie peuvent maintenir des anticorps. Une nouvelle exposition rencontre donc un système différent de l’état naïf.
La réponse secondaire est souvent plus rapide et plus efficace, avec des anticorps de meilleure affinité et des effecteurs mieux préparés. L’ampleur dépend toutefois de l’antigène, du temps écoulé, du site et de l’état de l’hôte. La mémoire ne garantit pas une immunité stérilisante empêchant toute entrée ou réplication ; elle peut surtout réduire la maladie ou sa gravité.
Les cellules mémoire centrales circulent notamment entre organes lymphoïdes ; d’autres sont plus orientées vers les tissus ou y résident. Une mémoire tissulaire peut intervenir rapidement au point d’entrée. Mesurer uniquement le sang ne révèle donc pas tous les compartiments de protection.
Vaccination active et protection passive
La vaccination expose à un antigène ou à une information permettant sa production dans un contexte qui prépare une réponse. Elle vise une immunité active avec apprentissage par le système de l’hôte. L’administration d’anticorps fournit une protection passive, souvent plus immédiate mais limitée par leur durée de vie et sans créer automatiquement la même mémoire.
La protection passive maternelle inclut le passage placentaire d’IgG et des défenses muqueuses apportées notamment par les IgA du lait. Les voies, lieux d’action et durées diffèrent. Les IgA ingérées ne sont pas simplement distribuées dans tout le sang du nourrisson comme les IgG placentaires.
Principes des plateformes
Les vaccins vivants atténués présentent un agent capable d’une réplication limitée dans des conditions appropriées. Les inactivés présentent un agent rendu non réplicatif. Les sous-unitaires apportent des composants sélectionnés ; les anatoxines ciblent une toxine inactivée. Les vecteurs et les acides nucléiques fournissent des moyens de production de l’antigène par des cellules de l’hôte.
Ces catégories ont des profils immunologiques différents. La présence intracellulaire d’un antigène peut favoriser certaines présentations, tandis qu’un antigène soluble sollicite d’autres voies. Les adjuvants et formulations modulent capture, persistance et signaux innés. Il ne suffit pas de comparer une masse d’antigène pour prédire toute la qualité de réponse.
Un vaccin conjugué lie un antigène polysaccharidique à une protéine porteuse. Un B reconnaissant le polysaccharide capte l’ensemble puis présente des peptides de la protéine aux T auxiliaires. Cette coopération améliore certaines propriétés de réponse et de mémoire. Le T n’a pas besoin de reconnaître directement le polysaccharide par son TCR conventionnel.
| Principe | Information apportée au système |
|---|---|
| Anatoxine | Cible de neutralisation d’une toxine |
| Sous-unité | Antigène sélectionné |
| Conjugué | Antigène B relié à une aide T peptidique |
| Vecteur ou acide nucléique | Instructions ou véhicule de production antigénique |
| Anticorps administré | Effecteur déjà fabriqué, protection passive |
Adjuvant, rappel et corrélat
Un adjuvant active ou module des voies innées et améliore la présentation ou la durée de disponibilité selon sa formulation. Il n’est pas simplement un produit qui irrite sans spécificité utile. L’antigène détermine les clones reconnus ; le contexte inné influence leur activation et leur différenciation.
Un rappel peut réactiver des cellules mémoire, augmenter les anticorps et poursuivre la sélection. Son intérêt dépend du déclin de protection, de la nature de l’agent et des objectifs. Ce cours n’établit aucun calendrier vaccinal : les recommandations relèvent de sources actualisées propres au pays et au public.
Un corrélat de protection est une mesure associée statistiquement ou mécanistiquement à la protection, par exemple un titre fonctionnel dans un contexte validé. Il n’est pas nécessairement l’unique cause de protection ni une règle transférable à tous les vaccins. Un dosage de liaison choisi arbitrairement ne devient pas automatiquement un seuil universel d’immunité.
Immunité des muqueuses
Les muqueuses doivent défendre contre des agents tout en tolérant nutriments et microbiote. Mucus, jonctions, renouvellement, peptides antimicrobiens et cellules immunitaires coopèrent. Des tissus lymphoïdes organisés, dont les plaques de Peyer, participent à l’échantillonnage et aux réponses. Les cellules M facilitent le passage contrôlé de matériel vers des cellules immunitaires sous-jacentes.
L’IgA dimérique produite dans le tissu peut être transportée à travers l’épithélium par le récepteur des immunoglobulines polymériques. Une composante sécrétoire reste associée et participe à sa protection. L’IgA limite notamment l’adhérence et la pénétration des agents, souvent avec moins d’inflammation qu’une activation systémique massive.
La tolérance orale et les T régulateurs illustrent l’importance du contexte d’exposition. Avaler un antigène ne provoque pas nécessairement la même réponse que le rencontrer avec des signaux de danger dans un tissu lésé. Les voies d’administration influencent donc localisation et nature de la mémoire.
Protection individuelle et collective
Une diminution de susceptibilité ou de transmission dans une population peut réduire l’exposition des autres. L’ampleur dépend de la transmissibilité, de l’efficacité contre l’infection et la transmission, de la durée et des contacts. Un vaccin réduisant fortement les formes graves peut avoir un effet différent sur la transmission. Ces objectifs doivent être distingués pour interpréter une étude.
- Antigène et contexte
- Activation clonale
- Effecteurs
- Contraction
- Mémoire et anticorps persistants
Schéma de principe : lire les conditions et les limites dans le texte.
Limite du schéma : la protection n’est pas identique à chaque étape ni à chaque site ; elle peut diminuer ou être contournée par variation antigénique.
Pourquoi le T aide un B dirigé contre un polysaccharide
Mécanisme. Un lymphocyte B reconnaît le polysaccharide d'un conjugué par son BCR et internalise l'ensemble lié à la protéine porteuse. Il dégrade la partie protéique et présente des peptides sur CMH II. Un T auxiliaire reconnaissant un de ces peptides peut fournir une aide au B.
Question. Le T doit-il reconnaître le polysaccharide initial pour aider le B ? Correction. Non : la reconnaissance liée associe deux cibles différentes appartenant au même ensemble capté. Le BCR reconnaît une structure native ; le TCR conventionnel reconnaît un peptide présenté. Cette coopération favorise les réponses dépendantes des T et la mémoire. Mélanger simplement deux antigènes sans liaison fonctionnelle ne garantit pas le même mécanisme de capture et de présentation.
Exercices progressifs
Exercice 1. Une mémoire immunitaire empêche-t-elle toujours toute infection ?
Exercice 2. Comparer anticorps administrés et vaccination.
Exercice 3. Pourquoi conjuguer un polysaccharide à une protéine ?
Exercice 4. Quel récepteur transporte l’IgA polymérique à travers l’épithélium ?
Exercice 5. Un titre de liaison est-il toujours un corrélat validé de protection ?
Corrections argumentées
Correction 1. Non. Elle peut accélérer le contrôle et réduire la maladie sans empêcher toute réplication initiale.
Correction 2. Les anticorps fournissent directement un effecteur, généralement transitoire ; la vaccination stimule une réponse active et peut établir une mémoire.
Correction 3. Pour permettre à un B spécifique du polysaccharide de capter la protéine associée et présenter ses peptides à des T auxiliaires, améliorant l’aide et certaines réponses mémoire.
Correction 4. Le récepteur des immunoglobulines polymériques, pIgR, dont une composante reste associée à l’IgA sécrétoire.
Correction 5. Non. La relation doit être démontrée pour l’agent, le test et le contexte. Liaison, neutralisation et protection clinique ne sont pas des synonymes.
Références et portée
Rédaction pédagogique originale. Les ressources suivantes servent au recoupement ciblé et à l’approfondissement ; elles ne certifient pas l’exigibilité locale. Consultation documentaire : 1 octobre 2026.
Partie 6 · Hémostase : plaquettes, coagulation, freins et fibrinolyse
Objectifs et équilibre local
L'hémostase maintient le sang dans le compartiment vasculaire et limite sa perte lors d'une brèche. Elle doit produire une obturation suffisante, localisée et réversible au cours de la réparation. Une activation sans contrôle peut obstruer le vaisseau ; une réponse insuffisante ne ferme pas correctement la brèche. L'objectif n'est donc pas de rendre le sang partout coagulable au maximum, mais de coordonner surfaces, cellules, enzymes et inhibiteurs.
L'hémostase primaire, la coagulation et la fibrinolyse sont distinguées pour l'étude. Elles se chevauchent et interagissent dans le temps : le clou plaquettaire n'attend pas d'être parfaitement terminé avant toute génération de thrombine. Le sang décrit en 07-01, partie 5 fournit les composants, mais leur nombre et leur présence ne suffisent pas à prédire la fonction. On apprendra à séparer adhésion, activation et agrégation, puis fibrinogène, fibrine et produits de dégradation.
Paroi vasculaire : une surface active
L'endothélium intact participe au maintien d'un état peu adhésif et à la régulation de l'activation. Les médiateurs qu'il produit, ses protéines de surface et les conditions de flux influencent les plaquettes et la coagulation. La paroi n'est donc pas un simple tube dont seule la rupture aurait un effet passif. Les modifications fonctionnelles de l'endothélium peuvent changer le comportement du sang même sans large déchirure macroscopique.
Une brèche expose des composants sous-endothéliaux auxquels les plaquettes peuvent adhérer. La vasoconstriction locale peut limiter momentanément le débit et favoriser les interactions. Le facteur von Willebrand participe aux relations entre surfaces et plaquettes, particulièrement lorsque les contraintes de cisaillement sont importantes. Le débit, la géométrie et la nature de la surface conditionnent ainsi les rencontres moléculaires.
Le facteur tissulaire est un initiateur majeur de la coagulation physiologique lorsqu'il devient accessible au sang dans les conditions appropriées. L'activation sur une surface ne signifie pas que tous les facteurs doivent d'abord être libérés sous forme active dans tout le plasma. La localisation membranaire des complexes est un élément essentiel du contrôle spatial.
Plaquettes : fragments cellulaires organisés
Les plaquettes sont issues des mégacaryocytes et ne possèdent pas de noyau. Elles disposent néanmoins de membranes, d'organites, de granules, de récepteurs et d'un cytosquelette capable de se réorganiser. Anucléé ne signifie donc pas inerte. Leur changement de forme, leur sécrétion et leurs interactions mécaniques participent à la construction du clou.
L'adhésion ancre les plaquettes à une surface. L'activation modifie leur état, libère des médiateurs et rend certains récepteurs compétents pour de nouvelles interactions. L'agrégation associe des plaquettes entre elles. Ces trois termes décrivent des relations distinctes ; un déficit d'une étape n'est pas nécessairement un déficit quantitatif en plaquettes.
- Adhésion : ancrage à une surface
- Activation : changement d'état et libération de médiateurs
- Agrégation : association des plaquettes entre elles
Repères complémentaires, sans ordre ni lien de cause.
Le complexe GPIb-IX-V intervient notamment dans l'interaction avec le facteur von Willebrand. L'intégrine alphaIIb bêta3, également appelée GPIIb/IIIa, permet notamment des pontages par le fibrinogène lorsqu'elle est activée. La présence du ligand dans le plasma ne suffit pas si le récepteur n'est pas fonctionnel ou dans l'état approprié. D'autres récepteurs et interactions contribuent à l'adhésion au collagène et à l'activation.
Amplification et surface procoagulante
L'ADP libéré et le thromboxane A2 produit par les plaquettes contribuent au recrutement et à l'amplification. La thrombine est également un activateur puissant. Les signaux convergent vers des changements de calcium intracellulaire, de forme et d'adhésivité. Une boucle amplificatrice peut ainsi accélérer la réponse à proximité de la brèche, à condition que des freins limitent son extension.
L'exposition de phospholipides anioniques, notamment de phosphatidylsérine, fournit une surface favorable à l'assemblage de complexes enzymatiques de coagulation. Des facteurs qui réagissent peu efficacement en solution peuvent agir bien plus efficacement lorsqu'ils sont rapprochés sur une membrane avec leurs cofacteurs et du calcium. Le nombre de plaquettes et la qualité de leur surface sont donc deux paramètres différents.
Le cytosquelette plaquettaire participe aussi à la rétraction et à la consolidation mécanique du réseau. Le caillot est un objet composite qui associe cellules et fibrine. Son comportement ne se déduit pas d'une simple concentration d'une protéine ; architecture, pontages, forces et environnement influencent sa stabilité.
Coagulation : enzymes, cofacteurs et complexes
De nombreux facteurs circulent sous forme de précurseurs inactifs. Une activation protéolytique leur permet de participer à la cascade ; d'autres facteurs agissent surtout comme cofacteurs. Le calcium et les surfaces membranaires facilitent l'assemblage de certains complexes. Il faut donc distinguer enzyme, substrat et cofacteur au lieu de traiter chaque numéro romain comme une enzyme interchangeable.
Le complexe facteur tissulaire-VIIa contribue à initier l'activation. Les complexes impliquant IXa-VIIIa et Xa-Va amplifient ensuite la génération de Xa et de thrombine selon l'étape considérée. La thrombine correspond au facteur IIa, produit à partir de la prothrombine. Le facteur V n'est pas lui-même la protéase qui transforme la prothrombine : il participe comme cofacteur au complexe prothrombinase.
La thrombine coupe le fibrinogène soluble pour permettre l'assemblage de fibrine. Le facteur XIII activé stabilise le réseau par des liaisons covalentes. Produire des monomères qui s'assemblent et réticuler durablement leur réseau sont deux étapes différentes. Une mesure arrêtée au premier caillot visible ne renseigne donc pas sur tous les aspects de sa résistance ultérieure.
- Complexe facteur tissulaire-VIIa initie l'activation
- Complexes IXa-VIIIa et Xa-Va amplifient la génération de thrombine
- Thrombine produite à partir de la prothrombine
- Thrombine coupe le fibrinogène soluble
- Assemblage de fibrine
- Facteur XIII activé stabilise le réseau
Schéma de principe : lire les conditions et les limites dans le texte.
Pourquoi deux voies de laboratoire ne sont pas deux circuits isolés in vivo
Les schémas classiques distinguent voie extrinsèque, voie intrinsèque et voie commune. Ils restent utiles pour organiser les facteurs et comprendre des tests plasmatiques. Mais dans l'organisme, surfaces cellulaires, initiation, amplification et propagation sont intégrées. Il ne faut pas imaginer deux tuyaux indépendants qui ne communiquent qu'à leur extrémité.
L'activation de contact, utilisée dans certains tests, met particulièrement en jeu le facteur XII. Un déficit en XII peut prolonger un test sans produire le profil hémorragique attendu d'un déficit de facteurs indispensables à l'hémostase usuelle. Cet exemple montre qu'une réaction essentielle au montage analytique peut ne pas avoir le même rôle limitant dans la fermeture physiologique d'une brèche.
Le modèle doit donc être annoncé : « voie explorée par ce test » n'est pas identique à « unique mécanisme de déclenchement dans le corps ». Les résultats dépendent des réactifs, du prélèvement et de ce que le test mesure. Une valeur isolée ne suffit pas à reconstruire toutes les interactions entre plaquettes, paroi et plasma.
Freins et dépendance à la vitamine K
L'antithrombine inhibe notamment des protéases de coagulation. Le système protéine C-protéine S participe à l'inactivation de cofacteurs, notamment Va et VIIIa, dans des conditions régulées. Le TFPI limite certaines étapes liées au facteur tissulaire. Ces mécanismes ne dissolvent pas tous directement la fibrine : inhiber la génération future et dégrader un réseau déjà constitué sont deux opérations distinctes.
La vitamine K participe à une modification post-traductionnelle de plusieurs protéines, dont les facteurs II, VII, IX et X, ainsi que les protéines C et S. Cette modification favorise leurs interactions dépendantes du calcium avec les surfaces. La vitamine n'est ni la fibrine ni une enzyme qui transforme immédiatement le fibrinogène dans le plasma. Son rôle concerne la production de protéines fonctionnellement compétentes.
Les freins sont nécessaires pour que la réaction reste localisée. Un système entièrement privé d'inhibition ne serait pas simplement « plus efficace » : il pourrait consommer des composants et compromettre la circulation. L'équilibre résulte de flux d'activation et d'inactivation, pas d'une quantité fixe d'un unique facteur.
Fibrinolyse : organiser la disparition du réseau
Le plasminogène est un précurseur qui peut être activé en plasmine, notamment par l'activateur tissulaire du plasminogène. La plasmine dégrade la fibrine. Des inhibiteurs limitent l'activation et l'activité protéolytique, de sorte que la dégradation ne doit pas s'étendre sans contrôle à toutes les protéines plasmatiques. La proximité du réseau de fibrine contribue à localiser les réactions.
Les D-dimères proviennent de la dégradation de fibrine réticulée. Leur présence n'est donc pas équivalente à une mesure directe de la quantité totale de fibrinogène, ni à une preuve de localisation d'un caillot dans un organe donné. Un marqueur de turnover peut augmenter dans plusieurs contextes. On ne déduit pas un diagnostic individuel de son seul principe biochimique.
- Plasminogène, précurseur
- Activation en plasmine par l'activateur tissulaire du plasminogène
- Plasmine dégrade la fibrine
- D-dimères issus de la fibrine réticulée
Schéma de principe : lire les conditions et les limites dans le texte.
La réparation vasculaire et la disparition du caillot doivent être coordonnées. Une fibrinolyse trop précoce pourrait retirer un support encore utile ; une persistance excessive pourrait gêner le flux. L'hémostase est ainsi un processus dynamique où le meilleur état change avec l'avancement de la réparation.
Plasma, sérum et limites des explorations
Le plasma est obtenu à partir d'un prélèvement dont la coagulation a été empêchée ; il conserve notamment le fibrinogène. Le sérum est obtenu après coagulation et séparation du caillot ; sa composition a donc été modifiée par les réactions et les libérations cellulaires. Il ne s'agit pas simplement du plasma auquel on aurait retiré les globules rouges.
Les tests de coagulation usuels sont souvent réalisés sur plasma citraté puis recalcifié. Le citrate rend le calcium indisponible dans le tube ; la recalcification permet de déclencher une réaction standardisée avec les réactifs choisis. Un rapport sang/citrate inadapté peut modifier le résultat. L'étape préanalytique fait donc partie de l'expérience, et non d'un détail extérieur à la physiologie mesurée.
Numération plaquettaire, temps de coagulation et exploration de la fonction plaquettaire répondent à des questions différentes. Un nombre normal de plaquettes ne prouve pas une agrégation normale ; un temps plasmatique normal ne démontre pas l'intégrité de toute l'hémostase. L'exercice fondamental consiste à nommer ce qui est observé et ce qui reste non testé.
Relier le test à son montage
Le temps de Quick, dont dérive l'expression française en taux de prothrombine (TP), utilise un réactif apportant facteur tissulaire et phospholipides avec recalcification. Il explore principalement VII et la voie commune : X, V, II et fibrinogène. Le TP n'est donc pas un dosage isolé de la prothrombine malgré son nom ; temps mesuré et pourcentage calculé sont deux expressions à distinguer.
Le temps de céphaline avec activateur (TCA) utilise phospholipides, activateur de contact et calcium. Il dépend notamment de XII, XI, IX, VIII et de la voie commune. Cela explique qu'un déficit en XII puisse allonger ce test sans reproduire le risque hémorragique d'autres déficits. Les tests explorent des montages, pas deux circulations indépendantes dans l'organisme.
Le temps de thrombine (TT) apporte directement de la thrombine et examine la phase de conversion du fibrinogène en fibrine dans ces conditions. Il court-circuite les étapes de génération de thrombine. Les temps usuels d'apparition du caillot n'explorent pas correctement la stabilisation par XIII : leur normalité ne prouve pas une réticulation normale. Ils ne résument pas non plus la fonction plaquettaire. Aucun seuil ou algorithme clinique n'est déduit ici.
Question de montage. Pourquoi une altération isolée de VII peut-elle affecter le temps de Quick sans affecter le TT par le même mécanisme ? Réponse. Le premier utilise la voie initiée par le facteur tissulaire-VII, tandis que le second apporte directement l'enzyme finale. Le contournement expérimental localise la dépendance du test ; il ne suffit pas à établir une cause clinique individuelle.
Exercices discriminants
Exercice 1. Classer : liaison à la paroi, changement d'état cellulaire, pont entre deux plaquettes.
Exercice 2. Une numération normale garantit-elle la formation d'un clou efficace ?
Exercice 3. Associer fibrinogène, thrombine et XIIIa à trois étapes différentes.
Exercice 4. Pourquoi le calcium et la membrane plaquettaire ne sont-ils pas des accessoires facultatifs de la cascade ?
Exercice 5. Un allongement marqué d'un test dépendant de XII implique-t-il obligatoirement une tendance hémorragique de même intensité ?
Exercice 6. Opposer antithrombine et plasmine par leur cible fonctionnelle principale.
Exercice 7. Une augmentation de D-dimères localise-t-elle un caillot ?
Exercice 8. Pourquoi le sérum et le plasma citraté ne sont-ils pas interchangeables pour toutes les mesures ?
Corrections développées
Correction 1. Il s'agit respectivement d'adhésion, d'activation et d'agrégation. Les phénomènes interagissent mais ne portent pas sur les mêmes partenaires. Leur séparation permet d'expliquer qu'une plaquette puisse être présente et adhérer tout en étant incapable de former des ponts efficaces.
Correction 2. Non. Les récepteurs, la sécrétion et la surface procoagulante peuvent être altérés malgré un nombre conservé. Une mesure quantitative de population ne remplace pas une mesure de fonction ; la paroi et les protéines plasmatiques interviennent également.
Correction 3. Le fibrinogène est le substrat soluble ; la thrombine le clive pour permettre la formation de fibrine ; XIIIa réticule le réseau. La première apparition de fibrine et sa stabilisation sont donc distinctes. La thrombine possède aussi des fonctions d'amplification au-delà de ce seul clivage.
Correction 4. Ils permettent le rapprochement et l'orientation de complexes réactionnels. Les réactions ne sont pas simplement une suite de collisions libres de même efficacité en tout point du plasma. Le support cellulaire contribue à la vitesse et à la localisation.
Correction 5. Non. Le facteur XII illustre la différence entre activation de contact dans le montage analytique et mécanismes dominants de l'hémostase physiologique. Le résultat décrit une propriété du test ; son interprétation exige de connaître sa construction et les autres données.
Correction 6. L'antithrombine limite l'activité de certaines protéases génératrices du caillot ; la plasmine dégrade la fibrine déjà formée. Freiner la production et détruire le produit sont deux mécanismes complémentaires, mais pas synonymes.
Correction 7. Non. Elle renseigne sur un produit de dégradation de fibrine réticulée, sans désigner un site. Plusieurs processus peuvent modifier sa concentration, qui dépend aussi de la production et de l'élimination. Aucun diagnostic topographique ne découle de ce marqueur seul.
Correction 8. Le sérum a subi la coagulation, avec consommation ou modification de composants et libérations cellulaires. Le plasma citraté conserve des facteurs dans des conditions où le calcium a été complexé. Ces préparations n'ont ni la même histoire ni la même composition fonctionnelle.
Sources et limites documentaires
- Société française de thrombose et d'hémostase : Les maladies de l'hémostase, rappels de mécanismes
- Société française d'hématologie : Support de physiologie de l'hémostase
- American Society of Hematology : Tests of Hemostasis and Thrombosis, learning objectives
- OpenStax : Hemostasis
Consultation le 2 octobre 2026. Les sources spécialisées servent à vérifier les distinctions mécanistiques ; leurs objectifs de formation avancée ne sont pas attribués au PASS. Les doses, indications de traitement et conduites de prise en charge sont hors de ce cours.
Ce cours, en cartes de révision
Ce cours est déjà transformé en 332 cartes, chacune sourcée à sa page. Tu l’ajoutes gratuitement à tes cours depuis la bibliothèque de l’app, et Ossik te ressort ses cartes au bon moment.