Ce cours réunit 5 parties : 1. Génome, chromosomes et chromatine ; 2. Réplication, dommages et réparation de l’ADN ; 3. Transcription et maturation des ARN ; 4. Traduction, adressage et contrôle des protéines ; 5. Régulation de l’expression : éléments cis, facteurs trans et raisonnement expérimental.
Partie 1 · Génome, chromosomes et chromatine
Prérequis et objectifs
Connaître nucléotides et liaisons phosphodiester. Le cours organise les niveaux ADN, gène, chromatine et chromosome, puis clarifie les comptages pendant le cycle cellulaire. Le nombre de chromosomes, le nombre de chromatides et la quantité d’ADN ne varient pas toujours ensemble.
1. ADN et information
L’ADN comporte deux brins antiparallèles. Les appariements A-T et G-C contribuent à la complémentarité ; l’empilement des bases participe aussi à la stabilité. Les liaisons hydrogène entre bases ne sont pas les liaisons covalentes qui construisent chaque brin.
Un brin possède une orientation 5′ vers 3′. Le complément d’une séquence doit être écrit avec son orientation. Pour 5′-ATGC-3′, le brin apparié est 3′-TACG-5′ ; réécrit 5′ vers 3′, il devient 5′-GCAT-3′. Confondre complément et complément inverse produit des erreurs en transcription et en PCR.
La séquence porte des informations codantes et régulatrices. Toutes les régions transcrites ne codent pas une protéine, et toutes les séquences fonctionnelles ne sont pas dans un exon codant.
2. Gène, locus et allèle
Un locus est une position ou région génomique définie. Un allèle est une version de séquence à un locus. Deux chromosomes homologues portent les mêmes grandes catégories de loci, mais peuvent porter des allèles différents.
Un gène peut produire un ARN fonctionnel ou participer à la production d’une protéine via un ARN messager. Promoteurs, régions transcrites, introns, exons et éléments régulateurs ne se superposent pas toujours à une définition simplifiée en un seul segment continu.
Un exon est conservé dans un ARN mature donné ; il n’est pas nécessairement entièrement traduit. Les régions non traduites 5′ et 3′ font partie de certains exons. L’épissage alternatif peut modifier la composition en exons selon le transcrit.
3. Chromatine et nucléosome
L’ADN nucléaire s’associe à des histones et à d’autres protéines. Le nucléosome organise l’ADN autour d’un cœur d’histones ; les régions de liaison et les interactions entre nucléosomes contribuent à des niveaux d’organisation supplémentaires.
La chromatine est dynamique. Des complexes de remodelage déplacent ou modifient l’accessibilité des nucléosomes. Des modifications d’histones recrutent des partenaires ou changent les interactions ; elles n’ont pas toutes un effet identique.
L’euchromatine est souvent relativement accessible et l’hétérochromatine plus compacte, mais ces catégories ne doivent pas être transformées en équation absolue « clair = tous les gènes actifs ». La régulation dépend de nombreux facteurs et peut être locale.
4. Ploïdie et contenu en ADN
La ploïdie compte les jeux de chromosomes homologues. Une cellule somatique humaine diploïde de référence possède 2n = 46 chromosomes. Le contenu C décrit la quantité d’ADN d’un génome haploïde non répliqué.
En G1, une cellule diploïde de référence est 2n, 2C et chaque chromosome comporte une chromatide. Après la phase S, elle est 2n, 4C : le nombre de chromosomes reste 46, mais chacun comprend deux chromatides sœurs.
Lors de leur séparation en anaphase, les chromatides deviennent des chromosomes distincts selon la convention de comptage par unités centromériques. Il faut préciser si l’on compte dans la cellule entière avant cytocinèse ou dans chaque futur noyau.
| État de référence | Ploïdie | ADN | Chromatides par chromosome |
|---|---|---|---|
| G1 somatique | 2n | 2C | 1 |
| G2 somatique | 2n | 4C | 2 |
| Après méiose I | n | 2C | 2 |
| Après méiose II | n | 1C | 1 |
La réplication double l’ADN sans doubler la ploïdie. La première division méiotique réduit la ploïdie sans séparer les chromatides sœurs dans le schéma classique.
5. Génome mitochondrial et hétéroplasmie
Les mitochondries possèdent un génome distinct du génome nucléaire. Une cellule contient plusieurs copies d’ADN mitochondrial, avec des variations de nombre selon le tissu et l’état cellulaire.
L’hétéroplasmie désigne la coexistence de séquences mitochondriales différentes. Leur proportion peut varier entre cellules et tissus, ce qui complique la relation entre une mesure sur un prélèvement et le fonctionnement de tout l’organisme.
La transmission mitochondriale humaine est principalement maternelle dans le modèle classique. Cela ne signifie pas que toutes les maladies liées à la mitochondrie suivent cette transmission : beaucoup de protéines mitochondriales sont codées par des gènes nucléaires.
6. Épigénétique et expression
Des états de chromatine ou de méthylation peuvent moduler l’expression sans changer la séquence nucléotidique. Leur maintien au cours de divisions et leur réversibilité dépendent du mécanisme étudié.
La méthylation de promoteurs dans certains contextes peut être associée à une répression, mais « toute méthylation éteint tout gène » est faux. La position et la nature de la marque importent.
L’empreinte parentale et l’inactivation du chromosome X illustrent des régulations où origine parentale et chromosome influencent l’expression. Elles ne modifient pas nécessairement la présence physique des allèles.
- Lire la séquence orientée
- Identifier locus et allèles
- Emballer en chromatine
- Répliquer les chromatides
- Répartir les chromosomes
Repères complémentaires, sans ordre ni lien de cause.
Le schéma relie des niveaux d’organisation sans les confondre : un changement d’accessibilité n’est pas forcément un changement de séquence.
Développement : compter, cartographier et distinguer les niveaux
Chromosome et molécule d’ADN
Avant réplication, un chromosome comporte une molécule d’ADN double brin associée à des protéines. Après réplication, les deux chromatides sœurs correspondent chacune à une molécule double brin. Elles restent associées jusqu’à leur séparation.
Une cellule humaine de référence en G2 contient donc 46 chromosomes et 92 chromatides, soit 92 molécules d’ADN double brin nucléaire dans ce comptage. Elle ne contient pas 92 paires de chromosomes homologues.
Le nombre de brins simples est encore une autre grandeur : chaque molécule double brin possède deux brins. Une question demandant « molécules d’ADN » doit être lue selon la convention explicite, sans remplacer spontanément une molécule double brin par chacun de ses brins.
Centromère et télomère
Le centromère organise l’assemblage du kinétochore, interface de ségrégation avec le fuseau. Il n’est pas nécessairement au milieu exact du chromosome. Les bras court p et long q sont définis par sa position.
Les télomères se trouvent aux extrémités des chromosomes linéaires. Ils protègent ces extrémités et participent à la gestion de leur réplication. Centromère et télomère répondent donc à des problèmes différents : séparer correctement et protéger les bouts.
Un chromosome circulaire ne possède pas les mêmes extrémités télomériques. Généraliser les schémas des chromosomes nucléaires humains à tout génome serait incorrect.
Taille du génome et nombre de gènes
La taille totale du génome n’est pas proportionnelle de manière simple au nombre de gènes codant des protéines. Séquences répétées, introns, régions intergéniques et éléments mobiles contribuent à la taille.
Une séquence non codante n’est pas automatiquement fonctionnelle, mais elle n’est pas automatiquement inutile non plus. Certaines régions régulent l’expression, organisent le chromosome ou produisent des ARN fonctionnels ; d’autres n’ont pas de fonction établie dans le contexte étudié.
Le nombre de transcrits possibles peut dépasser le nombre de gènes en raison de promoteurs, épissages et terminaisons alternatifs. Cela ne signifie pas que toutes les variantes soient présentes dans chaque cellule.
Accessibilité et activité
Une région ouverte peut être accessible aux facteurs sans être fortement transcrite si les activateurs nécessaires manquent. Une région plus compacte peut présenter une activité particulière à certains moments ou dans certains types cellulaires.
Les modifications d’histones forment des combinaisons reconnues par des protéines. L’acétylation est souvent associée à une accessibilité accrue, mais son effet dépend du site et du réseau de lecteurs. Une marque observée peut être cause, conséquence ou accompagnement d’un état transcriptionnel.
Pour tester une causalité, il faut perturber le mécanisme de manière contrôlée et mesurer les effets, plutôt que conclure à partir d’une corrélation entre marque et expression.
Inactivation du X et mosaïque fonctionnelle
Dans de nombreuses cellules possédant deux chromosomes X, un X est largement inactivé. Le choix et le maintien de cet état créent une mosaïque d’expression au niveau de l’organisme. Tous les gènes n’échappent ou ne répondent pas de manière identique à cette inactivation.
Le nombre de copies d’ADN ne diminue pas de moitié : le chromosome reste présent mais son expression est modifiée. Il faut donc distinguer dosage génomique et dosage fonctionnel.
Une inactivation biaisée peut modifier la manifestation d’un variant lié à X. Cela explique pourquoi un modèle de transmission simple peut ne pas prédire exactement l’intensité du phénotype.
Lecture d’une mesure de contenu ADN
Une cytométrie utilisant un signal proportionnel à l’ADN peut distinguer des populations autour de 2C et 4C dans un cycle diploïde. Une population intermédiaire correspond notamment à la phase S, où la réplication est en cours.
Un pic 4C n’indique pas automatiquement une cellule tétraploïde : il peut s’agir d’une cellule diploïde en G2. L’interprétation exige les marqueurs de cycle, la qualité des événements et l’exclusion des doublets de cellules.
Cas d’intégration : même séquence, accès différent
Deux types cellulaires possèdent le même gène, sans différence de séquence détectée dans sa région codante. Le premier produit beaucoup de son ARN, le second très peu. Une expérience révèle une chromatine plus accessible autour du promoteur dans le premier. Que peut-on proposer, et que ne démontre pas cette seule association ?
Résolution et discussion
L’accessibilité peut faciliter les interactions entre ADN, facteurs de transcription et machinerie de transcription. L’organisation nucléosomique, les protéines régulatrices et certaines modifications de chromatine participent à des états fonctionnels différents. Posséder une séquence ne signifie donc pas l’exprimer au même niveau dans toutes les cellules.
L’observation reste corrélative. Une chromatine accessible peut contribuer à l’expression, mais certains événements de transcription peuvent aussi modifier l’organisation locale. Pour établir une relation causale, une perturbation ciblée accompagnée de contrôles peut tester si une modification de l’accessibilité précède et influence la production d’ARN. Il faut également exclure une différence de stabilité de l’ARN si la mesure porte sur sa quantité accumulée.
Le promoteur n’est pas le seul territoire pertinent. Des éléments régulateurs distants peuvent agir par l’organisation tridimensionnelle du génome ; des facteurs présents dans un type cellulaire et absents dans l’autre peuvent changer la réponse. Une région codante identique n’exclut pas une différence ailleurs dans le locus.
Enfin, toutes les modifications de chromatine ne sont pas automatiquement transmises durablement lors des divisions. Le mot épigénétique doit être employé avec une définition explicite. Une variation réversible d’expression dans une cellule ne prouve pas à elle seule une transmission entre générations d’organismes. Distinguer séquence, état de chromatine, transcription et héritabilité permet d’éviter quatre affirmations différentes à partir d’une seule expérience.
Repères : préciser ce que l’on compte en mitose
Pour une cellule humaine diploïde de référence, le comptage nucléaire change selon la phase et l’unité observée. Les chromatides séparées en anaphase deviennent des chromosomes distincts ; compter toute la cellule n’est alors pas compter un futur noyau.
| Unité observée | Chromosomes | Molécules d’ADN double brin | Contenu ADN |
|---|---|---|---|
| Cellule en G1 | 46 | 46 | 2C |
| Cellule en G2 | 46 | 92 | 4C |
| Cellule entière en anaphase, avant division | 92 | 92 | 4C |
| Lot destiné à chaque noyau fils | 46 | 46 | 2C |
Le passage momentané à 92 chromosomes dans la cellule entière ne signifie pas qu’une nouvelle réplication vient d’avoir lieu. Les molécules sont les mêmes qu’en G2 ; c’est la séparation des unités centromériques qui change le comptage. Le modèle exclut ici aneuploïdie, endoréplication et ADN mitochondrial.
Lecture visuelle : ADN : antiparallélisme et complémentarité
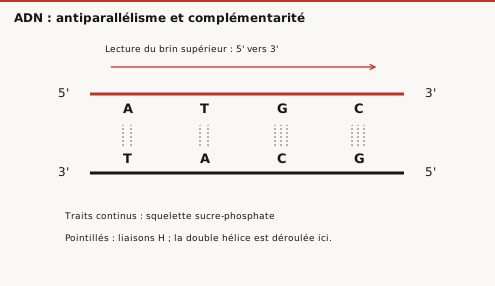
Question de lecture. Quelle est la séquence du brin inférieur écrite 5′ vers 3′ ?
Correction. GCAT. TACG est sa lecture de gauche à droite sur ce dessin, donc 3′ vers 5′. Complémenter puis réorienter sont deux opérations distinctes.
Approfondissement v0.4 : composition d’un duplex et reconnaissance de la séquence
Chargaff s’applique au duplex entier
Dans un ADN bicaténaire apparié selon A-T et G-C, chaque A possède un T sur l’autre brin. Le total du duplex vérifie donc A = T et G = C. Cela n’impose pas A = T sur chaque brin pris isolément. Un brin peut contenir beaucoup d’adénines, compensées par les thymines de son complément.
Pour un duplex de 1000 paires de bases contenant 40 % de G + C, il y a 400 paires G-C et 600 paires A-T. Le duplex contient 2000 nucléotides : 400 G, 400 C, 600 A et 600 T. Les fractions calculées parmi les nucléotides sont donc G = C = 20 % et A = T = 30 %. Les 40 % de GC ne signifient pas 40 % de G et encore 40 % de C.
Dénaturer n’est pas hydrolyser le squelette
Une dénaturation thermique sépare progressivement les brins en rompant surtout des interactions non covalentes. Elle ne correspond pas à une hydrolyse complète des liaisons phosphodiester. La réassociation devient possible si des brins complémentaires, des conditions compatibles et un temps suffisant sont réunis.
L’absorbance à 260 nm augmente typiquement lorsque les bases perdent leur organisation empilée : c’est l’effet hyperchrome. La température de fusion est définie relativement à la transition mesurée. Elle dépend de la séquence, de la longueur, des sels, des mésappariements et des conditions expérimentales. La proportion GC est un facteur utile, mais elle ne suffit pas à calculer une température universelle pour deux molécules quelconques.
Lire une information sans ouvrir toute l’hélice
Les grands et petits sillons exposent des motifs chimiques des paires de bases. Certaines protéines reconnaissent ces motifs et la forme locale de l’ADN ; elles n’ont pas besoin de séparer durablement tous les brins pour distinguer des séquences. L’interaction peut combiner liaisons hydrogène, contacts électrostatiques et ajustement de forme.
La charge négative du squelette est relativement commune aux séquences. Elle aide certaines interactions mais ne suffit pas à expliquer une reconnaissance spécifique d’un promoteur. Une protéine qui se lie à l’ADN n’est donc pas automatiquement un facteur reconnaissant une seule séquence.
Relier longueur et organisation
Avec une progression axiale approximative de 0,34 nm par paire de bases pour l’ADN B, 1000 paires représentent environ 340 nm de contour. Ce nombre n’est ni le diamètre du noyau occupé ni la distance entre extrémités d’une molécule repliée. L’association à des protéines et les courbures organisent cette longueur dans l’espace. Séparer longueur de contour, compaction et accessibilité évite de déduire l’activité d’un gène de sa seule taille.
Exercices progressifs
1. Écrire le complément inverse de 5′-AACG-3′.
2. Après réplication, une cellule diploïde devient-elle tétraploïde ?
3. Un exon est-il toujours entièrement traduit ?
4. Donner n et C après méiose I dans le modèle standard.
5. Une protéine mitochondriale est-elle forcément codée par l’ADN mitochondrial ?
6. Une cellule entière en anaphase contient-elle 184 molécules d’ADN nucléaire double brin parce qu’on y compte 92 chromosomes ?
7. Un duplex de 500 paires contient 60 % de GC. Compter G, C, A et T dans le duplex entier, puis estimer sa longueur de contour avec 0,34 nm par paire.
Corrections argumentées
1. 5′-CGTT-3′. Il faut compléter les bases puis inverser l’ordre pour conserver l’écriture 5′ vers 3′.
2. Non. Elle reste 2n mais passe de 2C à 4C.
3. Non. Certains exons comprennent des régions non traduites.
4. n, 2C, avec chromosomes encore à deux chromatides.
5. Non. La majorité des protéines mitochondriales est codée dans le noyau et importée.
6. Non : elle contient 92 molécules double brin, chacune correspondant à un chromosome issu d’une chromatide séparée. Doubler de nouveau ce nombre confond les deux brins d’une même molécule avec deux molécules double brin.
7. Il contient 300 paires G-C et 200 A-T, donc 300 G, 300 C, 200 A et 200 T : total 1000 nucléotides. Sa longueur de contour vaut 500 × 0,34 = 170 nm. Les proportions de chaque brin isolé ne sont pas déterminées par ces seuls totaux.
Références et périmètre
NHGRI, glossaire de génétique, NCBI Bookshelf, réplication et maintien du génome. Comptages de référence, hors aneuploïdie ou polyploïdie particulières.
Référence complémentaire consultée : NHGRI, Chromatin, définition institutionnelle de la chromatine.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, structure de l’ADN. Exemples et calculs originaux.
Partie 2 · Réplication, dommages et réparation de l’ADN
Prérequis et objectifs
Connaître antiparallélisme et contenu en ADN. Le cours explique pourquoi la réplication impose un brin continu et un brin discontinu, puis distingue erreurs de copie et lésions chimiques. Réparer l’ADN ne signifie pas appliquer une seule enzyme universelle.
1. Réplication semi-conservative
Chaque molécule fille conserve un brin parental et contient un brin nouvellement synthétisé. La complémentarité permet au brin parental de servir de matrice, mais elle ne rend pas la copie infaillible.
Les ADN polymérases ajoutent un nucléotide sur un OH 3′ préexistant. La synthèse progresse donc 5′ vers 3′, tandis que la matrice est lue 3′ vers 5′. Une amorce est nécessaire pour les polymérases réplicatives usuelles.
L’énergie de polymérisation provient du nucléotide triphosphate entrant et de la libération de pyrophosphate. Une base complémentaire seule ne suffit pas : il faut le substrat activé et une géométrie catalytique correcte.
2. Organiser une fourche
L’hélicase sépare les brins. Des protéines stabilisent l’ADN simple brin et limitent son réappariement. Les topoisomérases contrôlent les contraintes de torsion engendrées en amont par l’ouverture.
Le brin directeur est synthétisé de manière globalement continue dans le sens de progression de la fourche. Le brin retardé est synthétisé en fragments d’Okazaki, chacun 5′ vers 3′, avec plusieurs amorces. Le mot « retardé » ne signifie pas une synthèse 3′ vers 5′.
Après retrait ou remplacement des amorces, les espaces sont comblés et une ligase rétablit la continuité phosphodiester. La ligase ne choisit pas les bases d’un long fragment et ne remplace pas la polymérase.
3. Origines et extrémités
Les chromosomes eucaryotes possèdent plusieurs origines de réplication, permettant de copier de longues molécules dans un temps compatible avec le cycle. L’autorisation de démarrer et l’activation des origines sont régulées pour éviter des réplications multiples non contrôlées d’une même région.
Les chromosomes linéaires posent un problème de copie de leurs extrémités. La télomérase utilise un ARN matrice interne pour allonger une extrémité d’ADN, ce qui permet ensuite des étapes complémentaires. Son activité varie selon les types cellulaires.
Les télomères ne sont pas seulement de l’ADN « inutile » : ils participent à la protection des extrémités et à leur distinction d’une cassure accidentelle. Leur longueur ne donne pas à elle seule une mesure universelle de l’âge biologique.
4. Fidélité
La sélection du nucléotide, la relecture par certaines polymérases et les systèmes de réparation contribuent successivement à la fidélité. La relecture exonucléase retire un nucléotide mal incorporé à l’extrémité du brin naissant dans les systèmes concernés.
La réparation des mésappariements corrige des erreurs échappées à la relecture. Elle doit identifier le brin à corriger grâce aux signaux appropriés du système. L’existence de deux brins complémentaires rend cette correction possible, mais le choix de la bonne référence reste essentiel.
Une erreur non corrigée peut devenir une modification stable après une réplication ultérieure. Une lésion n’est donc pas automatiquement une mutation fixée.
5. Dommages et voies de réparation
La désamination, l’oxydation, la perte de bases ou certains rayonnements altèrent l’ADN. Les voies répondent à des types de lésions différents.
La réparation par excision de base commence souvent par une glycosylase qui retire une base altérée. Le site résultant est traité, puis polymérase et ligase restaurent le brin. La réparation par excision de nucléotides enlève un segment contenant une lésion déformant la structure, puis comble la brèche.
Les cassures double brin peuvent être réparées par jonction d’extrémités ou par recombinaison homologue selon le contexte. La recombinaison homologue utilise une séquence homologue comme modèle ; elle est favorisée quand une chromatide sœur est disponible.
La jonction non homologue ne nécessite pas un long modèle homologue et peut introduire de petites insertions ou délétions. Elle n’est pas forcément fautive à chaque événement, mais le traitement des extrémités peut modifier la séquence.
6. Points de contrôle et conséquences
Des systèmes de réponse aux dommages ralentissent la progression du cycle, mobilisent des réparations ou déclenchent d’autres réponses si les lésions persistent. Un point de contrôle ne répare pas lui-même toutes les lésions : il coordonne des décisions cellulaires.
La réparation peut échouer, être incomplète ou favoriser un réarrangement. Un défaut d’une voie augmente certains types d’erreurs plutôt qu’une erreur unique identique partout.
| Situation | Réponse générale |
|---|---|
| Mauvaise base incorporée | Relecture puis réparation des mésappariements |
| Base chimiquement altérée | Excision de base selon la lésion |
| Lésion volumineuse | Excision de nucléotides selon le contexte |
| Cassure double brin | Jonction ou recombinaison homologue |
- Ouvrir et détordre
- Amorcer
- Synthétiser les deux brins
- Remplacer les amorces et ligaturer
- Contrôler les erreurs
Schéma de principe : lire les conditions et les limites dans le texte.
La réparation continue aussi en dehors de la réplication ; la dernière étape du schéma ne résume pas toute la maintenance du génome.
Développement : mécanismes de fidélité et choix d’une réparation
Pourquoi la synthèse 5′ vers 3′ facilite la relecture
Le nucléotide entrant apporte un triphosphate activé. Après retrait d’un dernier nucléotide mal incorporé, l’extrémité 3′ du brin reste disponible pour recevoir un nouveau nucléotide activé.
La correction ne retire donc pas une activation indispensable portée uniquement par le bout de chaîne dans le sens réel de synthèse. Ce raisonnement aide à comprendre la cohérence entre direction de polymérisation et possibilité de relecture.
La relecture ne corrige pas toutes les erreurs avec une efficacité parfaite. La fidélité finale résulte de plusieurs filtres successifs, dont les performances se combinent sans rendre le taux d’erreur nul.
Hélicase et topoisomérase
L’hélicase ouvre localement les brins en utilisant de l’énergie. La topoisomérase traite les contraintes topologiques dues à cette ouverture par des coupures et religations contrôlées de l’ADN.
Une topoisomérase ne sert donc pas simplement à « dérouler comme l’hélicase ». Elle permet de modifier l’enroulement ou de séparer des molécules enlacées selon la classe d’enzyme. Les deux fonctions sont complémentaires.
Un blocage topologique peut arrêter la progression même si les nucléotides et polymérases sont disponibles. La réplication est une opération mécanique et chimique coordonnée.
Retirer les amorces
Une amorce d’ARN apporte le OH 3′ nécessaire au démarrage. Elle doit ensuite être remplacée par de l’ADN et la dernière interruption du squelette scellée. Les enzymes exactes diffèrent entre bactéries et eucaryotes.
Une ligase exige des extrémités chimiques compatibles. Elle ne comble pas une longue lacune sans synthèse préalable. Si plusieurs nucléotides manquent, une polymérase doit d’abord les incorporer à partir de la matrice.
Cette succession explique pourquoi « amorce, polymérase, ligase » ne désigne pas trois outils indépendants interchangeables, mais des fonctions successives.
BER et NER sur un exemple
Une cytosine désaminée devient uracile dans l’ADN. Une glycosylase adaptée peut reconnaître et retirer cette base, laissant un site sans base qui sera traité. Le brin complémentaire aide à restaurer la bonne information.
Une lésion volumineuse déformant l’hélice appelle plutôt une excision d’un segment dans la voie NER classique. On retire alors plusieurs nucléotides autour de la lésion avant resynthèse.
Le choix dépend de la lésion, de son contexte et des systèmes disponibles. Les noms « base » et « nucléotide » décrivent des mécanismes d’excision différents, pas simplement deux tailles arbitraires de la même opération.
Cassure double brin
Une cassure sur les deux brins supprime localement la continuité des deux matrices. La réparation par recombinaison homologue peut chercher une copie homologue, souvent la chromatide sœur après réplication.
La jonction d’extrémités peut rapprocher les bouts sans long modèle. Si les extrémités doivent être retaillées ou remplies, de petites modifications de séquence peuvent apparaître. Un réarrangement est possible si des extrémités de cassures différentes sont associées.
La phase du cycle influence la disponibilité d’une chromatide sœur et donc certaines options. Les voies ne sont pas choisies uniquement selon la gravité visuelle d’un dommage.
Télomérase et protection
La télomérase allonge une extrémité en utilisant son ARN interne comme matrice. Elle ne réplique pas seule tout le chromosome et ne remplace pas toutes les enzymes de maturation des extrémités.
Des protéines télomériques empêchent que l’extrémité normale soit traitée comme une cassure ordinaire. Une perte de cette protection peut déclencher des réponses aux dommages même sans coupure récente.
Distinguer mutation et réparation fautive
Un changement stable peut résulter d’une erreur de copie non corrigée, d’une lésion contournée ou d’une réparation modifiant la séquence. Le mot mutation décrit le résultat génétique, pas une seule cause moléculaire.
Une réparation efficace peut supprimer une lésion sans laisser de variant. Une cellule exposée à un agent dommageable n’est donc pas nécessairement porteuse de toutes les mutations imaginables ; fréquence, réparation et sélection cellulaire déterminent le résultat.
Cas d’intégration : pourquoi un brin est discontinu
Une fourche de réplication progresse vers la droite sur un ADN bicaténaire. Le brin matrice supérieur est orienté 3′ vers 5′ de gauche à droite ; l’inférieur est orienté 5′ vers 3′. Identifier le brin néosynthétisé continu au voisinage de cette fourche et expliquer l’existence des fragments d’Okazaki.
Résolution et discussion
Une ADN polymérase allonge une extrémité 3′ et synthétise donc le nouveau brin dans le sens 5′ vers 3′. Elle lit sa matrice dans le sens opposé. La matrice supérieure permet une synthèse vers la droite, dans le même sens que l’avancée de la fourche : c’est le modèle du brin directeur pour cette fourche.
La matrice inférieure impose une synthèse locale vers la gauche. À mesure que la fourche découvre de nouvelles régions à droite, de nouvelles amorces sont nécessaires pour commencer d’autres segments. Les fragments sont ensuite maturés et reliés. La discontinuité découle de l’antiparallélisme combiné à la polarité commune des polymérases, pas d’une enzyme qui synthétiserait parfois dans le sens inverse.
Les deux brins sont synthétisés au sein d’une organisation coordonnée. Un schéma de boucles peut aider à représenter cette coordination, mais ne change pas la chimie de l’allongement. Les amorces fournissent l’extrémité initiale ; leur remplacement et la ligation sont des étapes distinctes.
À l’autre fourche issue d’une même origine bidirectionnelle, les rôles des matrices s’inversent. Dire que « le brin supérieur est toujours directeur » serait donc faux. Il faut refaire le raisonnement à partir des orientations et du sens de déplacement. Cette méthode locale reste valable quelle que soit la rotation du dessin sur la page.
Application : prévoir des bandes après deux réplications
Dans un modèle idéal, un ADN initial possède deux brins marqués lourd. On le laisse se répliquer dans un milieu ne fournissant que des nucléotides légers. Après un cycle semi-conservatif, chaque molécule possède un brin lourd parental et un brin léger nouveau : toutes ont une densité intermédiaire.
Au deuxième cycle, chaque molécule hybride donne une molécule hybride et une entièrement légère. On attend donc 50 % de molécules hybrides et 50 % légères, sans molécule entièrement lourde. Au troisième cycle, la fraction hybride vaut 25 % : le nombre de brins lourds initiaux reste constant tandis que le nombre total de molécules double.
Le calcul suppose cycles synchrones complets, marquage initial homogène et séparation suffisante des densités. Il ne décrit pas directement une population eucaryote asynchrone. La présence d’une seule bande intermédiaire au premier cycle ne suffit pas, seule, à départager tous les modèles historiques ; le second cycle ajoute une contrainte.
Approfondissement v0.4 : géométrie des origines et devenir d’une erreur
Deux fourches partagent une distance
Dans un segment linéaire modèle de 120 kilobases, une origine centrale activée à t = 0 produit deux fourches avançant chacune à 1,5 kb·min−1. Chaque fourche doit parcourir 60 kb : la copie prend 40 minutes. Diviser 120 par 1,5 donnerait 80 minutes et oublierait qu’il existe deux fronts de synthèse.
Si l’origine est située à 30 kb d’une extrémité, une fourche copie 30 kb en 20 minutes et l’autre 90 kb en 60 minutes. La durée globale est celle de la plus longue tâche, soit 60 minutes. Additionner les deux durées ne décrit pas des processus simultanés. Une origine supplémentaire peut réduire la durée, mais son moment d’activation et sa position doivent être connus.
Plusieurs origines ne signifient pas plusieurs copies
Deux fourches convergentes copient les régions situées entre leurs origines puis terminent. Elles ne doivent pas doubler une nouvelle fois les régions déjà répliquées. L’autorisation des origines et leur activation à des moments distincts du cycle participent à cette maîtrise. Un nombre d’origines seul ne suffit pas à prédire exactement la durée d’une phase S réelle : vitesses variables, origines non activées et obstacles interviennent.
D’un mésappariement à deux duplex différents
Partons d’une paire G-C. Une polymérase incorpore à tort un T face au G parental, produisant un duplex G-T. À ce stade, le problème est un mésappariement : l’information des deux brins n’est pas concordante. Si aucune correction n’intervient avant le cycle suivant, le brin G peut guider un C et restaurer une molécule G-C ; le brin T peut guider un A et donner A-T. Une des lignées porte alors une substitution stable par rapport à la référence.
Ce schéma ne signifie pas que la moitié de toutes les cellules d’un organisme portera ce variant. Il suit seulement les deux descendances moléculaires du duplex concerné sous hypothèses idéales. Ségrégation, divisions et sélection déterminent ensuite sa distribution cellulaire.
Multiplier des probabilités conditionnelles
Si la sélection initiale laisse une erreur pour 10 000 incorporations, puis que la relecture en élimine 99 %, le taux résiduel est 10−4 × 10−2 = 10−6. Une réparation qui élimine 99 % des erreurs restantes donne 10−8. Ces nombres fictifs illustrent une succession de filtres : le pourcentage du deuxième filtre s’applique aux erreurs qui lui parviennent, pas à toutes les bases. Les taux réels varient selon polymérase, contexte et lésion.
Exercices progressifs
1. Dans quel sens une polymérase réplicative allonge-t-elle l’ADN ?
2. Les fragments d’Okazaki sont-ils synthétisés 3′ vers 5′ ?
3. Quelle enzyme scelle une interruption du squelette ?
4. Une lésion oxydée est-elle nécessairement une mutation fixée ?
5. Pourquoi la disponibilité d’une chromatide sœur aide-t-elle la recombinaison homologue ?
6. Après quatre cycles complets dans ce modèle, quelle fraction des molécules reste hybride ?
7. Une origine activée à t = 10 min est à 20 kb et 80 kb des extrémités d’un segment isolé. Les deux fourches avancent à 2 kb·min−1. À quelle date la copie finit-elle, en l’absence d’autres origines ?
Corrections argumentées
1. 5′ vers 3′, par ajout à l’extrémité 3′.
2. Non. Chacun est synthétisé 5′ vers 3′ malgré l’orientation discontinue de l’ensemble.
3. Une ADN ligase.
4. Non. Elle peut être réparée avant de devenir une modification stable de séquence.
5. Elle offre un modèle homologue très proche, permettant de restaurer l’information manquante.
6. 1/8, soit 12,5 %. Après le premier cycle, toutes sont hybrides ; chaque cycle suivant divise leur proportion par deux. Les brins lourds initiaux persistent sans se multiplier.
7. Les parcours demandent 20/2 = 10 min et 80/2 = 40 min après activation. La fin survient 40 minutes après le départ, soit à t = 50 min. On prend le maximum des durées simultanées puis on ajoute le délai d’activation.
Références et périmètre
NCBI Bookshelf, DNA Replication Mechanisms, DNA Repair. Présentation originale des principes ; nomenclature détaillée des polymérases à ajuster au programme local.
Référence ciblée : NCBI Bookshelf, Genomes, Genome Replication.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, réplication eucaryote. Exemples et calculs originaux.
Partie 3 · Transcription et maturation des ARN
Prérequis et objectifs
Connaître orientation des acides nucléiques et organisation d’un gène. Le cours explique la production d’un ARN à partir d’un brin d’ADN, ses transformations chez les eucaryotes et les niveaux de contrôle de sa quantité.
1. Brin matrice et brin codant
L’ARN polymérase lit un brin matrice 3′ vers 5′ et synthétise l’ARN 5′ vers 3′. L’ARN est complémentaire du brin matrice et possède la même séquence que le brin codant orienté 5′ vers 3′, avec U à la place de T.
Pour un brin codant 5′-ATG GAA TGA-3′, l’ARN correspondant est 5′-AUG GAA UGA-3′ dans la région transcrite. Copier directement le complément de ce brin codant sans tenir compte des orientations donnerait un autre résultat.
Le brin utilisé comme matrice dépend du gène. Les deux brins d’un chromosome peuvent porter des gènes dans des orientations différentes ; il n’existe pas un unique brin codant pour tout le chromosome.
2. Initiation et promoteur
Le promoteur contribue au recrutement de la machinerie et définit l’orientation et la zone de départ. Des facteurs de transcription reconnaissent des séquences et interagissent avec la polymérase et d’autres protéines.
Chez les eucaryotes, ARN polymérase I produit principalement les grands précurseurs d’ARN ribosomiques, polymérase II produit les pré-ARNm et divers ARN non codants, et polymérase III produit notamment ARNt et ARN 5S. Ce classement comporte des détails spécifiques, mais évite d’attribuer tous les ARN à la polymérase II.
L’ARN polymérase peut initier sans amorce préexistante, contrairement aux ADN polymérases réplicatives usuelles. Elle utilise des ribonucléotides triphosphates.
3. Élongation et terminaison
La polymérase ouvre localement l’ADN, incorpore les nucléotides complémentaires puis permet le réappariement de l’ADN derrière elle. L’ARN se détache progressivement ; seule une courte zone hybride existe dans le complexe.
La progression peut être régulée par pauses, facteurs d’élongation et état de la chromatine. La quantité d’ARN ne dépend donc pas uniquement du recrutement initial.
La terminaison de la transcription ne se confond pas avec un codon stop de traduction. Le codon stop est lu par le ribosome sur l’ARNm ; la terminaison transcriptionnelle implique des mécanismes propres à la polymérase et au contexte.
4. Coiffe et extrémité 3′
Pour beaucoup de transcrits de polymérase II, une coiffe particulière est ajoutée à l’extrémité 5′. Elle contribue à la protection, à la maturation, à l’export et à l’initiation de la traduction.
L’extrémité 3′ du pré-ARNm est clivée après reconnaissance de signaux, puis une queue poly(A) est ajoutée à de nombreux ARNm. La queue n’est pas simplement la copie d’une longue série de T du génome. Certaines classes d’ARNm font exception à cette organisation.
La longueur de la queue et les protéines associées influencent stabilité et traduction. « Plus de poly(A) = toujours plus de protéine » serait néanmoins trop simple : d’autres régulations interviennent.
5. Épissage
Le spliceosome reconnaît des signaux aux frontières des introns et un point de branchement. L’intron est excisé sous forme de lasso dans le mécanisme classique et les exons sont reliés.
L’épissage alternatif peut retenir différentes combinaisons d’exons ou utiliser différents sites. Un gène peut donc produire plusieurs ARN et protéines possibles. Toutes les combinaisons théoriques ne sont pas produites ; les choix sont régulés et liés au tissu ou au contexte.
Un variant intronique peut modifier l’épissage s’il touche un signal ou un élément régulateur. À l’inverse, un variant situé dans un exon peut agir sur l’épissage plutôt que seulement sur un codon.
Un exon n’est pas synonyme de séquence traduite : les régions 5′UTR et 3′UTR peuvent appartenir à des exons. Après épissage, l’ARNm mature conserve donc des régions non traduites.
6. Export, stabilité et ARN non codants
Un ARN doit acquérir des partenaires et passer des contrôles de qualité avant export. Des transcrits mal maturés peuvent être retenus ou dégradés. La quantité cytoplasmique résulte de synthèse, maturation, transport et dégradation.
Des microARN peuvent guider des complexes vers des ARN cibles et moduler leur stabilité ou leur traduction. Ils ne se traduisent pas en petits peptides par définition de cette fonction.
Une mesure de quantité d’ARN à un instant ne donne pas directement la vitesse de transcription. Un ARN peut augmenter parce qu’il est moins dégradé. Pour distinguer ces hypothèses, on mesure par exemple la synthèse récente ou la décroissance après une perturbation adaptée, en tenant compte des effets secondaires.
7. Exemple de lecture critique
Un traitement double l’ARNm mesuré par RT-qPCR mais laisse la protéine inchangée. Plusieurs explications restent compatibles : traduction freinée, protéine très stable, délai insuffisant ou normalisation inadéquate. Il est incorrect de conclure immédiatement que le gène « ne fonctionne pas ».
- Initier la transcription
- Allonger et coiffer
- Épisser et former l’extrémité 3′
- Contrôler et exporter
- Traduire ou dégrader
Schéma de principe : lire les conditions et les limites dans le texte.
Ces étapes peuvent se chevaucher ; la maturation est souvent couplée à la transcription.
Développement : régulation combinatoire et mesure d’un ARN
Promoteur et amplificateur
Un promoteur organise l’initiation à proximité d’un point de départ. Un élément amplificateur peut agir à distance en recrutant des facteurs et en établissant des interactions tridimensionnelles avec la région de transcription.
La proximité linéaire sur le chromosome ne suffit pas à identifier le gène cible d’un élément régulateur. L’organisation spatiale, les frontières de domaines et les partenaires protéiques interviennent.
Plusieurs facteurs peuvent agir de manière combinatoire. Un activateur présent dans un tissu mais absent d’un autre explique qu’une même séquence génomique soit exprimée différemment sans changement d’ADN.
Initiation, pause et libération
Le recrutement initial n’est pas la seule étape régulée. Une polymérase peut commencer puis rester en pause, avec une libération contrôlée vers l’élongation productive.
Un signal mesurant la présence de polymérase près du promoteur ne prouve donc pas une forte production d’ARN complet. Il faut distinguer recrutement, progression et terminaison.
Les modifications de la polymérase II et ses interactions avec les facteurs de maturation coordonnent transcription, coiffe, épissage et formation de l’extrémité 3′. Le pré-ARNm n’attend pas toujours d’être entièrement synthétisé pour commencer sa maturation.
Choisir un site d’épissage
Les signaux d’épissage incluent les frontières intron-exon, le point de branchement et d’autres séquences reconnues par des protéines. Leur force relative et l’accessibilité influencent le choix.
Un exon peut être inclus dans un tissu et exclu dans un autre. Si sa longueur n’est pas multiple de trois dans la région codante, son exclusion peut décaler le cadre ; si elle l’est, une portion protéique peut être retirée en conservant le cadre.
Un variant ne touchant pas les deux bases les plus connues d’une jonction peut néanmoins agir sur l’épissage. Les éléments régulateurs sont plus étendus que ce motif minimal.
ARN mature et stabilité
La déadénylation peut contribuer à la dégradation de nombreux ARNm ; la perte de coiffe et l’action d’exonucléases participent ensuite selon les voies. Des protéines de liaison protègent ou déstabilisent certains transcrits.
Un ARN portant un stop prématuré peut être reconnu par une surveillance dépendant de sa position et de la maturation. Tous les stops prématurés ne déclenchent pas exactement la même dégradation.
La quantité mesurée est donc le résultat d’un bilan : vitesse de synthèse moins vitesse de dégradation. À l’état stationnaire simple, augmenter la demi-vie augmente la quantité même si la transcription reste identique.
Exemple de demi-vie
Si un ARN décroît selon un premier ordre après arrêt idéal de sa synthèse, une demi-vie de deux heures signifie qu’il reste 50 % après deux heures et 25 % après quatre. La pente de ln quantité en fonction du temps permet d’estimer une constante de dégradation.
Dans une expérience réelle, arrêter la transcription peut perturber la cellule et modifier les voies de dégradation. Le modèle doit donc être vérifié et les conclusions limitées aux conditions.
Si deux conditions donnent la même transcription récente mais des demi-vies différentes, une régulation post-transcriptionnelle devient plausible. Cette combinaison de mesures distingue mieux les mécanismes qu’une RT-qPCR unique.
MicroARN et spécificité
Un microARN mature est intégré dans un complexe qui reconnaît des cibles par complémentarité partielle ou plus étendue selon le système. La région de reconnaissance, l’accessibilité du site et les partenaires influencent l’effet.
Un microARN peut réguler plusieurs ARN et un ARN peut recevoir plusieurs régulations. Le réseau ne se résume pas à un interrupteur unique entre deux molécules.
Observer une corrélation inverse entre microARN et protéine ne prouve pas une interaction directe. Un test du site cible et une perturbation contrôlée renforcent l’argument.
Distinguer transcrit et isoforme
Des amorces communes à plusieurs isoformes mesurent une quantité totale de famille. Des amorces spécifiques d’une jonction mesurent une isoforme particulière. Une conclusion sur « le gène » peut donc masquer un changement de proportions entre transcrits.
Le plan de mesure doit correspondre à la question : expression globale, épissage ou maturation. La région ciblée par l’essai est une information scientifique indispensable.
Cas d’intégration : un même gène, plusieurs ARN matures
Un pré-ARN comporte trois exons A, B et C séparés par des introns. Dans un tissu, l’ARN mature contient A-B-C ; dans un autre, A-C. Pourquoi ce résultat ne signifie-t-il pas que l’ADN du second tissu a perdu l’exon B ? Quelles conséquences peut avoir l’omission sur la protéine ?
Résolution et discussion
L’épissage alternatif peut sélectionner différemment les sites utilisés lors de la maturation du pré-ARN. Le segment B peut rester présent dans le génome et dans le transcrit initial tout en étant absent d’une forme mature. La comparaison d’ARN ne démontre donc pas une délétion d’ADN. Un examen du génome répondrait à une autre question.
Si l’exon omis appartient à la région codante, son retrait peut supprimer des acides aminés tout en conservant le cadre lorsque les jonctions et la longueur sont compatibles. Il peut aussi modifier le cadre et faire apparaître un codon stop prématuré. Le seul nombre d’exons retirés ne permet pas de prédire le résultat ; la phase des jonctions et la séquence doivent être examinées.
Un exon peut également participer à une région non traduite. Son omission peut alors influencer stabilité, localisation ou traduction de l’ARN sans retirer directement un segment de protéine. Tous les exons ne sont donc pas entièrement codants et tous les changements d’ARN ne modifient pas de la même manière la séquence protéique.
Pour vérifier une isoforme, on peut concevoir des amorces encadrant la région variable ou ciblant une jonction spécifique. Le résultat dépend cependant de l’abondance, de la qualité de l’ARN et de la spécificité de l’amplification. Une bande de taille attendue constitue un indice ; le séquençage de la jonction renforce l’identification de l’événement réellement observé.
Application : compter la partie codante d’un exon sauté
Un exon contient 90 nucléotides au total, dont 10 dans la région 5′ non traduite et 80 dans la séquence codante. Dire « 90 est multiple de trois, donc son saut conserve le cadre » ignore la frontière de traduction. Le nombre pertinent pour le cadre aval est ici la longueur codante supprimée, sous réserve de conserver une initiation et une jonction compatibles.
Dans un exemple plus simple entièrement interne à la région codante, retirer 90 nucléotides conserve le cadre aval et raccourcit la séquence de trente codons au bilan. Si la nouvelle jonction ne crée pas de codon stop et si la traduction se poursuit jusqu’au stop initial, la chaîne comporte trente acides aminés de moins. Lorsque les bornes coupent des codons, un codon hybride peut aussi être modifié à la jonction : trente acides aminés de moins ne signifie donc pas exactement trente positions initiales affectées. Cela ne garantit pas une protéine fonctionnelle. Retirer 91 nucléotides décale le cadre aval, avec une conséquence dépendant de la nouvelle séquence.
Un exon peut aussi commencer ou finir au milieu d’un codon. La phase des jonctions doit alors être considérée pour reconstruire la séquence exacte. La règle modulo trois concerne le cadre global, pas l’identité de chaque codon à la nouvelle jonction.
Approfondissement v0.4 : chimie de l’épissage et production d’ARN mature
Deux transestérifications coordonnées
Dans l’épissage spliceosomal classique, le groupe 2′-OH de l’adénosine du point de branchement attaque la liaison au site 5′ de l’intron. Le premier exon est libéré avec un 3′-OH, tandis que l’extrémité 5′ de l’intron s’attache à cette adénosine par une liaison 2′-5′. Cette liaison inhabituelle constitue le point de branchement du lasso.
Le 3′-OH du premier exon attaque ensuite la liaison au site 3′ de l’intron. Les deux exons sont réunis par une liaison phosphodiester usuelle et l’intron en lasso est libéré. Il faut distinguer la chimie d’échange des liaisons et les dépenses d’ATP nécessaires à l’assemblage, aux réarrangements et aux contrôles du spliceosome. Dire que les échanges conservent le nombre de liaisons ne signifie pas que l’ensemble du processus cellulaire soit gratuit.
Reconnaissance ne signifie pas lecture d’un codon
Les positions d’épissage sont reconnues dans un pré-ARN par un ensemble de séquences et de partenaires. Le spliceosome ne choisit pas les limites en parcourant simplement les codons de trois en trois. Des jonctions peuvent couper un codon. Après réunion des exons, il faut reconstruire la séquence continue avant d’évaluer le cadre et la protéine.
Un signal altéré peut favoriser rétention d’intron, saut d’exon ou utilisation d’un site cryptique. Ces conséquences ne sont pas équivalentes. La mesure d’un fragment total ne démontre pas laquelle s’est produite ; la séquence des jonctions apporte une information directe.
Construire un bilan à deux compartiments d’ARN
Appelons P la quantité de pré-ARN et M celle d’ARN mature. Dans un modèle simple, la transcription fournit P à vitesse s, sa maturation a une constante km et sa dégradation une constante kp. On écrit dP/dt = s − (km + kp)P. La formation de M vaut kmP ; sa disparition vaut kdM, donc dM/dt = kmP − kdM.
À l’état stationnaire, P = s/(km + kp) et M = s km/[kd(km + kp)]. Ainsi, augmenter la transcription n’est pas le seul moyen d’augmenter M. Améliorer la fraction de pré-ARN correctement maturée ou ralentir la dégradation du mature peut aussi le faire.
Une observation peut séparer des hypothèses
Avec s = 100 unités·h−1, km = kp = 1 h−1 et kd = 0,5 h−1, P vaut 50 unités et M vaut 100. Si km passe à 3 sans autre changement, P diminue à 25 mais M augmente à 150. Une baisse du pré-ARN accompagnée d’une hausse du mature est donc compatible avec une maturation plus efficace, sans augmentation de transcription. Le modèle exige des constantes fixes et un état stationnaire ; une mesure pendant la transition demande les équations temporelles.
Exercices progressifs
1. Écrire l’ARN issu du brin matrice 3′-TAC CTT-5′.
2. Un codon stop arrête-t-il directement l’ARN polymérase ?
3. La queue poly(A) est-elle toujours copiée telle quelle depuis l’ADN ?
4. Un variant intronique peut-il modifier une protéine ?
5. Une hausse d’ARNm prouve-t-elle une hausse de transcription ?
6. Un saut de 60 nucléotides entièrement internes à la séquence codante prouve-t-il que la protéine reste active ?
7. Dans ce modèle, conserver s = 100, km = kp = 1 et doubler seulement la demi-vie de l’ARN mature. Quels stocks stationnaires attend-on ?
Corrections argumentées
1. 5′-AUG GAA-3′, complémentaire et antiparallèle.
2. Non. Il concerne la traduction par le ribosome.
3. Non. Elle est généralement ajoutée après clivage par une activité enzymatique dédiée.
4. Oui, notamment s’il modifie l’épissage et donc l’ARNm mature.
5. Non. Une stabilisation de l’ARN peut produire le même résultat.
6. Non. Le cadre aval est conservé car 60 est multiple de trois. En l’absence de stop créé à la nouvelle jonction et si la traduction rejoint le stop initial, la chaîne est raccourcie de vingt acides aminés au bilan. Un codon de jonction peut également être modifié si les bornes coupent des codons : le nombre de positions initiales affectées n’est alors pas nécessairement vingt. Un site catalytique, un domaine ou un signal d’adressage peut être perdu ; un nouveau stop pourrait tronquer davantage la chaîne malgré le cadre aval conservé.
7. Doubler la demi-vie divise kd par deux : 0,5 devient 0,25 h−1. P reste 100/(1+1) = 50 unités. Le flux de maturation reste 50 unités/h ; M devient 50/0,25 = 200 unités. La transcription et la maturation ne sont pas accélérées.
Référence et périmètre
NCBI Bookshelf, From DNA to RNA, référence consultée via son texte indexé. Rédaction originale centrée sur les mécanismes eucaryotes.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, maturation des ARN. Exemples et calculs originaux.
Partie 4 · Traduction, adressage et contrôle des protéines
Prérequis et objectifs
Connaître ARNm, codons et acides aminés. Le cours suit le passage de l’information nucléotidique à une chaîne peptidique, puis le devenir de cette chaîne. Une protéine fonctionnelle exige souvent davantage que la seule lecture correcte de l’ARNm.
1. Code génétique et cadre
Un codon comprend trois nucléotides lus 5′ vers 3′ sur l’ARNm. Les soixante-quatre triplets codent des acides aminés ou un signal d’arrêt dans le code standard. La dégénérescence signifie que plusieurs codons peuvent coder le même acide aminé, pas qu’un codon ordinaire code librement plusieurs acides aminés.
AUG sert fréquemment de codon initiateur et code la méthionine dans le code standard. Un AUG interne code aussi une méthionine, mais n’est pas automatiquement un nouveau départ de traduction : le contexte d’initiation compte.
Le cadre fixe la partition en triplets. Une insertion d’un nucléotide dans une région codante peut décaler tous les codons en aval ; une insertion de trois nucléotides conserve globalement le cadre, tout en modifiant la protéine.
2. ARNt et chargement
Un ARNt porte un anticodon qui reconnaît un codon et une extrémité 3′ à laquelle l’acide aminé est attaché. Les aminoacyl-ARNt synthétases assurent le chargement approprié en consommant ATP.
Cette étape est essentielle à la fidélité : le ribosome vérifie principalement l’appariement codon-anticodon, pas directement l’identité chimique de chaque acide aminé attaché. Un ARNt mal chargé peut donc transmettre une erreur malgré un appariement correct.
Le wobble permet certains appariements souples à une position du codon, ce qui réduit le nombre d’ARNt distincts nécessaires. Il ne signifie pas que n’importe quelle base peut s’apparier n’importe où.
3. Initiation eucaryote
La petite sous-unité et des facteurs d’initiation sont recrutés sur l’ARNm selon des mécanismes dépendant notamment de la coiffe dans le cas fréquent. Le complexe identifie un codon de départ dans un contexte favorable, puis la grande sous-unité rejoint l’ensemble.
L’ARNt initiateur se place au site P, contrairement aux ARNt entrants de l’élongation qui arrivent au site A. L’initiation fixe le cadre de lecture et constitue un point important de régulation.
La traduction eucaryote cytosolique ne doit pas être copiée mot pour mot sur celle des bactéries ou des mitochondries. Les principes communs sont nombreux, mais signaux et facteurs diffèrent.
4. Élongation
Un aminoacyl-ARNt adapté arrive au site A. La chaîne portée au site P est transférée sur l’acide aminé du site A. La formation de la liaison peptidique dépend du centre peptidyl-transférase du ribosome, dont l’ARN ribosomique joue un rôle catalytique.
La translocation déplace le ribosome d’un codon. L’ARNt portant la chaîne passe vers P, tandis que l’ARNt déchargé se dirige vers E puis sort. La chaîne s’allonge de l’extrémité N vers l’extrémité C.
Des facteurs utilisant GTP participent à la sélection et aux mouvements. Le coût de synthèse ne se limite donc pas à un ATP par liaison peptidique : chargement des ARNt, étapes à GTP et autres processus doivent être distingués.
5. Terminaison
Un codon stop est reconnu par des facteurs de terminaison, non par un ARNt ordinaire portant « l’acide aminé stop ». La liaison entre la chaîne et l’ARNt est hydrolysée, puis les composants sont recyclés.
Plusieurs ribosomes peuvent traduire simultanément un même ARNm et former un polysome. Ils produisent plusieurs chaînes distinctes, pas une seule chaîne partagée entre ribosomes.
Le nombre de ribosomes associés peut renseigner sur la traduction, mais un encombrement peut aussi refléter un ralentissement d’élongation. Occupation ribosomique et production effective doivent être interprétées ensemble.
6. Adressage et maturation
Des signaux présents dans la séquence orientent certaines protéines vers des compartiments. Un peptide signal peut recruter une particule de reconnaissance et orienter la traduction vers le réticulum endoplasmique pour des protéines sécrétées ou membranaires.
Les protéines destinées au noyau, aux mitochondries ou à d’autres organites utilisent des signaux et systèmes différents. Il ne faut pas supposer que toutes passent d’abord par le réticulum.
Le repliement, les ponts disulfure, la glycosylation, le clivage et l’assemblage peuvent être nécessaires à la fonction. Une protéine de masse apparente supérieure à la séquence prévue peut porter des modifications, mais cette hypothèse doit être vérifiée.
7. Protéostasie
Des chaperonnes aident au repliement et limitent l’agrégation. Des protéines mal repliées peuvent être reconnues, ubiquitinées puis dégradées par le protéasome selon le contexte. L’ubiquitine remplit aussi d’autres fonctions ; toute ubiquitination ne signifie pas automatiquement destruction immédiate.
La dégradation lysosomale et l’autophagie traitent d’autres ensembles, notamment certains organites ou agrégats. La quantité d’une protéine résulte d’un équilibre dynamique entre synthèse et destruction.
- Charger les ARNt
- Initier dans le bon cadre
- Allonger N vers C
- Terminer et libérer
- Replier et adresser
Schéma de principe : lire les conditions et les limites dans le texte.
Le schéma sépare des fonctions qui peuvent se dérouler simultanément, comme traduction et adressage au réticulum.
Développement : fidélité, énergie et destination d’une chaîne
Charger correctement un ARNt
Une aminoacyl-ARNt synthétase reconnaît des éléments de l’ARNt et l’acide aminé. L’activation par ATP forme un intermédiaire aminoacyl-adénylate, puis l’acide aminé est transféré sur l’extrémité 3′ de l’ARNt.
ATP devient AMP et pyrophosphate : le chargement représente deux équivalents de liaison phosphoanhydride. Certaines synthétases disposent de mécanismes d’édition qui éliminent des acides aminés mal sélectionnés.
Le ribosome ne peut pas réparer automatiquement toutes les erreurs de chargement. La fidélité de traduction est donc répartie entre préparation des substrats, reconnaissance codon-anticodon et étapes de contrôle associées.
Liaison peptidique et énergie stockée
L’acide aminé est lié à l’ARNt par une liaison ester activée. Cette activation contribue à rendre possible le transfert de la chaîne lors de la formation de la liaison peptidique.
Le ribosome ne casse pas simplement un ATP au moment précis où chaque liaison peptidique se forme pour lui « donner de l’énergie ». Les coûts sont distribués entre chargement, sélection et translocation. Cette chronologie évite un bilan mécanistique trop simplifié.
Pour une longue chaîne, on retient souvent un ordre de grandeur de quatre équivalents énergétiques par acide aminé incorporé, en combinant chargement et deux étapes à GTP, avec des détails supplémentaires pour initiation et terminaison. Le périmètre du calcul doit être explicitement annoncé.
Lecture d’une séquence
Pour 5′-AUG GCU UUU UGA-3′ dans un cadre démarrant au premier AUG, la chaîne standard est méthionine-alanine-phénylalanine, puis arrêt. Le codon UGA n’ajoute pas un quatrième résidu dans ce modèle.
Si l’on insère un nucléotide après AUG, tous les triplets suivants peuvent changer. L’effet n’est pas seulement l’ajout d’un acide aminé. Une insertion de trois nucléotides peut conserver le cadre mais ajouter un résidu ou modifier des codons aux frontières selon sa position.
La séquence de l’ARN doit être lue dans le bon sens ; une traduction du brin complémentaire sans reconstruire le cadre donnerait une autre protéine.
Initiation et contexte
Le premier AUG rencontré n’est pas nécessairement utilisé avec la même efficacité dans toutes les séquences. Le contexte nucléotidique et les facteurs d’initiation influencent sa reconnaissance.
Des cadres ouverts courts dans la région 5′ non traduite peuvent moduler l’accès au cadre principal. Une variation dans cette région peut donc changer la quantité de protéine sans modifier sa séquence codante.
La régulation de traduction permet des réponses rapides à l’état nutritif ou au stress, sans attendre une modification de transcription. Une quantité d’ARN stable n’implique pas une production de protéine stable.
Adressage au réticulum
Une séquence signal émergente peut être reconnue par la particule SRP, qui oriente le complexe vers un récepteur et un translocon du réticulum. La chaîne entre dans la lumière ou s’insère dans la membrane selon ses signaux.
Le peptide signal peut être clivé, mais toutes les séquences d’adressage ne le sont pas. Des segments d’arrêt ou de reprise du transfert contribuent à l’orientation des protéines membranaires.
La topologie obtenue a des conséquences : une portion luminale du réticulum pourra devenir extracellulaire après trafic vers la membrane plasmique. Elle ne traverse pas arbitrairement la bicouche lors de chaque transport vésiculaire.
Import mitochondrial
De nombreuses protéines mitochondriales sont synthétisées sur des ribosomes cytosoliques puis importées via des complexes membranaires adaptés. Les signaux et les exigences énergétiques diffèrent de l’entrée cotraductionnelle dans le réticulum.
Une protéine mal adressée peut être présente en quantité normale mais manquer de fonction dans le compartiment où elle est nécessaire. Une mesure totale par western blot ne détecte pas automatiquement ce défaut de localisation.
Dégradation et renouvellement
Un signal de dégradation peut être exposé par un mauvais repliement ou ajouté par modification. Le protéasome traite de nombreuses protéines ubiquitinées ; les lysosomes et l’autophagie prennent en charge d’autres substrats et ensembles.
Une protéine stable peut persister longtemps après la disparition de son ARN. À l’inverse, une protéine à demi-vie courte peut changer rapidement malgré un ARN relativement constant. Les délais entre mesures doivent donc être intégrés au raisonnement.
Cas d’intégration : lire dans le bon cadre
Un fragment d’ARNm est donné dans le sens 5′ vers 3′ : AUG GAA UUU GGC UAA. On suppose que l’initiation a lieu sur le premier AUG. Traduire le fragment, puis comparer le remplacement du deuxième codon GAA par GAG et l’insertion d’un nucléotide après AUG.
Résolution et discussion
Le fragment code méthionine, glutamate, phénylalanine et glycine, puis un signal stop. Le codon stop ne correspond pas à un acide aminé ajouté : des facteurs de terminaison permettent la libération de la chaîne. La traduction lit successivement des triplets non chevauchants dans le cadre établi lors de l’initiation.
GAA et GAG codent tous deux le glutamate dans le code génétique standard. Ce remplacement est synonyme au niveau de la séquence protéique de l’exemple. Cela ne garantit pas une absence de tout effet biologique dans un gène réel : contexte d’épissage, structure de l’ARN ou efficacité de traduction peuvent parfois être concernés. La qualification synonyme décrit précisément le codage, pas toutes les fonctions de la séquence.
Une insertion d’un nucléotide dans la région codante décale les triplets suivants, sauf événement compensateur ultérieur. Les acides aminés en aval et la position du prochain stop peuvent changer. Il faut réécrire la séquence continue avant de reformer les triplets ; conserver les espaces anciens conduirait à un résultat faux.
Enfin, l’anticodon d’un ARNt s’apparie de façon antiparallèle au codon. Si on demande sa séquence, son orientation doit être indiquée. Une bonne réponse distingue ainsi trois écritures : brin d’ADN matrice, ARNm et anticodon. Elles sont liées par complémentarité ou codage, mais ne se lisent pas toutes dans le même sens sur un schéma arbitraire.
Application : compter le coût d’une chaîne avant les étapes annexes
Considérons une chaîne de 100 acides aminés, sans recyclage d’acides aminés déjà chargés. Charger 100 ARNt consomme 100 ATP transformés en AMP, soit 200 équivalents de liaison phosphoanhydride. Il faut ensuite 99 ajouts après l’acide aminé initiateur.
Dans le modèle usuel de l’élongation, chacun de ces ajouts utilise un GTP pour la livraison/sélection de l’aminoacyl-ARNt et un GTP pour la translocation : 198 GTP. Le sous-total est donc 398 équivalents énergétiques pour chargement et élongation ainsi définis. La liaison peptidique utilise l’énergie de l’ester aminoacyl-ARNt ; on ne lui ajoute pas arbitrairement un ATP supplémentaire.
Le total cellulaire est supérieur ou différent selon ce que l’on inclut : initiation, terminaison, recyclage du ribosome, relectures infructueuses, adressage et maturation. Un résultat numérique doit donc toujours être accompagné du périmètre de comptage.
Approfondissement v0.4 : temps de transit, polysomes et renouvellement
Compter un temps de synthèse
Pour une séquence codant 300 acides aminés et une vitesse moyenne de cinq acides aminés par seconde, le transit idéal d’un ribosome demande environ 60 secondes, en négligeant les délais d’initiation et de terminaison. Cette estimation dépend de la vitesse locale et des pauses ; elle n’est pas une constante universelle de toutes les cellules.
Si un nouveau ribosome s’engage toutes les dix secondes, le flux d’initiation est 0,1 s−1. À l’état stationnaire sans abandon, il correspond aussi au flux de chaînes terminées. Le nombre moyen de ribosomes présents est approximativement flux × temps de transit, soit 0,1 × 60 = six. Les six ribosomes produisent six chaînes différentes à des stades distincts.
Un polysome plus chargé peut traduire plus lentement
Si l’élongation est ralentie par deux sans changement initial du débit d’entrée, le transit devient 120 secondes et l’occupation théorique douze ribosomes. La production ne double pas : elle reste limitée par les entrées dans ce modèle tant que l’encombrement ne rétroagit pas. À densité trop forte, collisions et blocage peuvent diminuer le flux ou déclencher des contrôles supplémentaires.
Une mesure de l’occupation ribosomique doit donc être accompagnée d’une information sur le transit ou la production récente. Davantage de ribosomes sur un ARNm peut refléter davantage d’initiations, une sortie plus lente ou une accumulation locale. Une seule mesure de densité ne tranche pas entre ces possibilités.
De la chaîne produite au stock protéique
Une fois libérée, la protéine rejoint un stock dont le renouvellement peut être modélisé par dP/dt = v − kP. À l’état stationnaire, P = v/k. Si v vaut 60 molécules par minute et la demi-vie 10 minutes, k = ln2/10 ≈ 0,0693 min−1 et P ≈ 866 molécules. Une demi-vie de 20 minutes double ce stock pour la même synthèse.
Après un changement de v, le stock n’atteint pas immédiatement sa nouvelle valeur. L’écart au nouvel état stationnaire diminue exponentiellement dans ce modèle. Une mesure très précoce peut donc montrer un changement d’ARN ou de traduction sans variation encore nette de protéine accumulée.
Ne pas confondre abondance et activité
Une chaîne mesurée peut être immature, mal localisée ou intégrée dans un complexe inactif. La quantité totale et la fraction fonctionnelle sont deux variables. Pour tester un mécanisme d’adressage, il faut suivre la localisation ; pour une enzyme, l’activité et les conditions du dosage. Ces choix de mesure découlent du mécanisme posé et non du seul outil disponible.
Exercices progressifs
1. Dans quel sens le ribosome lit-il l’ARNm ?
2. Dans quel sens s’allonge la protéine ?
3. Qui associe le bon acide aminé au bon ARNt ?
4. Un codon stop recrute-t-il un ARNt portant un acide aminé particulier ?
5. Une protéine plus abondante implique-t-elle nécessairement une traduction plus rapide ?
6. Avec le même périmètre, combien d’équivalents énergétiques faut-il pour une chaîne de 10 acides aminés ?
7. Un ARNm de 600 codons est parcouru à 10 codons/s, avec une initiation toutes les 15 s. Estimer transit, occupation moyenne et débit de chaînes terminées dans le modèle sans pause ni abandon.
Corrections argumentées
1. 5′ vers 3′.
2. De N vers C, par ajout au carboxyle terminal.
3. Une aminoacyl-ARNt synthétase adaptée.
4. Non. Des facteurs de terminaison déclenchent la libération.
5. Non. Une dégradation plus lente peut augmenter la quantité sans hausse de synthèse.
6. Le chargement coûte 2 × 10 = 20 équivalents ; les 9 cycles d’élongation coûtent 2 × 9 = 18 GTP. Sous-total : 38. Les coûts d’initiation, terminaison et autres étapes restent exclus explicitement.
7. Le transit vaut 600/10 = 60 s. Le débit vaut 1/15 chaîne/s, soit quatre chaînes/min. L’occupation moyenne vaut 60/15 = quatre ribosomes. Le résultat suppose un régime stationnaire et des terminaisons aussi rapides que les entrées, sans obstacle ni collision limitante.
Référence et périmètre
NCBI Bookshelf, From RNA to Protein. Modèle eucaryote introductif, avec distinction explicite des étapes communes et des particularités de systèmes.
Références du complément v0.4, consultées le 2 octobre 2026 : OpenStax, synthèse protéique. Exemples et calculs originaux.
Partie 5 · Régulation de l’expression : éléments cis, facteurs trans et raisonnement expérimental
Prérequis et objectifs
Connaître gène, promoteur, transcription, maturation et traduction. Les cours 05-01, partie 3 et 05-01, partie 4 décrivent comment produire un ARN et une protéine ; celui-ci explique comment sélectionner le lieu, le moment et l’intensité de cette production. Il utilise l’opéron bactérien comme modèle de logique régulatrice, puis développe les particularités eucaryotes. Il ne présente pas l’opéron lac comme une organisation générale des gènes humains.
À la fin, on doit pouvoir distinguer une séquence régulatrice d’un produit diffusible, interpréter une complémentation simple, séparer activation et levée d’une répression, et choisir une mesure qui teste le niveau de régulation supposé. Les modèles quantitatifs sont fictifs et servent à examiner les conséquences d’hypothèses annoncées.
1. Une chaîne de niveaux, plusieurs vitesses de réponse
La quantité d’une protéine dépend du nombre de copies du gène, de l’accessibilité du locus, de la production d’ARN, de sa maturation, de sa stabilité, de sa traduction et du renouvellement protéique. Une modification à un niveau peut être compensée ou amplifiée à un autre. Une hausse d’ARN ne garantit donc pas une hausse immédiate et proportionnelle de protéine active.
- Nombre de copies du gène
- Accessibilité du locus
- Production et maturation de l’ARN
- Stabilité de l’ARN
- Traduction de l’ARN
- Renouvellement protéique
Repères complémentaires, sans ordre ni lien de cause.
Les délais diffèrent. Modifier l’activité d’une protéine déjà présente peut produire une réponse rapide ; synthétiser un facteur puis remodeler un programme d’expression exige davantage d’étapes. La durée exacte dépend des molécules et des conditions. Un résultat mesuré après cinq minutes et un autre après une journée ne doivent pas être interprétés comme deux photographies équivalentes d’un état stationnaire.
Pour résoudre une question, écrire une hypothèse sous forme de flèche causale : « facteur A augmente la transcription de B » ou « facteur A stabilise l’ARN de B ». Ces deux phrases peuvent prédire une hausse de l’ARN total, mais elles ne prédisent pas les mêmes changements de synthèse récente ou de demi-vie. La mesure doit départager les mécanismes.
2. Cis et trans : localiser la propriété
Un élément cis est une séquence régulatrice portée par une molécule d’acide nucléique et agissant sur une cible liée à cette organisation. Un promoteur ou un opérateur illustre ce type de propriété. La séquence n’est pas un produit diffusible qui se déplace pour remplacer le promoteur défectueux d’une autre copie.
Un facteur trans est un produit capable d’agir sur d’autres molécules compatibles : protéine régulatrice ou ARN, selon le système. Le gène qui code ce facteur occupe bien une position dans l’ADN, mais sa fonction régulatrice est exercée par le produit. Un allèle fonctionnel peut parfois fournir ce produit à plusieurs copies cibles dans une même cellule.
La distinction ne signifie pas « cis = proche » et « trans = loin ». Un amplificateur distant peut agir en cis sur son locus via l’organisation tridimensionnelle. Un facteur trans peut agir très près de son propre gène. Le critère est la nature de l’élément et la possibilité de fournir sa fonction en partage, pas seulement la distance sur un schéma.
3. L’opéron lac comme modèle de double contrôle
Chez Escherichia coli, l’opéron lac organise plusieurs fonctions associées à l’utilisation du lactose. Un répresseur LacI peut se lier à l’opérateur et freiner la transcription. L’allolactose, issu du lactose, agit comme inducteur en modifiant les propriétés du répresseur. La présence de l’inducteur réduit ainsi la répression ; elle ne transforme pas directement une enzyme préexistante en ARNm.
- Lactose disponible
- Allolactose issu du lactose, inducteur
- Propriétés du répresseur LacI modifiées
- Répression de la transcription réduite
Schéma de principe : lire les conditions et les limites dans le texte.
Un autre contrôle implique le système AMPc-CAP, aussi nommé CRP. Dans le modèle classique, une faible disponibilité en glucose favorise un signal AMPc qui permet une activation plus forte de la transcription. La production maximale est donc favorisée lorsque la répression est levée et que l’activation est présente. « Lactose présent » et « expression maximale » ne sont pas deux propositions équivalentes.
| Lactose disponible | Glucose abondant | Lecture du modèle simple |
|---|---|---|
| Non | Oui ou non | Répression forte par LacI |
| Oui | Oui | Répression levée, activation limitée |
| Oui | Non | Répression levée et activation favorisée |
Le tableau simplifie des mécanismes supplémentaires, notamment le transport et la dynamique des métabolites. Il sert à distinguer une porte négative et une stimulation positive. Il n’attribue pas des quantités strictement nulles à toutes les conditions dites réprimées : une expression basale peut subsister.
4. Mutation du répresseur ou de l’opérateur
Supposons un allèle I− qui ne produit aucun répresseur fonctionnel et un opérateur O+ normal. Dans une cellule portant seulement I− O+, la répression par LacI est perdue. Si une seconde copie I+ fournit un répresseur fonctionnel, ce produit peut agir sur les opérateurs O+ des deux copies. Cette restauration illustre une action en trans, sous les hypothèses de quantité suffisante et d’absence d’effet dominant négatif.
Considérons maintenant un opérateur Oc qui ne reconnaît plus le répresseur. Ajouter une copie I+ ne répare pas cette séquence. Les gènes liés à Oc peuvent rester déréprimés tandis qu’une autre copie liée à O+ reste régulée. L’effet de l’opérateur est local à la copie concernée dans ce modèle.
- Ajout d’une copie I+ fonctionnelle
- Allèle I− : répression restaurée en trans
- Opérateur Oc : séquence non réparée
Deux branches distinctes.
Il faut séparer expression et activité du produit. Un gène lacZ− peut être transcrit sans produire une β-galactosidase fonctionnelle. Si l’essai mesure l’activité enzymatique, le signal dépend à la fois de la régulation et de l’intégrité du gène rapporteur. Une absence d’activité ne prouve pas automatiquement une absence de transcription.
5. Promoteurs, amplificateurs et logique combinatoire eucaryote
Un promoteur contribue à positionner et recruter la machinerie d’initiation. Des éléments régulateurs peuvent recruter des facteurs activateurs ou répresseurs, parfois à grande distance linéaire. Des contacts tridimensionnels, des cofacteurs et l’état local de la chromatine conditionnent l’effet sur un gène cible.
Une logique combinatoire permet d’exiger plusieurs signaux. Dans un modèle ET, la forte expression nécessite à la fois A et B ; dans un modèle OU, l’un suffit. Ces portes sont des simplifications utiles, mais l’expression réelle est souvent graduée. Les concentrations, affinités, coopérations et compétitions définissent une réponse continue plutôt qu’un interrupteur parfaitement binaire.
Si A et B ensemble donnent une réponse supérieure à ce qu’un modèle additif prédirait, on peut parler de synergie relativement à ce modèle choisi. Il faut préciser la référence : addition des valeurs brutes, addition des effets au-dessus du basal ou multiplication des rapports ne conduisent pas au même attendu. Employer « synergique » sans définir la comparaison masque une hypothèse quantitative.
6. Chromatine : accès, recrutement et causalité
Une séquence reconnue par un facteur peut être moins accessible lorsqu’elle est associée à un nucléosome. Des complexes de remodelage consomment de l’énergie pour modifier l’organisation de ces interactions. Des modifications d’histones peuvent recruter des lecteurs ou changer certains contacts. Leur effet dépend du résidu modifié et du contexte, plutôt que d’une règle universelle appliquée à toutes les marques.
Une association entre accessibilité et expression ne donne pas seule le sens causal. Un facteur peut favoriser l’ouverture, mais une transcription active peut aussi contribuer à réorganiser la chromatine. Pour argumenter une causalité, il faut une perturbation ciblée, une séquence temporelle compatible et des contrôles qui excluent une altération générale de la cellule.
L’expression peut être spécifique d’un type cellulaire avec un ADN largement identique. Les facteurs présents, leur état d’activation, les cofacteurs et l’organisation du locus forment une combinaison différente. Cette propriété ne nécessite pas d’inventer une délétion du gène silencieux. Inversement, constater un état de chromatine ne suffit pas à démontrer sa transmission entre générations d’organismes.
7. Contrôles portés par l’ARN
Des séquences de l’ARN déterminent recrutement de protéines, localisation, stabilité et traduction. Un élément de la région 3′ non traduite peut ainsi contrôler la quantité de protéine sans changer ses acides aminés. Une isoforme ayant une extrémité différente peut perdre ou gagner des sites de régulation tout en conservant une région codante identique.
Les microARN fournissent une information de reconnaissance à des complexes associés. Selon la complémentarité et le contexte, ils influencent dégradation et traduction de cibles. Les travaux fondateurs sur lin-4 et lin-14 ont montré qu’un petit ARN non codant pouvait participer à ce type de contrôle. Un même microARN peut avoir plusieurs cibles ; une baisse d’une protéine après surexpression du microARN n’établit donc pas automatiquement une interaction directe avec son ARNm.
Pour tester un site, comparer un rapporteur portant la séquence normale et un rapporteur dont le site est modifié, avec et sans le régulateur. Une mutation du site qui supprime la réponse renforce l’hypothèse, mais elle peut aussi changer structure ou stabilité de l’ARN. Une restauration par mutation compensatrice ou une autre mesure indépendante peut préciser la reconnaissance réellement impliquée.
8. Un modèle de production et de dégradation
Notons M la quantité d’ARN, s sa vitesse de production et k sa constante de dégradation de premier ordre. Le bilan est dM/dt = s−kM. À l’état stationnaire, M* = s/k. Si s double à k constant, le stock stationnaire double ; si k est divisé par deux à s constant, le même doublement apparaît. Une mesure unique du stock ne distingue pas ces deux mécanismes.
Après un changement instantané de s de s0 à s1, avec k constant et un stock initial M0, la solution est M(t) = s1/k + (M0−s1/k)e−kt. Le temps de demi-réponse est ln2/k : après une demi-vie, la moitié de l’écart entre l’ancien et le nouvel état est parcourue. Il ne faut pas confondre ce résultat avec « la moitié du stock final » lorsque M0 est non nul.
Pour s0 = 10 unités/h et k = 0,5 h−1, M0 = 20 unités. Si s1 devient 20, le nouvel état est 40. Après ln2/0,5 ≈ 1,386 h, M vaut 30, milieu entre vingt et quarante. Ce calcul donne une prédiction temporelle testable, sous réserve de synthèse et dégradation constantes après la perturbation.
9. Rapporteur, complémentation et limites d’une preuve
Un rapporteur transforme une activité régulatrice en un signal mesurable, par exemple une activité enzymatique ou une fluorescence. Il faut contrôler nombre de copies, intégration ou transfection, stabilité de l’ARN, maturation du signal et viabilité cellulaire. Un signal final peut varier sans que le taux d’initiation ait changé.
Une construction sans élément testé fournit un basal ; une mutation précise examine une fonction locale ; une normalisation validée corrige certaines différences techniques. Un promoteur connu actif vérifie que le système peut produire un signal. Ces contrôles ne sont pas interchangeables : chacun élimine une explication différente.
La complémentation d’un facteur trans soutient sa fonction mais dépend de son dosage et de sa localisation. Une surexpression massive peut masquer un défaut ou activer des cibles inhabituelles. Pour relier un élément à un gène endogène, l’effet d’un rapporteur isolé doit idéalement être confronté à une perturbation au locus et à une mesure du produit pertinent. Une activité dans un plasmide n’identifie pas automatiquement toutes les cibles naturelles de la séquence.
10. Exercices progressifs
1. Une mutation supprime la fixation d’un répresseur sur un opérateur. Une copie supplémentaire du gène du répresseur normal restaure-t-elle nécessairement la régulation de cet opérateur ? Distinguer cis et trans.
2. Dans le modèle lac, comparer lactose présent/glucose abondant et lactose présent/glucose faible. Quel contrôle explique la différence ?
3. Une cellule porte I− O+ Z+ et une seconde copie I+ O+ Z−. Sans inducteur, prédire l’activité de Z dans le modèle où I− est une perte simple et Z− ne donne aucune enzyme active.
4. Remplacer la première copie de l’exercice précédent par I− Oc Z+. Quelle copie peut fournir l’activité déréprimée, et pourquoi I+ ne l’empêche-t-il pas ?
5. Un rapporteur donne basal = 10, A seul = 30, B seul = 40 et A+B = 100 unités. Quel attendu donne l’addition des effets au-dessus du basal ? Quelle conclusion limitée peut-on tirer ?
6. Avec s = 12 unités/h et k = 0,3 h−1, calculer le stock stationnaire. Si k est divisé par deux, calculer le nouveau stock et la nouvelle demi-vie.
7. Un ARN passe d’un état stationnaire de 20 à une cible de 60 unités après une hausse de synthèse à k constant. Combien vaut-il après une demi-vie, puis deux demi-vies ?
8. Un microARN réduit le signal du rapporteur normal de 100 à 40 unités, mais celui d’un rapporteur à site muté de 100 à 95. Que soutient ce résultat ? Quelle conclusion serait excessive ?
11. Corrections argumentées
1. Non. Le répresseur est un produit trans, mais l’opérateur est une séquence cis. Si cette séquence ne peut plus reconnaître le répresseur, augmenter le produit normal ne rétablit pas nécessairement son interaction. Une copie normale d’opérateur ailleurs ne remplace pas non plus la séquence défectueuse liée au gène considéré.
2. Dans les deux conditions, l’inducteur peut lever la répression par LacI. Lorsque le glucose est faible, l’activation par le système AMPc-CAP est favorisée dans le modèle classique, permettant une expression plus forte. La levée d’un frein et l’ajout d’une activation sont deux mécanismes distincts.
3. I+ fournit un répresseur diffusible qui peut agir sur les deux opérateurs O+. Sans inducteur, la copie Z+ est donc réprimée et l’activité attendue faible/basale. La copie Z− ne produit pas d’enzyme active, même si elle pouvait être transcrite. Le défaut I− simple est complémenté en trans.
4. La copie Oc Z+ peut produire l’enzyme de manière déréprimée vis-à-vis de LacI. Son opérateur ne reconnaît pas le répresseur normal fourni par I+. L’autre copie O+ reste sensible au contrôle, mais Z− ne donne pas d’activité. « Déréprimée » ne garantit pas une valeur maximale indépendante de tous les autres contrôles, notamment de CAP.
5. L’effet de A au-dessus du basal est 20 ; celui de B est 30. L’attendu additif est 10+20+30 = 60. La valeur 100 est supérieure à cet attendu et soutient une interaction positive selon ce modèle. Elle ne prouve pas une liaison physique directe entre A et B ni une règle valable à toutes les concentrations.
6. Le stock initial vaut 12/0,3 = 40 unités. Avec k = 0,15 h−1, il vaut 80. La nouvelle demi-vie est ln2/0,15 ≈ 4,62 h, contre 2,31 h initialement. Le doublement du stock peut donc provenir d’une stabilisation, sans hausse de transcription.
7. L’écart initial au nouvel état est 60−20 = 40. Après une demi-vie, il reste vingt : M = 40. Après deux demi-vies, il reste dix : M = 50. Les valeurs ne sont ni trente puis quarante-cinq, car le stock initial n’est pas nul, ni soixante immédiatement.
8. La perte de réponse après mutation soutient la contribution du site testé au contrôle par le microARN. Elle ne démontre pas à elle seule que tout effet endogène passe directement et exclusivement par ce site. Il faut vérifier les quantités d’ARN, la stabilité du rapporteur et la pertinence du contexte ; une mutation compensatrice ou une mesure indépendante peut renforcer l’argument de reconnaissance.
Références et périmètre
Jacob et Monod, 1961, notice de l’article fondateur.
Lee, Feinbaum et Ambros, 1993, résumé de l’étude lin-4/lin-14.
OpenStax, régulation procaryote.
OpenStax, régulation transcriptionnelle eucaryote.
OpenStax, régulation post-transcriptionnelle.
OpenStax, régulation traductionnelle.
Références consultées le 2 octobre 2026. Texte et exercices originaux. Complément de chimie et biochimie de premier cycle destiné à la révision PASS ; il ne démontre pas l’exigibilité de ces détails à Paris Cité sans syllabus local fourni.
Ce cours, en cartes de révision
Ce cours est déjà transformé en 405 cartes, chacune sourcée à sa page. Tu l’ajoutes gratuitement à tes cours depuis la bibliothèque de l’app, et Ossik te ressort ses cartes au bon moment.