Ce cours réunit 12 parties : 1. Cellule eucaryote animale ; 2. Neurone myélinisé, schéma fonctionnel ; 3. Sarcomère, organisation des filaments ; 4. Méiose : chromosomes, chromatides et quantité d’ADN ; 5. Gastrulation et origine des feuillets ; 6. Villosité placentaire et séparation des circulations ; 7. Moelle, racines et rameaux du nerf spinal ; 8. Thorax : orientation et rapports des compartiments ; 9. Cycle cardiaque : lire une boucle pression-volume ; 10. Courbe de Michaelis-Menten ; 11. Décroissance exponentielle ; 12. Densité normale centrée réduite.
Partie 1 · Cellule eucaryote animale
Objectif de lecture
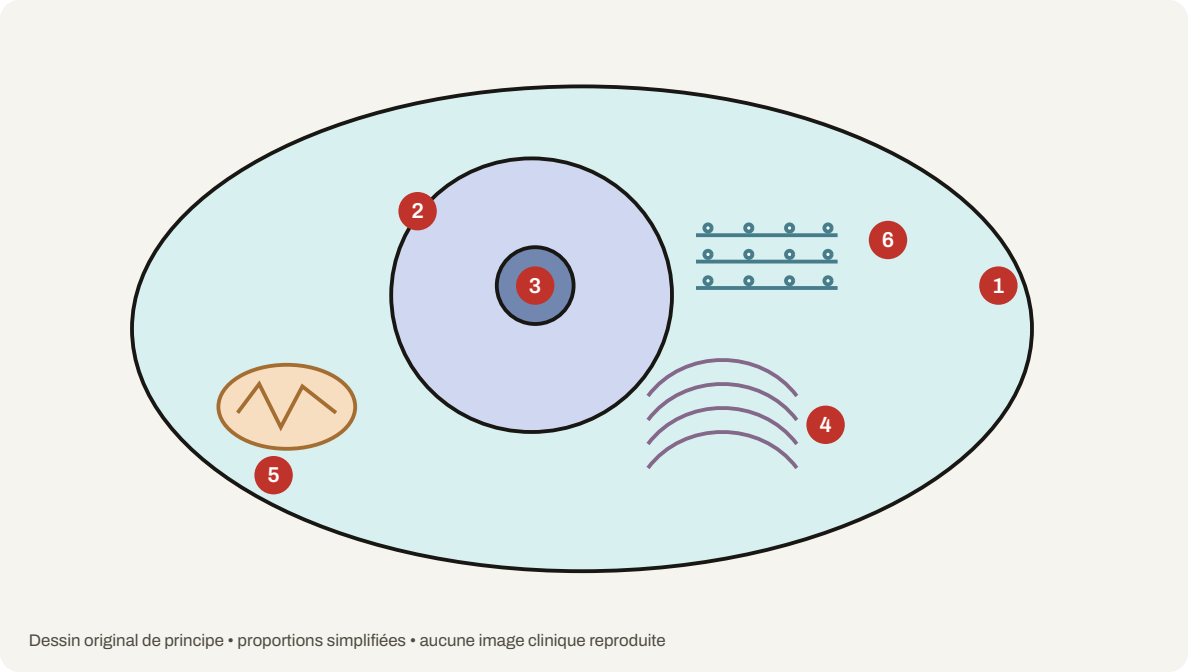
Ce dessin aide à localiser des compartiments. Il ne représente pas une cellule d’un tissu particulier et ne respecte pas les dimensions réelles des organites. Une cellule spécialisée peut avoir une morphologie très différente.
Légende
1. Membrane plasmique : frontière sélective et interface de communication.
2. Noyau : compartiment entouré d’une enveloppe, contenant la majeure partie de l’ADN.
3. Nucléole : région impliquée notamment dans la biogenèse des ribosomes.
4. Appareil de Golgi : maturation, tri et orientation de certaines protéines et de lipides.
5. Mitochondrie : organite à double membrane, impliqué notamment dans la respiration cellulaire.
6. Réticulum endoplasmique rugueux : réseau membranaire associé à des ribosomes du côté cytosolique.
Relier la forme à la fonction
Une protéine destinée à la sécrétion suit souvent un trajet impliquant réticulum, transport vésiculaire et Golgi. Cela ne veut pas dire que toutes les protéines passent par ces compartiments. Des protéines cytosoliques ou nucléaires suivent d’autres voies.
La mitochondrie possède une membrane interne dont les replis augmentent la surface. Le dessin ne montre qu’un symbole de crêtes. La chaîne respiratoire est associée à la membrane interne, tandis que plusieurs réactions métaboliques se déroulent dans la matrice.
Autotest corrigé
Cache les numéros et retrouve les organites. Puis explique pourquoi un ribosome libre et un ribosome lié au réticulum ne constituent pas nécessairement deux espèces de ribosomes différentes. Réponse : la destination de la protéine en cours de synthèse et les signaux d’adressage participent au recrutement vers le réticulum.
Lecture active : Une cellule dessinée ne décrit pas toutes les cellules
Un érythrocyte humain mature aurait-il le même inventaire d’organites que cette cellule modèle ?
Correction et limite
Non : l’érythrocyte mature ne possède notamment ni noyau ni mitochondries. Le dessin représente un modèle de cellule animale nucléée, pas une liste obligatoire pour toute cellule humaine. À l’inverse, l’absence de lysosome sur cette vignette ne signifie pas son absence dans le modèle biologique. Distinguer toujours simplification de représentation et propriété du type cellulaire.
Référence de lecture
Ouvrage pédagogique, chapitre associé. Le dessin reste original ; cette référence ne vaut pas validation scientifique humaine.
Approfondissement : Déduire une topologie sans imaginer des conduits
La lumière du réticulum, celle du Golgi et l’intérieur des vésicules de la voie sécrétoire conservent une relation topologique avec l’espace extracellulaire. Lors d’une exocytose, une région luminale du cargo devient exposée vers l’extérieur ; une région cytosolique reste cytosolique. Il ne faut pas imaginer que la membrane se retourne à chaque bourgeonnement.
Les mitochondries et le noyau n’appartiennent pas à cette succession vésiculaire. Les signaux d’adressage et les mécanismes de transport diffèrent selon les compartiments. Le cytosol n’est pas le contenu du noyau et le cytoplasme n’est pas synonyme exact de cytosol. L’échelle globale du dessin montre les relations entre organites mais ne permet pas de mesurer pores, bicouches ou diamètres réels.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. Un domaine protéique cytosolique devient nécessairement extracellulaire après exocytose.
2. La mitochondrie reçoit toutes ses protéines par des vésicules issues du Golgi.
3. Une membrane interne dessinée permet de distinguer deux compartiments.
4. La forme d’un organite suffit à mesurer son activité.
Correction des quatre propositions
1. Faux : l’orientation est conservée ; c’est le domaine luminal qui se retrouve exposé vers l’extérieur.
2. Faux : de nombreuses protéines mitochondriales sont importées par des machineries dédiées après synthèse cytosolique.
3. Vrai : sa topologie est une information, même si ses proportions ne sont pas fidèles.
4. Faux : une observation morphologique doit être reliée à des mesures fonctionnelles et au contexte.
Partie 2 · Neurone myélinisé, schéma fonctionnel
Légende
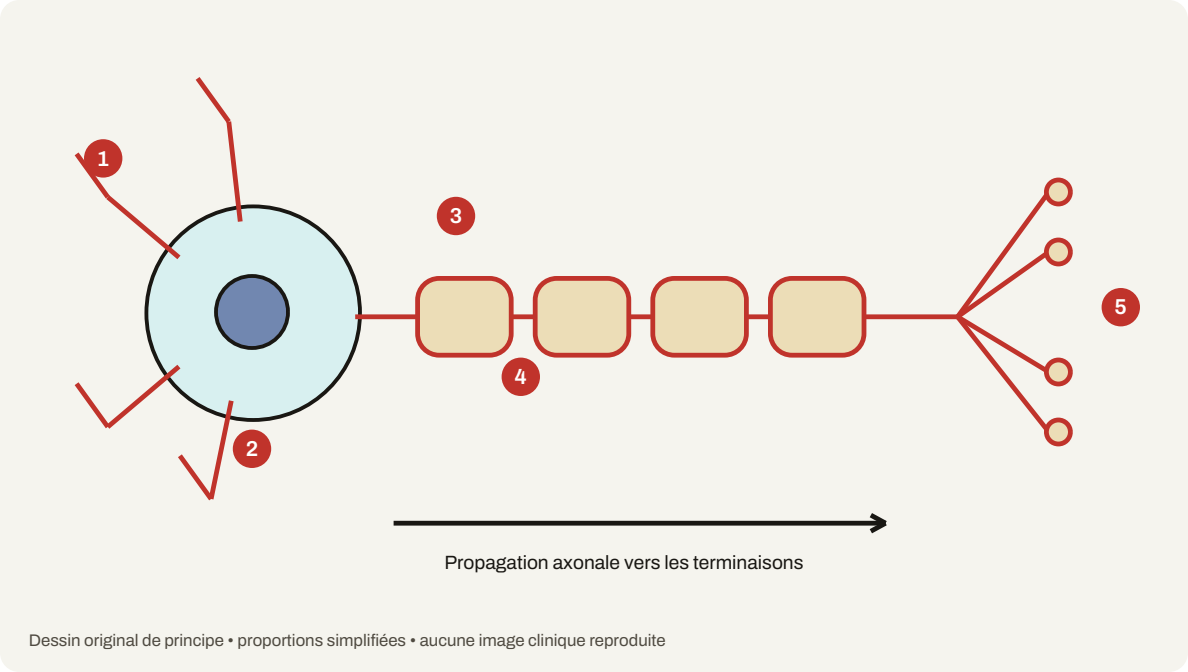
1. Dendrites, représentées par des ramifications près du corps cellulaire.
2. Corps cellulaire avec noyau.
3. Segment de gaine de myéline autour de l’axone.
4. Nœud entre deux segments myélinisés.
5. Arborisation terminale et terminaisons.
Interprétation
La flèche décrit une propagation axonale vers les terminaisons dans le fonctionnement conventionnel. Les signaux reçus par les dendrites et le soma sont intégrés ; le potentiel d’action est généralement initié près du segment initial de l’axone. Le dessin ne place pas ce site avec une précision anatomique.
La myéline modifie les propriétés électriques de la membrane. Le potentiel d’action est régénéré aux nœuds, ce qui favorise une conduction saltatoire. L’influx ne saute pas dans le vide : des courants locaux circulent sous la gaine.
Dans le système nerveux périphérique, une cellule de Schwann forme un segment de myéline d’un axone. Dans le système nerveux central, un oligodendrocyte peut myéliniser plusieurs segments. Une gaine n’est donc pas produite par le neurone lui-même.
Autotest corrigé
Pourquoi une perte de myéline peut-elle perturber la conduction ? Réponse : elle modifie les fuites de courant et les conditions de dépolarisation du segment suivant. Le résultat dépend de l’étendue et du contexte ; une seule image ne permet pas de prédire une manifestation clinique.
Lecture active : Repérer le lieu de régénération
Dessiner un courant local sous la gaine et indiquer où le potentiel d’action est régénéré.
Correction et limite
Le courant local dépolarise la région suivante ; le potentiel d’action est régénéré aux nœuds riches en canaux appropriés. La propagation ne correspond pas à une même molécule qui parcourrait toute la longueur. La gaine est produite par des cellules gliales, avec une organisation différente entre systèmes central et périphérique. Le dessin ne suffit pas à mesurer une vitesse de conduction.
Référence de lecture
Ouvrage pédagogique, chapitre associé. Le dessin reste original ; cette référence ne vaut pas validation scientifique humaine.
Approfondissement : Distinguer propagation et transmission synaptique
La myéline est une organisation membranaire gliale qui modifie les propriétés électriques de l’axone. Dans le système nerveux périphérique, une cellule de Schwann forme un internœud d’un axone ; un oligodendrocyte du système central peut myéliniser plusieurs segments. Le nœud de Ranvier interrompt la gaine et possède une organisation favorable à la régénération du potentiel d’action.
La propagation dite saltatoire ne signifie pas qu’une même particule de sodium parcourt d’un bond la distance entre deux nœuds. Des courants locaux se propagent dans le système électrique axonal et dépolarisent les régions suivantes. La conduction le long de l’axone est distincte de la transmission à une synapse chimique, qui comporte libération de neurotransmetteur et activation de récepteurs. La vitesse dépend de plusieurs paramètres, notamment diamètre et myélinisation.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. Un potentiel d’action diminue normalement d’amplitude à chaque nœud.
2. La myéline est produite par des cellules gliales.
3. La conduction saltatoire signifie absence de tout courant entre les nœuds.
4. Le corps cellulaire et toutes les terminaisons sont nécessairement myélinisés.
Correction des quatre propositions
1. Faux : dans une conduction normale, il est régénéré ; l’atténuation passive entre sites et le potentiel d’action sont distincts.
2. Vrai : les cellules impliquées diffèrent entre systèmes périphérique et central.
3. Faux : des courants locaux assurent le couplage électrique entre les régions excitables.
4. Faux : la gaine est segmentaire et ne couvre pas uniformément toutes les parties du neurone.
Partie 3 · Sarcomère, organisation des filaments
Légende
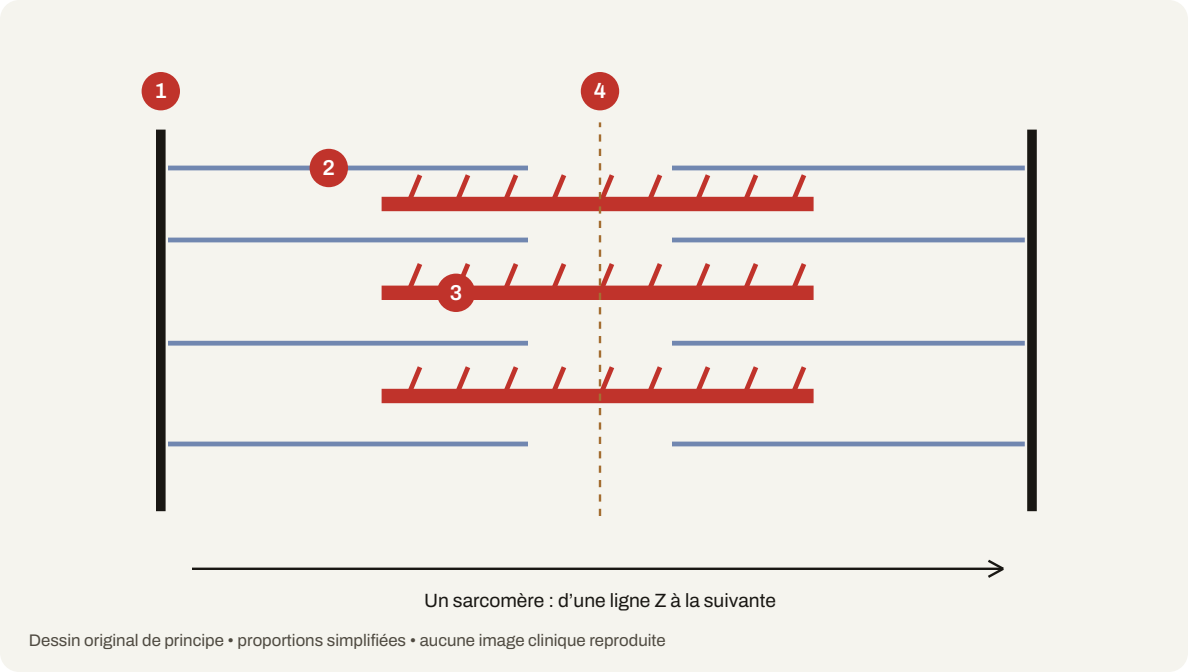
1. Ligne Z ; une deuxième ligne Z limite le dessin à droite.
2. Filament fin.
3. Filament épais et têtes de myosine.
4. Ligne M.
Ce qui change pendant le raccourcissement
Les lignes Z se rapprochent et le chevauchement augmente dans le modèle classique. La longueur des filaments épais, donc la bande A, reste approximativement constante. La bande I et la zone H diminuent. Le dessin est longitudinal et schématique ; il ne montre pas l’organisation hexagonale en coupe transversale.
La titine contribue à l’organisation et aux propriétés élastiques mais n’est pas dessinée. Les lignes représentées ne correspondent pas au nombre réel de filaments. Chaque omission est un choix de lisibilité, pas l’affirmation que la structure n’existe pas.
Autotest corrigé
Pourquoi le sarcomère se raccourcit-il si ses filaments gardent leur longueur ? Réponse : l’augmentation du chevauchement rapproche les limites par glissement relatif. L’énergie de l’ATP permet le cycle des interactions et le maintien des gradients nécessaires.
Lecture active : Comparer deux états du sarcomère
Si les deux lignes Z se rapprochent de 0,4 unité alors que le filament épais conserve sa longueur, quelle bande ne doit pas être raccourcie dans le dessin ?
Correction et limite
La bande A, liée à l’étendue des filaments épais, doit conserver sa longueur dans le modèle de glissement. Les régions de moindre chevauchement se réduisent. Une réduction proportionnelle de tous les éléments du dessin représenterait une contraction des filaments eux-mêmes, contraire au mécanisme illustré. Le changement de longueur global ne donne pas directement une force.
Référence de lecture
Ouvrage pédagogique, chapitre associé. Le dessin reste original ; cette référence ne vaut pas validation scientifique humaine.
Approfondissement : Comparer longueurs et chevauchements
Le sarcomère s’étend entre deux stries Z. Les filaments fins sont ancrés près de ces stries ; les filaments épais occupent la région centrale. La bande A correspond à l’étendue des filaments épais. La bande I contient une région de filaments fins sans filaments épais, tandis que la zone H correspond à une région centrale sans chevauchement avec les filaments fins.
Lors d’un raccourcissement dans le modèle de glissement, la distance entre stries Z diminue, de même que les régions sans chevauchement. La longueur des filaments et celle de la bande A restent approximativement constantes. L’ATP intervient dans le cycle des têtes de myosine, notamment pour leur détachement de l’actine ; le calcium régule l’accès aux sites via les protéines régulatrices du muscle strié. Une contraction ne signifie pas nécessairement raccourcissement macroscopique : une force peut être développée à longueur fixée.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. La bande A raccourcit obligatoirement comme le sarcomère.
2. La distance entre stries Z peut diminuer sans raccourcir les filaments.
3. Une contraction isométrique se définit par l’absence de toute production de force.
4. L’ATP n’intervient qu’à fournir de l’énergie au mouvement et jamais au détachement.
Correction des quatre propositions
1. Faux : sa largeur reflète celle des filaments épais, qui ne raccourcissent pas dans le modèle.
2. Vrai : l’augmentation du chevauchement explique ce résultat.
3. Faux : la longueur macroscopique est maintenue alors qu’une force peut être développée.
4. Faux : sa fixation participe aussi au détachement de la myosine liée à l’actine.
Partie 4 · Méiose : chromosomes, chromatides et quantité d’ADN
Objectif et statut du dessin
Compter chromosomes, chromatides et jeux chromosomiques à chaque étape de méiose. Dessin original OSSIK assisté par IA, sans image clinique reproduite. Proportions et épaisseurs non à l’échelle ; relecture humaine non réalisée. Renvois : cours 08-01, partie 1 et génétique 05.
Schéma à légender
Légende et repères
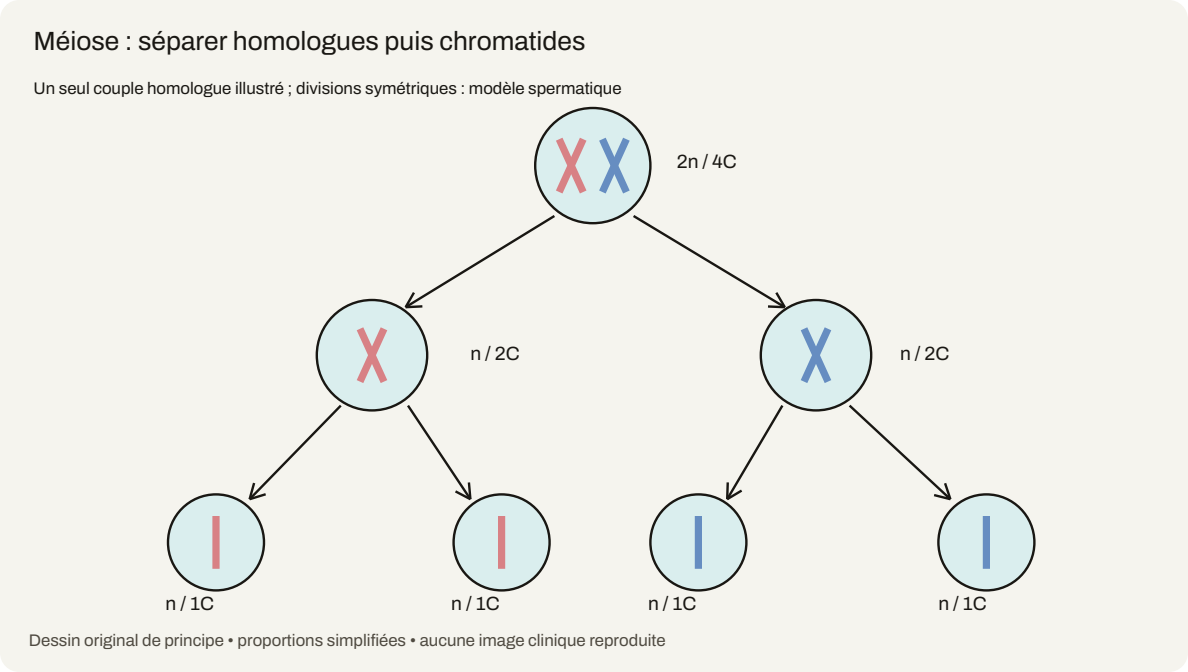
1. Cellule primaire après réplication : 2n et 4C.
2. Deux cellules après méiose I : chacune n et 2C.
3. Quatre produits après méiose II : chacun n et 1C.
Lecture commentée et limites
Le dessin ne représente qu’un couple de chromosomes homologues afin de rendre leur séparation lisible. Les couleurs distinguent les homologues ; les deux traits d’un chromosome dupliqué représentent ses chromatides. Un chromosome à deux chromatides reste un chromosome tant que le comptage par centromère ne les sépare pas.
La première division sépare les homologues et réduit le nombre de jeux chromosomiques. La seconde sépare les chromatides sœurs. La réplication préalable augmente la quantité d’ADN sans doubler le nombre de jeux : 2n/2C devient 2n/4C. Entre méiose I et II, aucune réplication complète supplémentaire n’est introduite dans ce modèle.
Les divisions symétriques illustrent le modèle spermatique. L’ovogenèse humaine comporte des cytocinèses asymétriques et des arrêts spécifiques ; on ne peut donc lire les quatre cercles comme quatre ovocytes fonctionnels équivalents. Les recombinaisons ne sont pas dessinées et les chromatides sont simplifiées. Pour l’humain, le nombre haploïde vaut 23, mais le schéma réduit permet de suivre la logique sans dessiner chaque chromosome.
Exercice sans modèle
Après méiose I humaine, combien de chromosomes et de chromatides comporte une cellule dans le modèle habituel ?
Correction argumentée
Elle comporte 23 chromosomes à deux chromatides, soit 46 chromatides : n/2C. Le nombre de chromatides ne doit pas être confondu avec le nombre de chromosomes. Après méiose II, un produit comporte 23 chromosomes à une chromatide, n/1C.
Référence de vérification
Référence pédagogique institutionnelle. Le dessin est une construction originale, non une reproduction de la figure de cette ressource.
Lecture active : Revenir à la cellule entière
Après réplication, une cellule diploïde humaine contient-elle 92 chromosomes parce qu’elle contient 92 chromatides ?
Correction et limite
Non : avant séparation des centromères, 46 chromosomes dupliqués portent 92 chromatides. La quantité d’ADN est 4C et la ploïdie reste 2n. Après la première division, chaque cellule reçoit 23 chromosomes dupliqués et 46 chromatides. Le dessin n’en montre qu’un couple homologue pour rendre la logique lisible, pas pour annoncer n = 1 chez l’humain.
Approfondissement : Compter avec une définition constante
Le nombre de chromosomes se compte usuellement par centromères avant leur séparation ; le nombre de chromatides renseigne sur la duplication. Une cellule diploïde humaine après réplication possède 46 chromosomes à deux chromatides, soit 92 chromatides, avec 4C d’ADN. Après la première division méiotique, une cellule possède 23 chromosomes encore à deux chromatides et 2C d’ADN. Après la seconde, elle possède 23 chromosomes à une chromatide et 1C.
Le symbole n décrit le nombre de jeux chromosomiques, C une quantité d’ADN de référence. La réplication double C sans rendre la cellule tétraploïde. La première division sépare les homologues ; la seconde sépare les chromatides sœurs. Après recombinaison, deux chromatides issues d’un chromosome dupliqué ne doivent plus être supposées identiques sur toute leur longueur. Le schéma de comptage omet ces détails pour isoler les nombres.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. Après S, une cellule diploïde possède nécessairement 4n jeux chromosomiques.
2. Après méiose I humaine,23 chromosomes peuvent correspondre à 46 chromatides.
3. La méiose II est précédée normalement d’une nouvelle réplication complète de l’ADN.
4. Le nombre C suffit à déterminer la ploïdie dans tous les états.
Correction des quatre propositions
1. Faux : elle reste 2n mais passe de 2C à 4C ; duplication et ploïdie sont distinctes.
2. Vrai : les homologues sont séparés, les chromatides sœurs restent réunies.
3. Faux : aucune phase S complète ne s’intercale entre les deux divisions méiotiques normales.
4. Faux :2C correspond notamment à une cellule diploïde avant S ou à une cellule haploïde après méiose I.
Partie 5 · Gastrulation et origine des feuillets
Objectif et statut du dessin
Relier les feuillets embryonnaires à leur origine épiblastique sans assimiler position et filiation. Dessin original OSSIK assisté par IA, sans image clinique reproduite. Proportions et épaisseurs non à l’échelle ; relecture humaine non réalisée. Renvois : cours 08-01, partie 4.
Schéma à légender
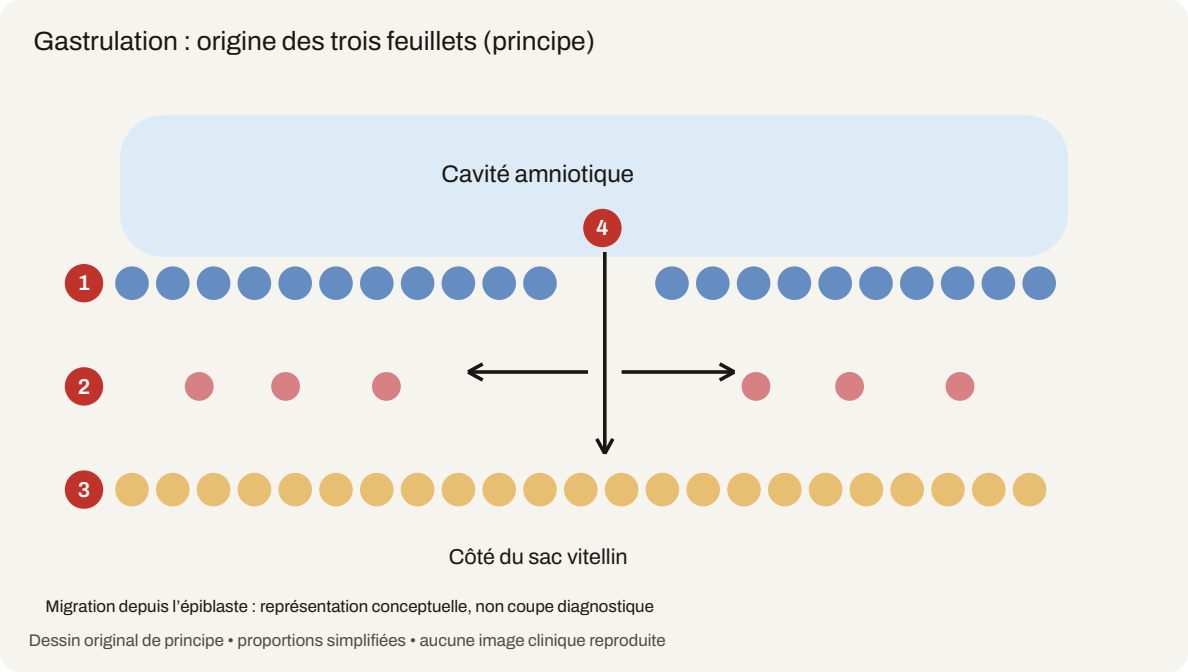
Légende et repères
1. Épiblaste restant en surface, à l’origine de l’ectoderme embryonnaire.
2. Cellules du mésoderme embryonnaire interposées.
3. Endoderme définitif représenté après remplacement de l’hypoblaste dans le territoire embryonnaire.
4. Région conceptuelle d’ingression au niveau de la ligne primitive.
Lecture commentée et limites
Le dessin organise les relations de provenance, pas une coupe histologique exacte à identifier. Des cellules issues de l’épiblaste s’engagent dans des mouvements qui contribuent à établir l’endoderme définitif et le mésoderme embryonnaires ; les cellules qui restent en surface participent à l’ectoderme. Les trois feuillets embryonnaires proviennent ainsi de l’épiblaste dans cette description classique.
L’hypoblaste et l’endoderme définitif ne doivent pas être confondus. Le schéma représente l’organisation après le remplacement dans la région embryonnaire et omet les territoires extraembryonnaires. Une flèche vers le bas n’indique pas que l’épiblaste serait simplement poussé en bloc : il s’agit de mouvements cellulaires organisés.
La cavité amniotique est du côté dorsal de l’organisation représentée, le sac vitellin du côté opposé. La gastrulation contribue aussi à l’organisation des axes. Les événements s’étalent dans le temps et l’espace ; une date unique ne décrit pas toutes les régions à la fois. Les datations du cours sont exprimées explicitement en âge postfécondation lorsqu’elles sont utilisées.
Exercice sans modèle
Corriger : l’ectoderme vient de l’épiblaste, mais l’endoderme définitif embryonnaire vient directement de l’hypoblaste.
Correction argumentée
Dans la gastrulation décrite, l’endoderme définitif embryonnaire provient de cellules de l’épiblaste qui remplacent l’hypoblaste dans le territoire embryonnaire. Le nom d’une couche et sa position à un instant ne suffisent pas à établir son origine.
Référence de vérification
Référence pédagogique institutionnelle. Le dessin est une construction originale, non une reproduction de la figure de cette ressource.
Lecture active : Séparer instantané et devenir
La couche inférieure est dessinée en jaune. Cette couleur permet-elle de décider qu’elle dérive de l’hypoblaste ?
Correction et limite
Non : le jaune est un code de position dans ce dessin, pas une preuve de lignée. Le texte précise qu’il s’agit d’endoderme définitif après remplacement embryonnaire de l’hypoblaste. Pour établir une provenance, il faudrait suivre les cellules dans le temps, par exemple par un marquage de lignée. Les flèches résument l’ingression et la migration ; elles ne signifient pas une transformation directe de tout l’épiblaste en une seule couche.
Approfondissement : Raisonner sur une carte de destinée
Au cours de la gastrulation, des cellules de l’épiblaste s’internalisent au niveau de la ligne primitive. Certaines remplacent l’hypoblaste pour former l’endoderme définitif ; d’autres constituent le mésoderme intraembryonnaire. Les cellules demeurant dans l’épiblaste donnent l’ectoderme. Une couche initiale peut donc contribuer à plusieurs lignées finales : la position d’une cellule sur une coupe ne suffit pas à identifier toute sa descendance.
Les appellations dorsal, ventral, crânial et caudal sont des repères spatiaux, pas des marqueurs moléculaires. Une flèche migratoire décrit un déplacement ou une transition dans un modèle. Elle ne démontre pas à elle seule qu’une cellule particulière adopte un destin : une expérience de traçage de lignée apporte cette information. Des échanges inductifs interviennent en parallèle de la migration.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. L’épiblaste contribue aux trois feuillets définitifs dans le modèle présenté.
2. L’endoderme définitif est seulement l’hypoblaste renommé.
3. Deux cellules voisines sur une image auront nécessairement le même destin.
4. Une flèche de migration prouve la succession des stades dans un individu suivi.
Correction des quatre propositions
1. Vrai : les destinations dépendent notamment des mouvements et du contexte de différenciation.
2. Faux : des cellules issues de l’épiblaste remplacent l’hypoblaste dans sa constitution.
3. Faux : une coupe est un instantané, insuffisant pour établir une filiation.
4. Faux : un schéma de synthèse représente une interprétation ; il ne remplace pas un suivi temporel ou de lignée.
Partie 6 · Villosité placentaire et séparation des circulations
Objectif et statut du dessin
Localiser les deux sangs et expliquer la traversée de tissus placentaires sans continuité vasculaire. Dessin original OSSIK assisté par IA, sans image clinique reproduite. Proportions et épaisseurs non à l’échelle ; relecture humaine non réalisée. Renvois : cours 08-02, partie 1 et filière 19.
Schéma à légender
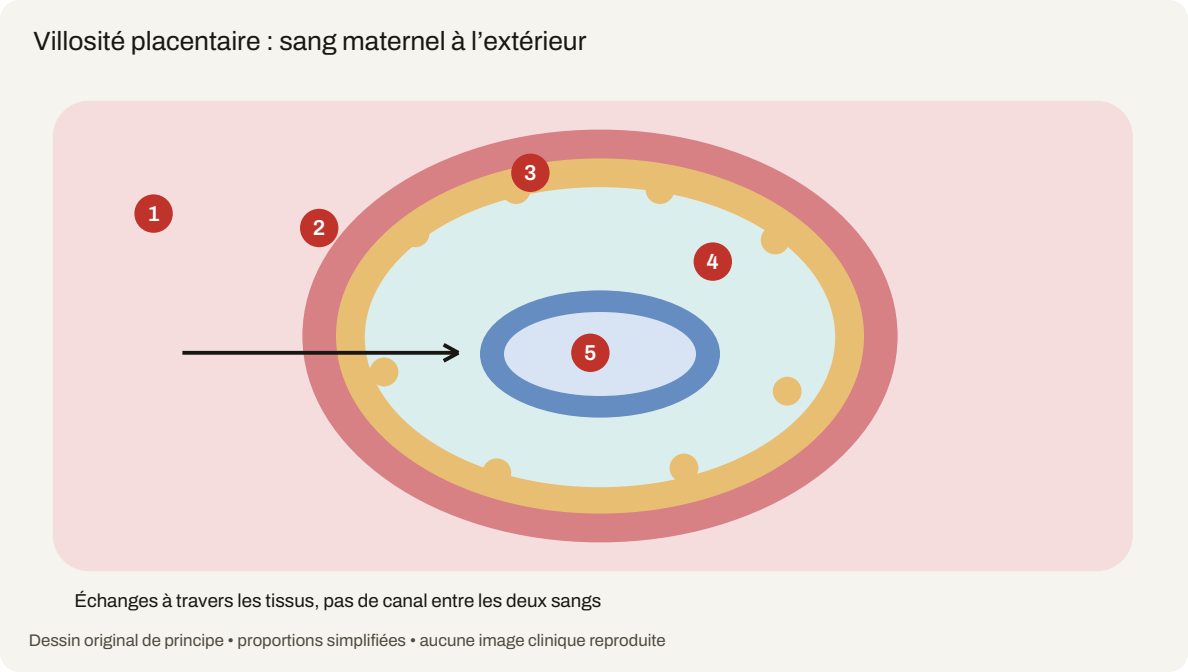
Légende et repères
1. Sang maternel de l’espace intervilleux, extérieur à la villosité.
2. Syncytiotrophoblaste périphérique.
3. Cytotrophoblaste schématisé à un stade où il est bien représenté.
4. Stroma villositaire.
5. Capillaire fœtal, avec son endothélium et sa lumière.
Lecture commentée et limites
Une villosité tertiaire contient une vascularisation fœtale. Le sang maternel baigne sa surface dans l’espace intervilleux ; il ne circule pas dans le capillaire fœtal. Les échanges ont lieu à travers des structures tissulaires. La flèche horizontale indique un trajet d’échange conceptuel, pas un vaisseau reliant directement les deux sangs.
La composition et l’épaisseur de la barrière évoluent avec la maturation. Le cytotrophoblaste devient notamment moins continu et les rapports entre capillaires et surface se modifient. Le dessin amplifie toutes les couches et convient à un modèle explicatif précoce ; il ne prétend pas représenter uniformément une villosité à terme.
Le mot barrière ne signifie pas imperméabilité absolue. Les gaz, nutriments, déchets et certaines autres substances traversent selon des mécanismes différents. La séparation des circulations ne permet donc pas d’affirmer que le fœtus est isolé de toute exposition maternelle. Pour le sens des vaisseaux ombilicaux, se reporter au cours : leur nom artère/veine dépend du sens par rapport au cœur fœtal, pas du degré d’oxygénation.
Exercice sans modèle
Pourquoi les deux artères ombilicales ne transportent-elles pas nécessairement le sang le plus oxygéné du circuit fœtal ?
Correction argumentée
Elles conduisent le sang du fœtus vers le placenta. Le nom artère décrit le sens d’éloignement du cœur, tandis que l’oxygénation dépend des échanges réalisés. La veine ombilicale rapporte le sang depuis le placenta vers le fœtus.
Référence de vérification
Référence pédagogique institutionnelle. Le dessin est une construction originale, non une reproduction de la figure de cette ressource.
Lecture active : Retrouver le compartiment d’origine
Une particule est dans la lumière du capillaire central. Appartient-elle au sang maternel parce que la villosité est entourée de sang maternel ?
Correction et limite
Non : cette lumière appartient au circuit fœtal. L’espace intervilleux extérieur contient le sang maternel. Il faut traverser des tissus pour relier les deux compartiments ; la proximité spatiale ne crée pas de continuité vasculaire. La flèche d’échange n’impose pas le même mécanisme ni le même sens net à toutes les substances. Le dessin précoce ne doit pas être appliqué comme une coupe uniforme à terme.
Approfondissement : Identifier deux circuits et plusieurs obstacles
Dans la villosité, les capillaires fœtaux sont entourés de tissus d’origine fœtale, dont le trophoblaste périphérique. Le sang maternel circule dans l’espace intervilleux. Les échanges traversent donc une interface sans imposer la continuité des deux lumières vasculaires. Au cours du développement, l’épaisseur et l’organisation de cette interface évoluent ; une coupe schématique unique ne décrit pas tous les stades.
L’oxygène diffuse selon des gradients et les propriétés de transport ; le glucose emprunte notamment des transporteurs. Une substance peut franchir la barrière sans que toutes les autres aient la même perméabilité. La surface d’échange, l’épaisseur, les débits des deux circulations et la nature de la substance concourent au résultat. Une modification d’un seul facteur ne permet pas d’attribuer automatiquement toute variation d’échange à une rupture de la séparation sanguine.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. Le sang maternel normal remplit les capillaires au centre de la villosité.
2. Des échanges sont possibles sans mélange direct des sangs.
3. La barrière placentaire constitue un obstacle absolu à toute substance.
4. Une épaisseur mesurée sur un dessin non à l’échelle donne un temps de diffusion.
Correction des quatre propositions
1. Faux : ces capillaires appartiennent à la circulation fœtale ; le sang maternel baigne l’extérieur de la villosité.
2. Vrai : le transfert traverse une interface entre compartiments.
3. Faux : une barrière sélectionne et module les échanges ; elle n’est pas une paroi imperméable universelle.
4. Faux : il faudrait une épaisseur réelle, les propriétés de diffusion et les conditions du modèle.
Partie 7 · Moelle, racines et rameaux du nerf spinal
Objectif et statut du dessin
Suivre séparément une fibre sensitive et une fibre motrice au travers des racines et rameaux. Dessin original OSSIK assisté par IA, sans image clinique reproduite. Proportions et épaisseurs non à l’échelle ; relecture humaine non réalisée. Renvois : cours 09-01, partie 5.
Schéma à légender
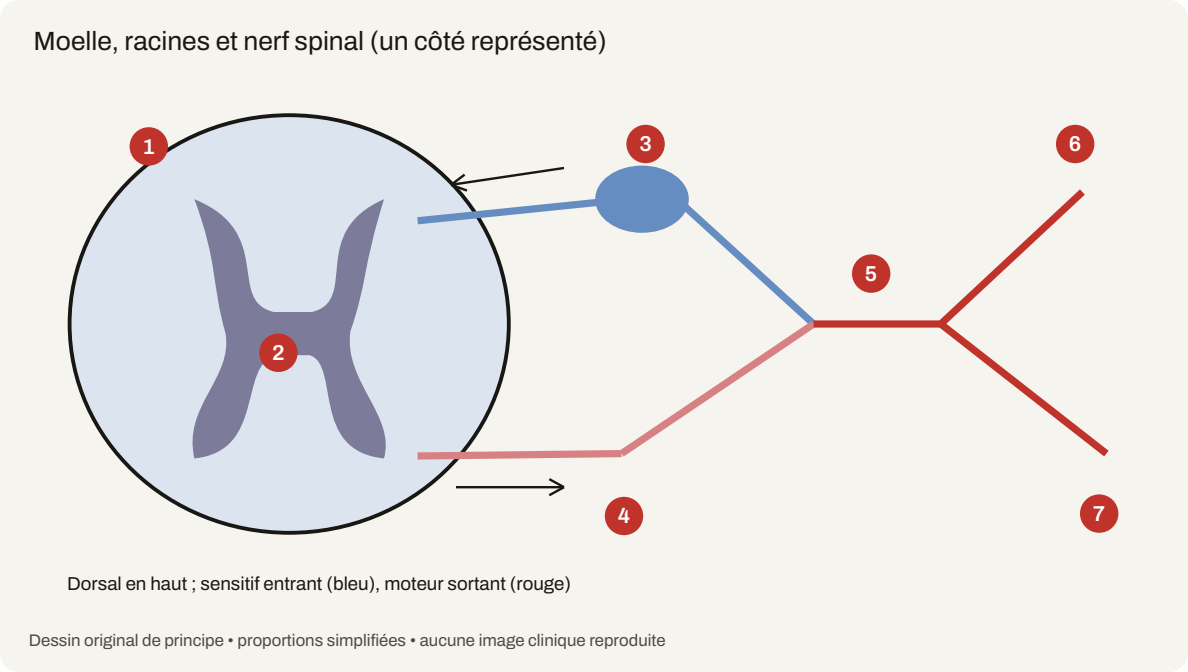
Légende et repères
1. Substance blanche périphérique de la moelle.
2. Substance grise centrale en forme simplifiée de papillon.
3. Ganglion de la racine dorsale, voie sensitive.
4. Racine ventrale, voie motrice.
5. Court segment de nerf spinal mixte après réunion.
6. Rameau dorsal mixte.
7. Rameau ventral mixte.
Lecture commentée et limites
Le dorsal est en haut et le ventral en bas. Seul un côté est prolongé vers les nerfs pour la lisibilité. La racine dorsale véhicule des informations sensitives vers la moelle ; les corps cellulaires des neurones sensitifs correspondants se trouvent dans le ganglion spinal. La racine ventrale véhicule des fibres motrices issues de la moelle.
Après leur réunion, le nerf spinal est mixte. Ses rameaux dorsal et ventral le sont également. La distinction racine/rameau est donc décisive : le rameau dorsal n’est pas simplement une racine dorsale prolongée sous un autre nom. Une fibre motrice peut emprunter le rameau dorsal pour rejoindre un territoire qu’il innerve.
Le dessin omet les détails des cornes, voies ascendantes et descendantes et composantes autonomes selon le niveau. La substance blanche n’est pas un espace vide autour de la substance grise. Le ganglion sensitif ne constitue pas une synapse obligatoire sur la voie représentée. Les flèches indiquent les sens fonctionnels usuels et non toutes les directions possibles d’une stimulation expérimentale.
Exercice sans modèle
Suivre une fibre motrice destinée à un muscle profond du dos. Doit-elle passer par une racine dorsale ?
Correction argumentée
Non. Elle sort par la racine ventrale, rejoint le nerf spinal mixte puis le rameau dorsal mixte vers son territoire. Confondre dorsal et sensitif à tous les niveaux ferait perdre cette organisation.
Référence de vérification
Référence pédagogique institutionnelle. Le dessin est une construction originale, non une reproduction de la figure de cette ressource.
Lecture active : Deux trajets sur le même rameau
Suivre une information sensitive issue du dos, puis une commande motrice vers un muscle profond du dos.
Correction et limite
Le trajet sensitif parcourt rameau dorsal, nerf spinal puis racine dorsale ; le corps cellulaire correspondant siège dans le ganglion spinal. La commande motrice sort par la racine ventrale, rejoint le nerf spinal puis le rameau dorsal. Les deux voies partagent un rameau mixte, mais pas une racine. Le ganglion dorsal n’est pas un relais synaptique imposé à la fibre sensitive.
Approfondissement : Localiser une interruption dans un trajet
Dans le trajet somatique simplifié, une information sensitive issue de la peau rejoint la moelle par un prolongement de neurone pseudounipolaire. Son corps cellulaire siège dans le ganglion spinal ; le prolongement central entre par la racine dorsale. Un motoneurone somatique possède son corps cellulaire dans la corne ventrale et son axone quitte la moelle par la racine ventrale. Le rameau dorsal distribue ensuite des fibres à des territoires du dos.
Pour résoudre un exercice de localisation, tracer séparément le trajet afférent et efférent avant de placer une interruption. Une lésion expérimentale théorique de la racine dorsale n’a pas le même effet qu’une interruption du rameau dorsal, qui est mixte. Ce raisonnement anatomique suppose une interruption limitée à la structure nommée ; un tableau clinique réel ne se déduit pas d’un schéma isolé.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. Le rameau dorsal transporte uniquement de la sensibilité.
2. Le corps cellulaire d’un motoneurone somatique se trouve normalement dans le ganglion spinal.
3. Une fibre motrice destinée au dos peut sortir par la racine ventrale.
4. Toute information sensitive fait une synapse dans le ganglion spinal.
Correction des quatre propositions
1. Faux : c’est un rameau mixte, distinct de la racine dorsale sensitive.
2. Faux : dans ce modèle il se trouve dans la corne ventrale, tandis que le ganglion contient les corps cellulaires sensitifs.
3. Vrai : elle rejoint ensuite le nerf spinal puis son rameau dorsal.
4. Faux : ce ganglion abrite les corps cellulaires sans être un relais synaptique obligatoire sur le trajet.
Partie 8 · Thorax : orientation et rapports des compartiments
Objectif et statut du dessin
Orienter une coupe axiale selon la convention annoncée avant de situer les rapports thoraciques. Dessin original OSSIK assisté par IA, sans image clinique reproduite. Proportions et épaisseurs non à l’échelle ; relecture humaine non réalisée. Renvois : cours 09-02, partie 1 et 09-02, partie 2.
Schéma à légender
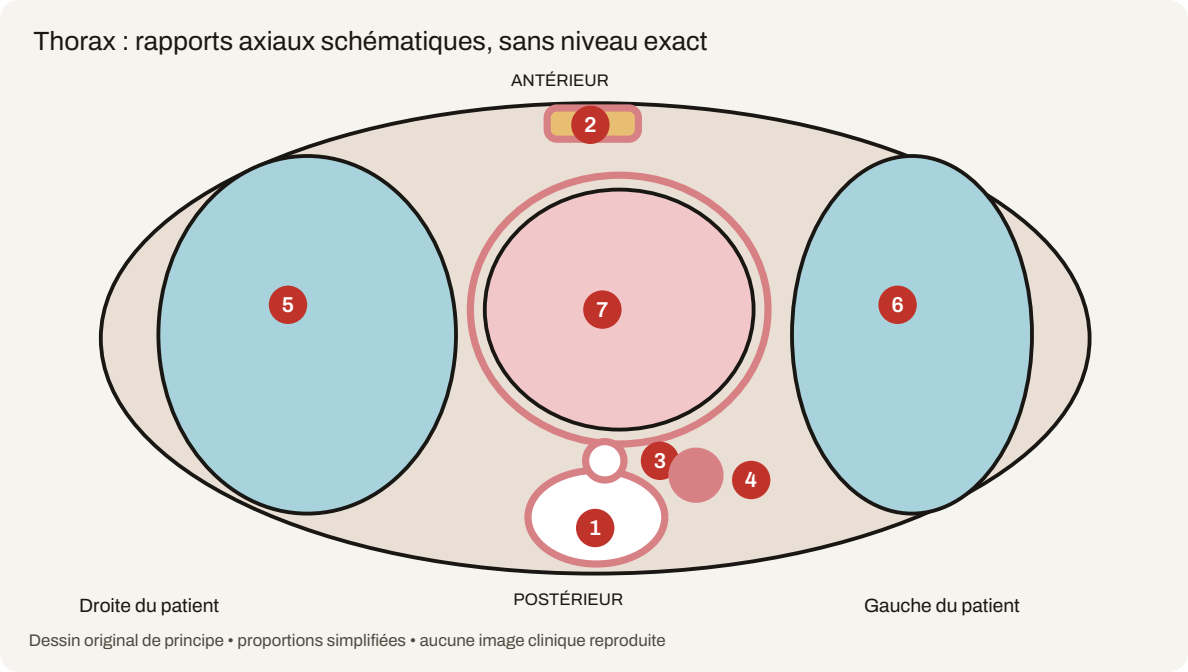
Légende et repères
1. Corps vertébral en arrière.
2. Sternum en avant.
3. Œsophage représenté en arrière du cœur.
4. Aorte descendante en position postérogauche du patient.
5. Poumon droit, placé à gauche de la page.
6. Poumon gauche, placé à droite de la page.
7. Cœur dans son enveloppe péricardique schématisée.
Lecture commentée et limites
La convention de lecture place la droite du patient à gauche de l’image. L’avant est en haut. Avant de nommer un organe, il faut identifier ces repères : un dessin retourné peut conserver une forme plausible tout en inversant les rapports.
Les poumons occupent les régions latérales, chacun dans son compartiment pleural. Les contours simplifiés indiquent les limites ; l’espace pleural normal n’est pas une grande poche vide. Le cœur est dans le médiastin, avec son péricarde. L’œsophage est postérieur au cœur et l’aorte descendante est du côté gauche du patient dans ce schéma de rapports.
Le dessin est une synthèse et ne correspond pas à un niveau de coupe tomodensitométrique précis. Il ne faut pas l’utiliser pour identifier des cavités cardiaques, branches vasculaires ou niveaux vertébraux. Une vraie coupe doit être lue avec son niveau et ses structures visibles, sans ajouter celles qui n’y sont pas représentées. L’exercice vise l’orientation et les relations générales.
Exercice sans modèle
Sur cette image, de quel côté de la page cherchez-vous l’aorte descendante ? Pourquoi ?
Correction argumentée
À droite de la page, dans la partie postérieure, car cette zone correspond à la gauche du patient selon la convention annoncée. Il faut toujours vérifier la convention d’une image réelle plutôt que la supposer.
Référence de vérification
Référence pédagogique institutionnelle. Le dessin est une construction originale, non une reproduction de la figure de cette ressource.
Lecture active : Vérifier une annotation inversée
Un camarade écrit « poumon gauche » sous le poumon à gauche de la page. Quelle vérification permet de corriger sans se fier à la silhouette ?
Correction et limite
La convention place la droite du patient à gauche de l’image, avec l’avant en haut. Le poumon à gauche de la page est donc le poumon droit. On ne déduit pas le côté de sa taille sur ce dessin synthétique. Pour une image réelle, chercher les repères D/G et le niveau de coupe ; ne jamais transposer automatiquement une convention à une image retournée.
Approfondissement : Fixer la convention de lecture d’une coupe
Une coupe transversale du thorax doit annoncer son niveau et sa convention d’observation. Dans la convention radiologique habituelle, on regarde depuis les pieds : la droite du patient apparaît à gauche de l’image. Un schéma pédagogique peut adopter une autre convention s’il la précise. Il faut lire les repères avant d’attribuer une structure au côté droit ou gauche.
Le médiastin occupe l’espace entre les régions pleurales ; ce n’est pas une troisième cavité pulmonaire. Les poumons sont entourés de plèvre viscérale et les parois thoraciques tapissées de plèvre pariétale. La cavité pleurale est normalement un espace potentiel contenant un film liquidien. Le cœur est dans son sac péricardique au sein du médiastin. La présence ou l’absence d’un organe sur une coupe dépend du niveau : on ne transforme pas une section en inventaire de tout le thorax.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. La gauche de l’image correspond toujours à la gauche du patient.
2. Le médiastin se situe entre les régions pleurales.
3. La cavité pleurale normale est un grand espace rempli d’air autour du poumon.
4. Une structure absente d’une coupe n’existe pas dans le thorax.
Correction des quatre propositions
1. Faux : la correspondance dépend de la convention et des marqueurs d’orientation.
2. Vrai : il comprend plusieurs structures dont le cœur et les gros vaisseaux selon le niveau.
3. Faux : c’est un espace potentiel avec un film liquidien ; le schéma n’en donne pas une épaisseur réelle.
4. Faux : elle peut être située à un autre niveau ou hors du plan représenté.
Partie 9 · Cycle cardiaque : lire une boucle pression-volume
Objectif et statut du dessin
Lire le cycle en suivant le sens de la boucle et relier largeur, volume éjecté et travail. Dessin original OSSIK assisté par IA, sans image clinique reproduite. Proportions et épaisseurs non à l’échelle ; relecture humaine non réalisée. Renvois : cours 10-02, partie 1.
Schéma à légender
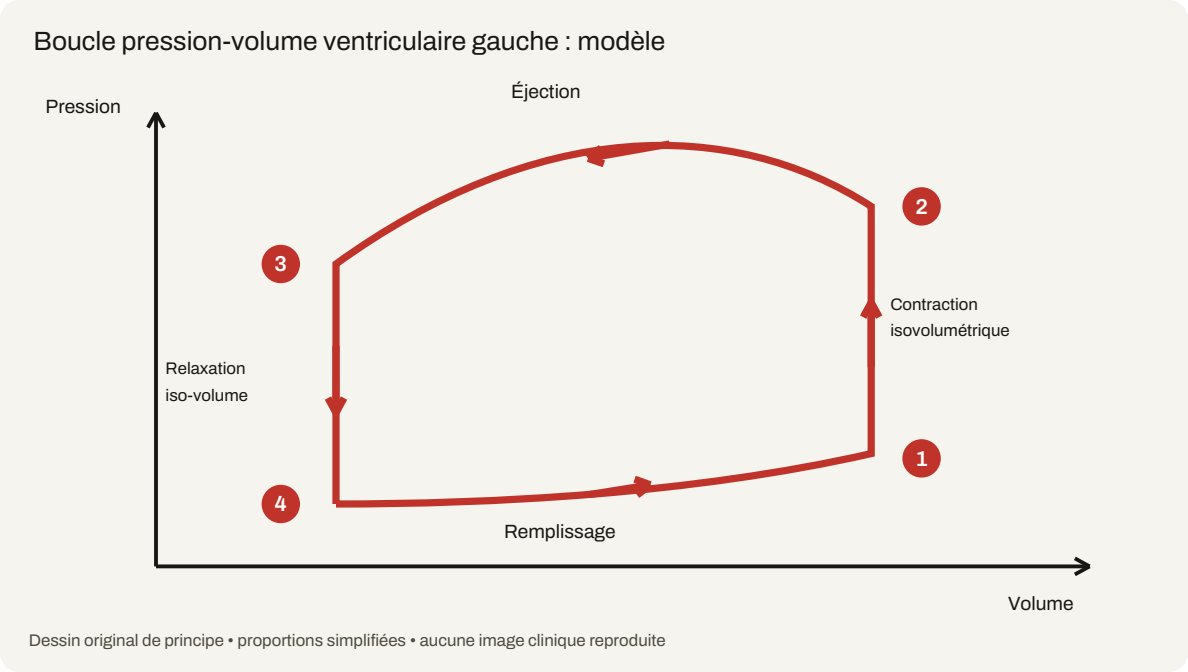
Légende et repères
1. Fermeture mitrale : fin du remplissage, début de contraction isovolumétrique.
2. Ouverture aortique : début de l’éjection.
3. Fermeture aortique : fin de l’éjection, début de relaxation isovolumétrique.
4. Ouverture mitrale : début du remplissage suivant.
Lecture commentée et limites
L’axe horizontal porte le volume ventriculaire et l’axe vertical la pression. Le temps n’est sur aucun axe : il est parcouru en suivant la boucle dans le sens indiqué. Depuis le point inférieur droit, la pression augmente à volume presque constant, puis le volume diminue pendant l’éjection. La pression redescend ensuite à volume presque constant, et le remplissage ramène vers la droite.
La largeur de la boucle correspond au volume d’éjection dans ce modèle. L’aire encerclée est liée au travail externe pression-volume par cycle, avec des unités cohérentes. La hauteur seule ne mesure donc pas le travail. Une boucle étroite et haute ne peut être comparée à une boucle large sans considérer l’ensemble de l’aire.
Les phases dites isovolumétriques correspondent ici aux périodes où les valves représentées sont fermées. La géométrie est qualitative et aucune valeur clinique n’est donnée. Le diagramme ne montre ni le ventricule droit ni les pressions atriales. Une modification de précharge, postcharge ou contractilité peut changer la boucle ; il faut préciser laquelle avant d’interpréter une variation.
Exercice sans modèle
Un volume télédiastolique de 130 mL et un volume télésystolique de 55 mL donnent quel volume d’éjection et quelle fraction d’éjection dans ce calcul fictif ?
Correction argumentée
Le volume d’éjection vaut 130 - 55 = 75 mL. La fraction vaut 75/130 = 0,5769, soit environ 57,7 %. Ces nombres illustratifs ne suffisent pas à interpréter un état clinique ; la fraction est un rapport et non une pression.
Référence de vérification
Référence pédagogique institutionnelle. Le dessin est une construction originale, non une reproduction de la figure de cette ressource.
Lecture active : Interpréter une aire sans confondre les axes
Deux boucles ont la même largeur mais des hauteurs différentes. Peut-on affirmer que leur travail externe est identique ?
Correction et limite
Non. La largeur peut indiquer le même volume d’éjection, mais le travail externe dépend de l’intégrale pression-volume autour de la boucle. Il faut l’aire et des unités cohérentes, pas la seule largeur. Le temps n’est représenté sur aucun axe : une grande longueur de segment ne prouve pas une longue durée. Les phases sont repérées par les événements valvulaires, non par une échelle temporelle implicite.
Approfondissement : Relier événements valvulaires et calcul mécanique
Les valves s’ouvrent ou se ferment selon les différences de pression entre compartiments. Pendant la contraction isovolumétrique du ventricule gauche, les valves mitrale et aortique sont fermées ; la pression monte sans variation notable du volume dans le modèle idéal. L’ouverture aortique marque le début de l’éjection. Après fermeture aortique, la relaxation isovolumétrique précède l’ouverture mitrale et le remplissage.
Dans une approximation rectangulaire purement pédagogique, une largeur de 70 mL et une différence de pression moyenne de 100 mmHg donnent une aire de 7000 mmHg·mL. Comme 1 mmHg vaut environ 133,322Pa et 1 mL vaut 10-6m³, le travail vaut environ 0,933J. Une vraie boucle est incurvée : cette approximation ne remplace pas l’intégration de son contour. Une aire sans unité de pression et de volume ne donne pas un travail en joules.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. Les deux valves sont ouvertes pendant une phase isovolumétrique idéale.
2. La largeur de la boucle vaut le volume d’éjection dans ce modèle.
3. La hauteur de la boucle, seule, donne le travail par cycle.
4. Une longue portion dessinée prouve une longue durée.
Correction des quatre propositions
1. Faux : elles sont fermées, ce qui permet une variation de pression sans éjection ni remplissage.
2. Vrai : elle correspond à la différence entre volumes télédiastolique et télésystolique.
3. Faux : le travail dépend d’une aire pression-volume et de la conversion des unités.
4. Faux : aucun axe n’est temporel ; le dessin décrit des états successifs et non leur durée.
Partie 10 · Courbe de Michaelis-Menten
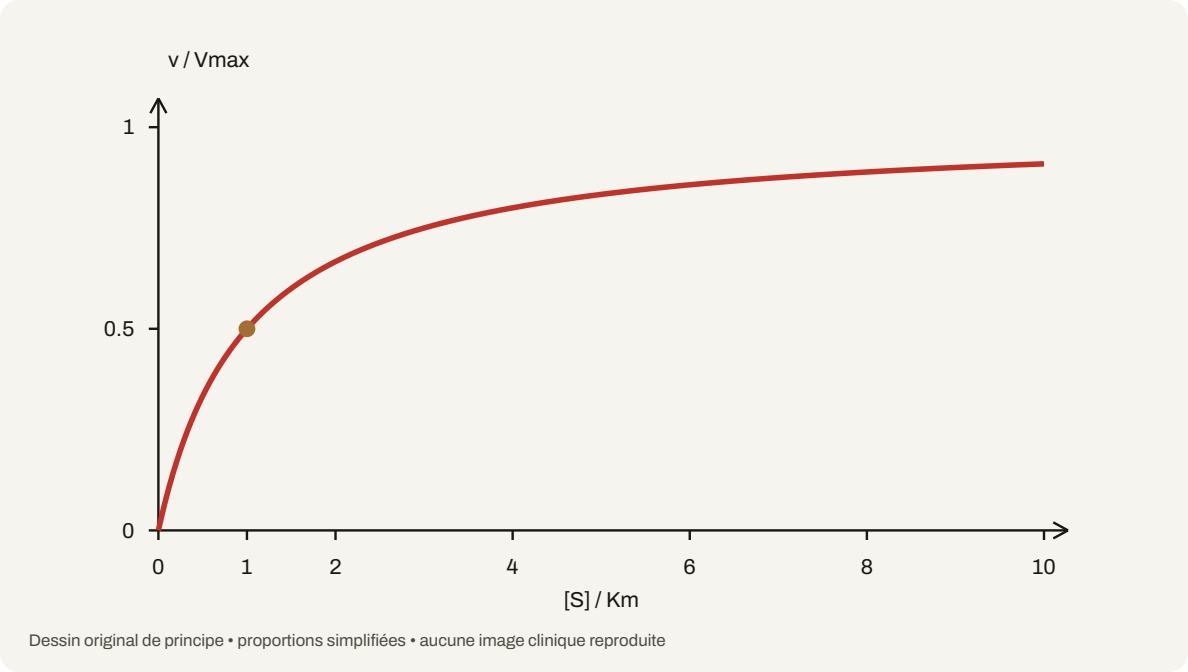
Axes et modèle
L’axe horizontal représente [S]/Km, un rapport sans dimension. L’axe vertical représente v/Vmax. La courbe est calculée exactement à partir de v/Vmax = x/(1+x), avec x = [S]/Km. Ce sont des données théoriques, pas les résultats d’une expérience.
À [S]=Km, la vitesse vaut Vmax/2 : le point est marqué en brun. À forte concentration, la vitesse tend vers Vmax sans l’atteindre exactement dans ce modèle. Le plateau apparent ne signifie pas disparition de la catalyse ; il traduit la saturation progressive.
Conditions
La relation décrit un modèle enzymatique simple en vitesse initiale, avec les hypothèses usuelles de Michaelis-Menten. Une enzyme coopérative, une inhibition ou une réaction mesurée loin des conditions initiales peut produire une autre courbe. Km n’est pas une constante d’affinité universelle.
Autotest corrigé
Pour [S]=4Km, quelle fraction de Vmax obtient-on ? 4/(1+4)=0,8, soit 80 %. Pour passer de 50 % à 80 %, il faut ici quadrupler [S], pas simplement la multiplier par 1,6.
Lecture active : Chercher la concentration requise
Quelle valeur de [S]/Km faut-il pour atteindre 90 % de Vmax dans le modèle ?
Correction et limite
Résoudre 0,9 = x/(1+x) donne 0,9 + 0,9x = x, donc x = 9. Passer de 50 % à 90 % exige neuf fois Km, pas une augmentation de 40 % de substrat. Atteindre exactement 100 % demanderait une concentration infinie dans l’équation idéale ; un plateau graphique est une limite asymptotique, pas une mesure d’arrêt de réaction.
Référence de lecture
Ouvrage pédagogique, chapitre associé. Le dessin reste original ; cette référence ne vaut pas validation scientifique humaine.
Approfondissement : Identifier les paramètres à partir de mesures
Dans le modèle v = Vmax[S]/(Km+[S]), multiplier la concentration totale d’enzyme active par deux multiplie Vmax par deux si le nombre de sites actifs et les autres conditions sont conservés. Km ne double pas pour cette seule raison. Avec Km =2 mmol/L et Vmax =12 µmol/min, une concentration[S] =2 mmol/L donne 6 µmol/min et[S] =6 mmol/L donne 9 µmol/min.
Le régime[S] très inférieur à Km donne approximativement v = (Vmax/Km)[S] : la pente renseigne sur un rapport, pas sur Vmax seul. À forte concentration, la vitesse se rapproche de Vmax. Il faut donc des mesures dans des domaines adaptés pour séparer les paramètres. Ces conclusions supposent des vitesses initiales et un modèle adéquat ; elles ne justifient pas de forcer une courbe coopérative à suivre une hyperbole.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. À[S] =3Km, la vitesse vaut 0,75Vmax.
2. Doubler uniquement l’enzyme active impose de doubler Km.
3. Une seule pente à très faible[S] identifie séparément Km et Vmax.
4. Km est toujours égal à la constante de dissociation du complexe enzyme-substrat.
Correction des quatre propositions
1. Vrai :3/(1+3)=3/4.
2. Faux : cela modifie Vmax dans le modèle, pas nécessairement Km.
3. Faux : elle estime surtout leur rapport ; plusieurs couples peuvent donner cette pente.
4. Faux : cette assimilation requiert des conditions cinétiques supplémentaires ; elle n’est pas universelle.
Partie 11 · Décroissance exponentielle
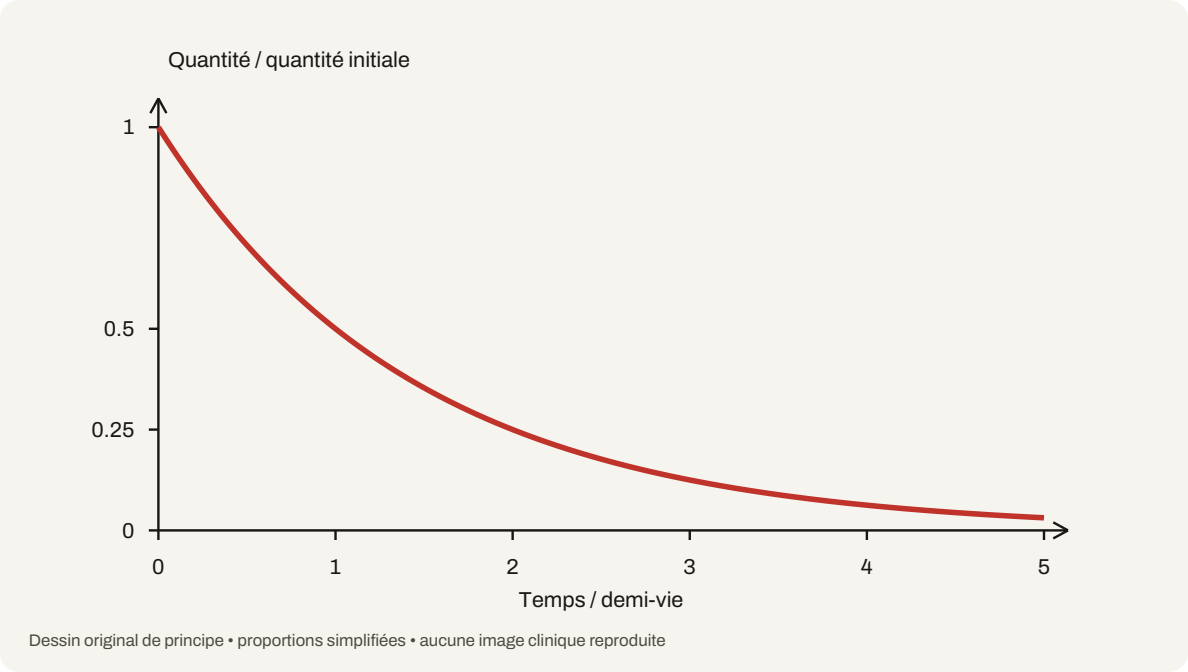
Axes et modèle
L’axe horizontal représente le nombre de demi-vies écoulées. L’axe vertical représente la fraction de quantité restante. La courbe est calculée à partir de Q/Q0 = 2-x, équivalente à exp(-kt) lorsque x=t/t1/2 et t1/2=ln(2)/k.
Après une demi-vie, il reste 1/2 ; après deux, 1/4 ; après trois, 1/8. La diminution absolue par unité de temps se réduit, tandis que la fraction perdue pendant une demi-vie reste constante. La courbe reste positive pour tout temps fini dans ce modèle.
Conditions
Il s’agit d’une cinétique d’ordre un avec constante k positive et fixe. Cette représentation peut décrire une élimination ou une décroissance radioactive dans des conditions appropriées, sans rendre ces mécanismes identiques. Une élimination saturable peut ne pas suivre cette loi.
Autotest corrigé
Après quatre demi-vies, a-t-on éliminé 100 % ? Non : il reste 6,25 %. Une expression comme « presque tout » doit être accompagnée d’un seuil explicite selon la question.
Lecture active : Définir le sens de « presque éliminé »
Combien de demi-vies faut-il pour qu’il reste moins de 1 % de la quantité initiale ?
Correction et limite
Résoudre 2-n < 0,01 donne n > log(100)/log(2), soit environ 6,64. Après sept demi-vies, il reste 1/128 = 0,78125 %. Cette réponse dépend du seuil choisi et d’une cinétique d’ordre un à constante fixe. Elle ne constitue pas une règle universelle de sécurité pour un médicament.
Référence de lecture
Ouvrage pédagogique, chapitre associé. Le dessin reste original ; cette référence ne vaut pas validation scientifique humaine.
Approfondissement : Passer d’une courbe à une constante
Pour N(t)=N0exp(−kt), le rapport N(t)/N0 est sans dimension et k possède l’unité inverse du temps utilisé. La demi-vie vaut ln 2/k. Si la moitié reste après 3 heures, k vaut environ 0,231 h-1 ; après 9 heures, soit trois demi-vies, la fraction restante vaut 1/8. La perte absolue pendant chaque intervalle de 3 heures diminue, alors que la fraction perdue reste la même.
Tracer ln(N/N0) en fonction de t donne une droite de pente−k. Tracer log10(N/N0) donne une pente−k/ln 10 : les bases logarithmiques changent le coefficient. Une droite apparente sur une portion limitée ne prouve pas un mécanisme unique. Un apport simultané, un bruit de fond ou plusieurs compartiments peuvent modifier l’interprétation ; le modèle exige que ses termes soient précisés.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. Après trois demi-vies, il reste un tiers de la quantité initiale.
2. La constante k garde la même valeur numérique en heures et en minutes.
3. Des intervalles égaux retirent une même fraction dans le modèle.
4. La pente du tracé en log10 vaut exactement−k.
Correction des quatre propositions
1. Faux : il reste(1/2)3=1/8.
2. Faux : sa valeur change avec l’unité ;0,231 h-1 vaut environ 0,00385 min-1.
3. Vrai : le rapport entre les quantités successives est exp(−kΔt).
4. Faux : elle vaut−k/ln 10 ; seule la représentation en logarithme naturel donne−k.
Partie 12 · Densité normale centrée réduite
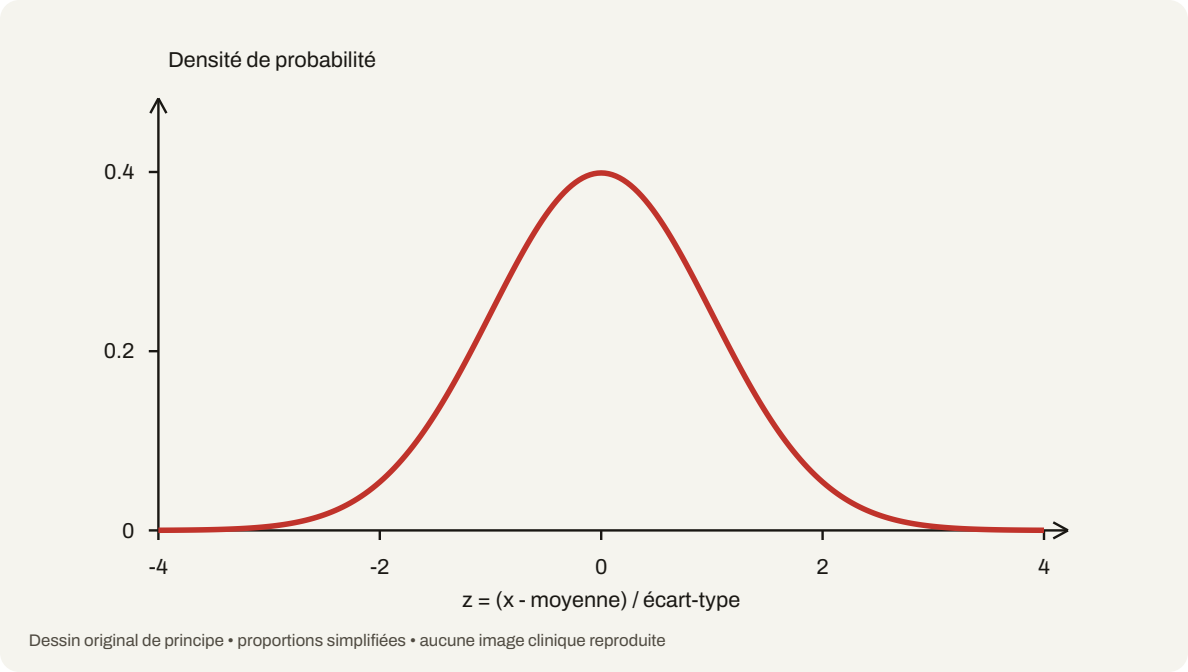
Axes et modèle
La variable z est centrée et réduite : on soustrait la moyenne puis on divise par l’écart-type. Pour une loi normale, sa densité est exp(-z²/2)/sqrt(2π). L’aire totale sous cette densité vaut 1 ; la hauteur de la courbe en un point n’est pas une probabilité ponctuelle.
La courbe est symétrique autour de zéro. Environ 95 % de l’aire se situe entre -1,96 et +1,96. La valeur 1,96 ne s’applique pas automatiquement à tout intervalle de confiance, notamment lorsque la loi de Student ou une autre méthode est nécessaire.
Conditions
Standardiser une variable ne la rend pas normale. Si sa distribution initiale n’est pas normale, soustraire une moyenne et diviser par un écart-type ne change pas magiquement sa forme. La normalité est une hypothèse ou une approximation à examiner.
Autotest corrigé
Pour une variable normale de moyenne 100 et d’écart-type 15, que représente 130 ? z=2. Cette valeur est deux écarts-types au-dessus de la moyenne. La probabilité d’être exactement égal à 130 est nulle pour le modèle continu ; la probabilité d’appartenir à un intervalle autour de 130 peut être positive.
Lecture active : Comparer deux probabilités
Pour Z normal centré réduit, P(Z = 0) vaut-elle la hauteur de la courbe en zéro ?
Correction et limite
Non : P(Z = 0) = 0 dans le modèle continu, alors que la densité en zéro est environ 0,399. Une probabilité se calcule sur un intervalle par une aire. Entre -1 et +1, elle vaut environ 68,3 %. Une densité peut, avec d’autres unités ou lois, dépasser 1 ; c’est l’aire totale qui doit rester égale à 1.
Référence de lecture
Ouvrage pédagogique, chapitre associé. Le dessin reste original ; cette référence ne vaut pas validation scientifique humaine.
Approfondissement : Lire une aire et standardiser une valeur
Une densité normale centrée réduite est une fonction dont l’intégrale totale vaut 1. La hauteur à un point n’est pas la probabilité de ce point : pour une variable continue, un point isolé a une probabilité nulle. La probabilité d’un intervalle se lit comme une aire. La symétrie autour de 0 permet de partager les aires entre côtés droit et gauche.
Si X suit une loi normale de moyenne 100 et d’écart-type 15, la standardisation Z=(X−100)/15 transforme 115 en 1 et 130 en 2. Dans le modèle normal, environ 68,3% des valeurs se trouvent entre 85 et 115, et environ 95,4% entre 70 et 130. Ces intervalles décrivent la dispersion des valeurs individuelles ; ils ne sont pas automatiquement des intervalles de confiance pour une moyenne estimée, qui utilisent l’incertitude d’échantillonnage et les hypothèses du plan.
Entraînement : quatre propositions à discuter
Pour chaque proposition, conclure vrai ou faux puis justifier sans consulter le corrigé. Plusieurs propositions peuvent être vraies ; aucun barème universitaire n’est présumé.
1. Une grande hauteur de densité au point 0 signifie une probabilité positive d’obtenir exactement 0.
2. Standardiser impose de diviser par la variance.
3. L’aire entre−1 et 1 est d’environ 68,3% dans la loi normale centrée réduite.
4. L’intervalle contenant 95% des individus est toujours l’intervalle de confiance de leur moyenne.
Correction des quatre propositions
1. Faux : une variable continue attribue une probabilité nulle à un point isolé ; il faut un intervalle.
2. Faux : on divise par l’écart-type, afin d’obtenir une variable sans dimension de variance 1.
3. Vrai : c’est une propriété du modèle normal, pas de toute distribution ayant moyenne 0 et variance 1.
4. Faux : variabilité individuelle et incertitude d’estimation sont des objets différents.
Ce cours, en cartes de révision
Lire un cours ne suffit pas à le retenir. Dépose ce cours, ou le poly de ta fac, dans Ossik : il en sort des cartes sourcées à la page, qu’il te ressort au bon moment.